Notch 与 RUNX 因子的相互作用调控 T 细胞谱系程序的启动
Notch interaction with RUNX factors regulates initiation of the T-lineage program
1. 领域背景与文献
文献英文标题:Notch interaction with RUNX factors regulates initiation of the T-lineage program;
发表期刊:未公开;影响因子:未公开;研究领域:免疫发育,T淋巴细胞早期发育转录调控。
领域共识:Notch信号是启动胸腺T细胞发育的核心诱导信号,RUNX家族转录因子是造血发育和T细胞命运决定的核心调控因子,其功能会随着发育阶段的不同发生动态改变。现有研究已经明确,早期T细胞发育过程中,淋巴启动多能祖细胞从骨髓迁移至胸腺后,胸腺上皮细胞表达的Notch配体Delta样4触发T谱系程序的启动,早期T细胞根据表面标记可分为双阴性1至双阴性4四个阶段,进一步可划分为T谱系承诺前的1期(双阴性1、双阴性2a)和承诺后的2期(双阴性2b、双阴性3)。已有研究证实RUNX1是参与早期T细胞发育的主要RUNX家族成员,其在所有T发育阶段表达稳定,但功能会动态变化:1期中PU.1招募RUNX1结合非T谱系位点,抑制T细胞身份程序提前激活;2期中Bcl11b与RUNX1合作激活T谱系特征基因,同时限制其他细胞命运。
当前领域存在的核心研究空白是:Notch刺激前的淋巴祖细胞到刺激后1期的发育转变过程中,RUNX因子的功能差异以及上下文特异性功能的调控机制始终不明确,主要原因是体内淋巴祖细胞数量稀少且异质性高,难以开展精细的分子机制研究。因此,构建可模拟生理状态的研究模型,解析该阶段RUNX因子的功能动态,对完善早期T细胞发育的调控网络具有重要的学术价值,也是本研究的核心出发点。
2. 文献综述解析
作者从分子功能、发育阶段两个维度对现有研究进行梳理,首先明确了RUNX家族转录因子的基本特性:RUNX家族是双功能转录因子,需要核心结合因子亚基β作为互作伙伴才能结合DNA,进而招募共激活因子或共抑制因子调控靶基因,不同RUNX家族成员存在组织表达的互斥性,功能冗余较低,RUNX1和RUNX3已经被证实参与造血和T细胞发育,且RUNX共有基序在多个造血谱系关键谱系特异性转录因子结合的基因组区域稳定富集。
现有研究已经证实了RUNX1在T细胞发育T谱系承诺检查点的功能动态,明确了阶段特异性伙伴介导RUNX1重定位对T谱系承诺的关键作用,这些结论为后续研究提供了扎实的基础,但现有研究也存在明显局限性:受体内样本来源的限制,既往研究主要聚焦1期到2期的功能转变,对Notch刺激前淋巴祖细胞到刺激后1期的转变过程关注不足,始终无法明确该阶段RUNX因子功能转换的分子机制。
本研究的创新价值十分明确,针对现有研究的核心空白,作者成功构建了生理功能完整、可进行基因编辑的Cas9表达淋巴祖细胞系,解决了体内样本稀缺的技术难题,首次完整揭示了Notch刺激通过诱导RUNX1结合伙伴的切换,实现T谱系程序启动的分子机制,明确了RUNX1/CTCF复合物在淋巴祖细胞中抑制T谱系特征基因自发激活,Notch刺激后转换为RUNX1/Notch1-IC/Mediator/p300复合物激活T谱系程序的调控模型,填补了早期T细胞发育调控网络的关键缺口,为造血发育领域的相关研究提供了新的技术范式和机制参考。
3. 研究思路总结与详细解析
本研究的整体研究目标为解析Notch驱动T谱系程序启动过程中RUNX因子的功能动态机制,核心科学问题是Notch如何调控RUNX因子的功能转换从而启动T谱系程序,技术路线遵循“模型构建→组学筛选→功能验证→原代确认”的闭环逻辑:先构建可生理重现早期T发育的可编辑Cas9-LP细胞系,再通过多组学分析鉴定Notch刺激前后RUNX1结合位点和互作分子的变化,随后通过CRISPR敲除验证不同复合物的功能,最后在原代骨髓造血祖细胞中验证结论的生理相关性。
3.1 Cas9-LP细胞系构建与转录组验证
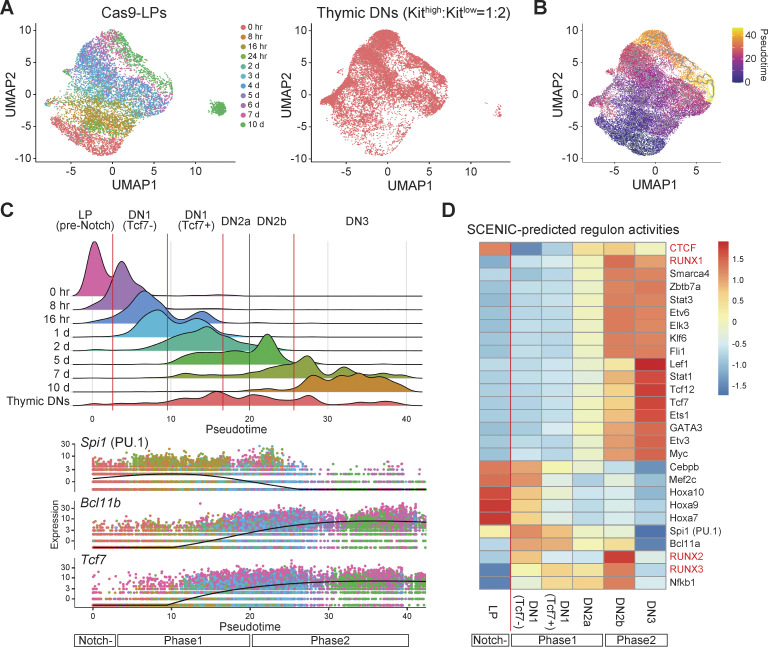
实验目的:构建能生理重现早期T发育的可编辑细胞模型,解决体内淋巴祖细胞样本不足的技术难题。方法细节:从Rosa26-Cas9敲入小鼠胚胎肝脏祖细胞构建早B细胞因子1缺陷的Cas9-LP细胞系,对Notch刺激不同时间点(0小时到10天)的细胞和体内原代胸腺双阴性细胞进行单细胞RNA测序(scRNA-seq),通过降维聚类、拟时分析比较两者的转录组特征,排除细胞周期效应的干扰。结果解读:单细胞RNA测序的均匀流形近似与投影(UMAP)图显示,Notch刺激的Cas9-LP和体内胸腺双阴性细胞聚类在一起,关键标记基因Spi1、Tcf7、Bcl11b的表达动力学与体内原代细胞高度一致,拟时分析显示Notch刺激后Cas9-LP呈现逐步的T发育进程,排除细胞周期影响后结果依然稳定,证明该细胞系可以在单细胞转录组水平精准重现体内早期胸腺T祖细胞的发育过程。
实验所用关键产品:文献明确标注了所用试剂与仪器的品牌和货号,具体信息见原文材料方法部分。
3.2 转录因子调控网络分析
实验目的:筛选Notch刺激后活性发生特异性变化的关键转录因子。方法细节:基于单细胞RNA测序数据,使用单细胞调控网络推断与聚类(SCENIC)算法推断不同发育阶段转录因子的调控活性,比较Notch刺激前后的活性变化规律。结果解读:结果显示祖细胞相关调控网络(包括Spi1、Mef2c、Hoxa9)的活性随着发育进程逐渐降低,T祖细胞相关调控网络(包括Tcf7、Gata3)活性逐渐升高,RUNX家族调控活性在Notch刺激后呈现轻度升高,而CTCF调控活性在淋巴祖细胞中处于较高水平,在Notch刺激后的双阴性1(Tcf7阴性)阶段显著下降,进一步分析发现RUNX家族成员和CTCF的表达量在刺激前后无显著差异,说明二者的活性变化来自功能调控,而非基因表达水平的改变。
3.3 RUNX1基因组结合位点与互作分子分析
实验目的:明确Notch刺激前后RUNX1在基因组结合特征和互作分子的动态变化。方法细节:在淋巴祖细胞和Notch刺激2天的1期细胞中,分别进行染色质免疫共沉淀测序(ChIP-seq)分析RUNX1的基因组结合位点,随后构建带标签的RUNX1-ERT2融合蛋白,通过双步亲和纯化结合液相色谱串联质谱鉴定RUNX1的阶段特异性互作分子,最后通过免疫共沉淀验证蛋白互作。结果解读:ChIP-seq结果显示,淋巴祖细胞中鉴定出4832个淋巴祖细胞特异性RUNX1结合峰,1期细胞中鉴定出11014个1期特异性结合峰,基序分析显示淋巴祖细胞特异性RUNX1结合位点中CTCF基序的富集程度最高,而1期特异性结合位点主要富集RUNX和PU.1基序,无显著的CTCF基序富集。质谱和免疫共沉淀结果显示,RUNX1与CTCF在淋巴祖细胞中存在强结合,Notch刺激后二者结合显著减弱,而RUNX1与Notch1-IC的结合仅在1期到2期检测到,RUNX1与黏连蛋白亚基、p300、Med12等分子的结合在刺激前后保持相对稳定,证实Notch刺激后确实发生了RUNX1/CTCF复合物向RUNX1/Notch1-IC复合物的转换。
3.4 RUNX靶基因表达调控功能验证
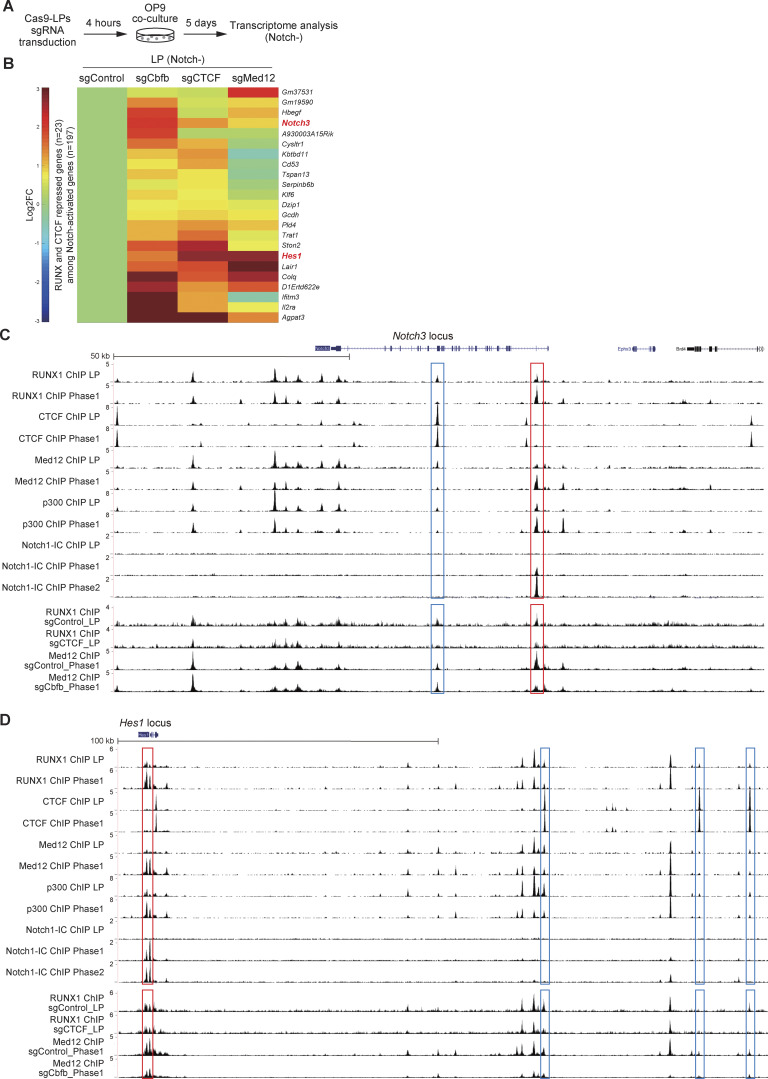
实验目的:验证RUNX在不同发育阶段对靶基因的调控作用是否发生双向转换。方法细节:在Cas9-LP中通过CRISPR/Cas9敲除所有RUNX因子功能必需的结合伙伴核心结合因子亚基β(Cbfb),分别分选淋巴祖细胞和1期细胞进行转录组测序,分析差异表达基因的调控方向。结果解读:结果显示RUNX调控的差异表达基因具有高度发育阶段特异性,大部分基因在两个发育阶段的调控方向保持一致,但少数基因发生了调控方向的转换:3个干/祖细胞基因在淋巴祖细胞中被RUNX激活,在1期被RUNX抑制;5个基因在淋巴祖细胞中被RUNX抑制,在1期转变为RUNX依赖激活,其中4个基因属于Notch调控的T谱系特征基因;进一步分析显示多个Notch调控的T特征基因,在淋巴祖细胞敲除Cbfb后表达上调,在1期敲除Cbfb后表达下调,证明RUNX/Cbfβ复合物对Notch调控的T特征基因存在双向调控,在淋巴祖细胞中发挥抑制功能,在1期发挥激活功能(调整P值<0.05,n=3)。
3.5 不同RUNX复合物的功能验证
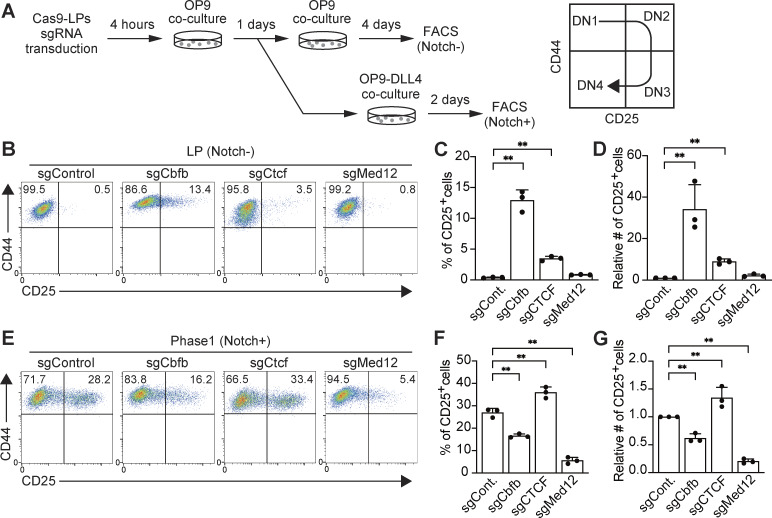
实验目的:明确CTCF和Med12在T谱系启动中的阶段特异性功能。方法细节:分别在淋巴祖细胞和1期细胞中敲除Cbfb、Ctcf或Med12,通过流式细胞术检测CD25阳性双阴性2样细胞的比例和数量,统计分析不同敲除组的差异。结果解读:结果显示,在没有Notch刺激的淋巴祖细胞中,敲除Cbfb或Ctcf都会诱导CD25阳性双阴性2样细胞自发产生,CD25阳性细胞百分比在sgCbfb组调整P<0.0001,sgCtcf组调整P=0.0064(n=3);而在Notch刺激后的1期细胞中,敲除Cbfb或Med12会显著抑制细胞向双阴性2阶段进展,CD25阳性细胞百分比显著降低,sgCbfb调整P=0.0046,sgMed12调整P=0.0362(n=3)。该结果明确证实,RUNX/CTCF转录抑制复合物在淋巴祖细胞中主动抑制T谱系程序的自发激活,而RUNX/Mediator转录激活复合物在Notch刺激后的1期对驱动T细胞发育是必需的。
3.6 基因组结合位点共定位分析
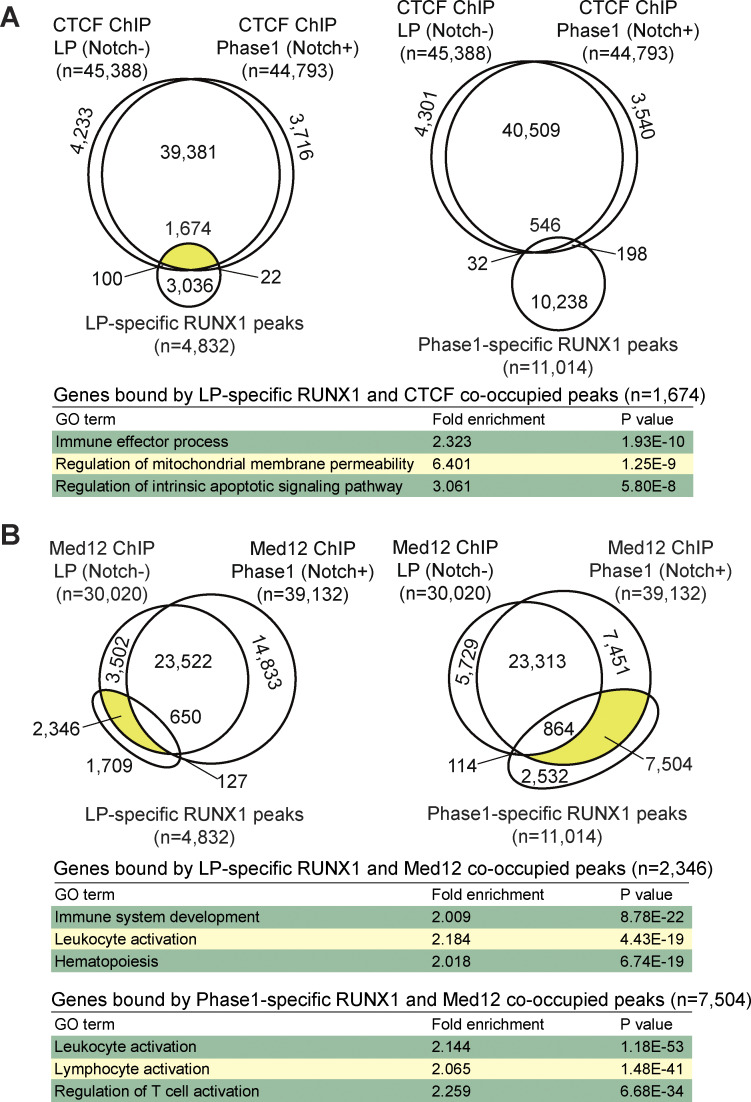
实验目的:验证不同RUNX复合物在靶基因位点的结合模式,明确其功能相关性。方法细节:在淋巴祖细胞和1期细胞中分别进行CTCF和Med12的ChIP-seq,分析不同复合物的共定位情况,通过基因本体论(GO)分析共结合位点相关基因的功能富集,结合靶基因表达变化验证功能。结果解读:结果显示CTCF的基因组结合在Notch刺激前后整体保持稳定,约30%的淋巴祖细胞特异性RUNX1峰与CTCF峰共结合,这些共结合位点相关基因显著富集免疫效应过程,包含多个T谱系特征基因如Lck、Zap70、Thy1,这些基因在淋巴祖细胞敲除Cbfb后表达明显上调;与CTCF不同,Med12的基因组结合位点发生了明显的全基因组位点转换,淋巴祖细胞特异性RUNX1峰主要和淋巴祖细胞特异性Med12峰重叠,1期特异性RUNX1峰主要和1期特异性Med12峰重叠,1期特异性共结合位点相关基因显著富集白细胞激活和T细胞激活调控功能。该结果进一步验证了模型:淋巴祖细胞中RUNX1/CTCF结合T特征基因位点并抑制其表达,Notch刺激后RUNX1/Mediator发生基因组重定位,结合到T特征基因位点发挥激活作用。
3.7 关键Notch靶基因的调控模式验证
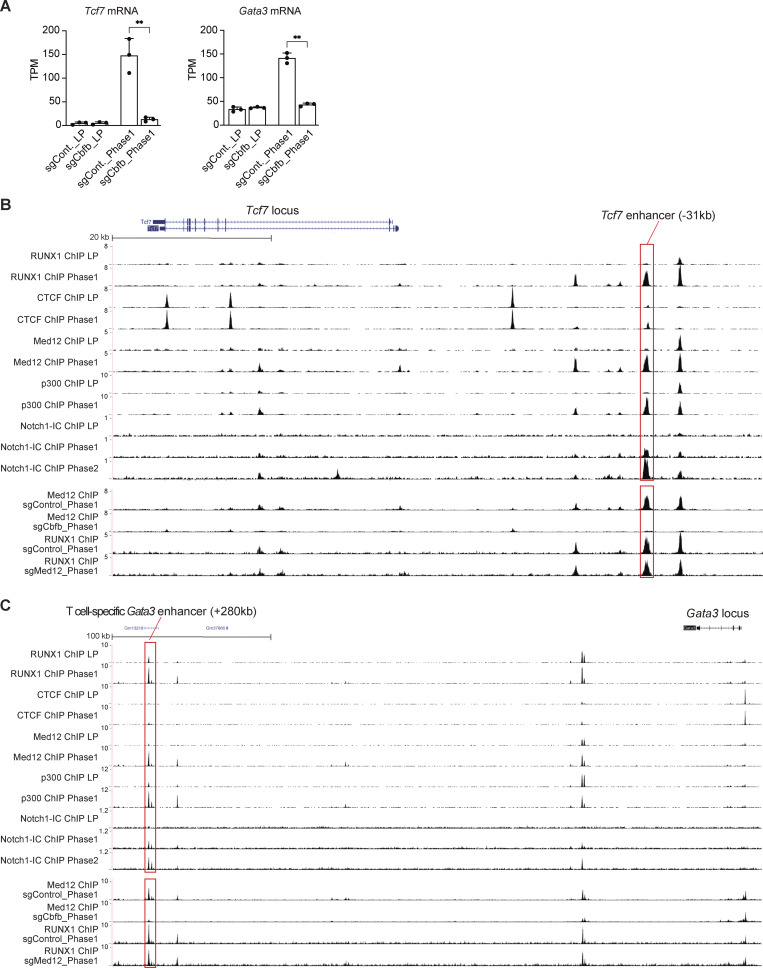
实验目的:明确典型Notch靶基因的具体调控机制,验证整体调控模型的正确性。方法细节:结合ChIP-seq和转录组分析,验证Notch3、Hes1、Tcf7、Gata3等关键早期靶基因的结合模式和表达变化。结果解读:结果显示在淋巴祖细胞中,Notch3和Hes1基因位点存在淋巴祖细胞特异性RUNX1/CTCF结合,敲除Ctcf会减弱RUNX1在这些位点的结合,敲除Cbfb或Ctcf会导致这些基因表达上调;Notch刺激后,Notch1-IC直接结合到这些基因的调控区域,同时招募RUNX1/Med12/p300转录激活复合物,Med12在这些位点的招募依赖RUNX的存在;Tcf7和Gata3是两个功能关键的早期Notch靶基因,二者在1期敲除Cbfb后表达显著下降,Tcf7 P=0.003,Gata3 P=0.0001(n=3),这些结果证实,关键Notch靶基因确实遵循“淋巴祖细胞中RUNX1/CTCF抑制→1期RUNX1/Notch1-IC/Med12/p300激活”的调控模式。
3.8 原代骨髓造血祖细胞验证
实验目的:在原代细胞中验证上述结论的生理相关性,排除细胞系模型的潜在偏差。方法细节:从携带Bcl2转基因的Rosa26-Cas9敲入小鼠分离原代骨髓造血祖细胞,分别敲除Cbfb、Ctcf或Med12,分别在无Notch刺激(支持B细胞发育)和有Notch刺激条件下培养,流式细胞术检测不同条件下细胞的发育表型。结果解读:结果显示在无Notch刺激条件下,敲除Cbfb或Ctcf会导致异常的CD44阳性CD25阳性细胞从CD45阳性Lin阴性CD19阳性B祖细胞中产生,证明缺失RUNX或CTCF会导致T谱系基因在非Notch刺激条件下自发激活;在Notch刺激条件下,敲除Cbfb或Med12会显著降低CD44阳性CD25阳性双阴性2细胞的比例和数量,结果与Cas9-LP细胞系的结论完全一致,证实本研究提出的调控模型在原代生理条件下成立。
4. Biomarker研究及发现成果
本研究属于基础发育调控研究,未针对疾病筛选诊断或预后相关生物标志物,研究过程中明确了T谱系程序启动阶段的特异性分子标志物,核心标志物为CD25(IL2RA,白细胞介素2受体α链),同时Tcf7和Gata3为T谱系启动的核心转录标志物。筛选验证逻辑为:基于单细胞转录组和ChIP-seq筛选阶段特异性分子→Cas9-LP细胞系敲除验证功能→原代造血祖细胞验证特异性,逻辑链条完整。
上述标志物的研究过程如下:标志物来源为小鼠原代胸腺早期T祖细胞和生理型Cas9-LP细胞系,验证方法包括流式细胞术检测表面蛋白表达、转录组测序检测mRNA表达、ChIP-seq验证转录因子结合,功能验证数据显示:CD25在淋巴祖细胞中被RUNX1/CTCF复合物显著抑制,CD25阳性细胞比例在野生型淋巴祖细胞中为低水平,敲除Cbfb或Ctcf后CD25阳性细胞比例显著升高(sgCbfb调整P<0.0001,sgCtcf调整P=0.0064,n=3);在Notch刺激后的1期细胞中,CD25的激活依赖RUNX1/Mediator复合物,敲除Cbfb或Med12后CD25阳性比例显著降低(sgCbfb调整P=0.0046,sgMed12调整P=0.0362,n=3),具有明确的发育阶段特异性。
本研究的核心成果为:明确了CD25作为T谱系进入双阴性2发育阶段的细胞表面标志物,其表达直接受RUNX1复合物的双向调控,可以准确反映T谱系程序是否成功启动;本研究首次揭示了CD25等T谱系特征基因在淋巴祖细胞阶段受RUNX1/CTCF复合物抑制的分子机制,完善了早期T细胞发育的分子标记网络,为早期T细胞发育的阶段划分和功能研究提供了精准的分子依据,所有实验结果均基于3次独立生物学重复,且具有明确的统计学显著性(P<0.05)。