线粒体磷酸泛酰巯基化是氧化代谢所必需的
Mitochondrial phosphopantetheinylation is required for oxidative metabolism
1. 领域背景与文献
文献英文标题:Mitochondrial phosphopantetheinylation is required for oxidative metabolism;
发表期刊:未公开;影响因子:未公开;研究领域:线粒体代谢、蛋白质翻译后修饰。
领域共识:磷酸泛酰巯基乙胺化是一种关键的翻译后修饰,该修饰将来源于辅酶A的4"-磷酸泛酰巯基乙胺基团通过磷酸泛酰巯基乙胺转移酶(PPTase)共价连接到靶蛋白的丝氨酸残基上,对靶蛋白的功能发挥至关重要。目前已在哺乳动物中发现6种存在该修饰的蛋白,其中3种定位于细胞质,3种定位于线粒体。哺乳动物基因组中仅注释了1种PPTase,即AASDHPPT(后文简称PPT),既往研究认为该酶仅定位于细胞质。而在拟南芥、酿酒酵母等物种中,均存在专门的线粒体PPTase,且细胞质PPTase无法补偿线粒体PPTase的功能缺失,因此哺乳动物线粒体蛋白如何获得磷酸泛酰巯基乙胺化修饰这一核心科学问题长期未得到解决。
既往研究曾发现PPT可以在体外对纯化的线粒体蛋白添加4"-磷酸泛酰巯基乙胺修饰,但研究认为PPT超过90%的活性都位于细胞质,该体外活性是否具有生物学意义并不明确。本研究针对这一研究空白展开,旨在明确PPT是否为哺乳动物线粒体功能所必需,以及PPT如何在不同亚细胞区间实现对线粒体靶蛋白的修饰,该研究解决了领域长期悬而未决的问题,明确了线粒体磷酸泛酰巯基乙胺化在氧化代谢中的核心作用,为相关遗传疾病的病因研究提供了新的方向。
2. 文献综述解析
作者对现有研究的梳理按照物种和研究方向两个维度展开,针对低等真核生物的研究已经明确了线粒体特异性PPTase的存在,并且证实细胞质PPTase无法替代线粒体PPTase的功能,该结论在多个模式物种中得到了重复验证,建立了线粒体PPTase功能保守性的研究基础。针对哺乳动物的研究,已经完成了所有磷酸泛酰巯基乙胺化修饰靶蛋白的鉴定,明确了3种线粒体靶蛋白的存在,同时确定了哺乳动物仅存在AASDHPPT这一种注释的PPTase,也通过体外实验初步证实AASDHPPT可以对线粒体靶蛋白进行修饰。
但是现有研究存在明确的局限性:一是既往研究仅检测到AASDHPPT的细胞质定位,未探索其是否存在未被发现的线粒体定位池;二是未在体内细胞水平验证AASDHPPT对线粒体靶蛋白修饰的必要性,也未明确该修饰对线粒体氧化代谢的具体功能影响;三是尚未探索AASDHPPT功能异常与人类遗传疾病的关联,无法为临床研究提供参考。
相较于现有研究,本研究的创新性十分明确,首次在哺乳动物细胞中证实AASDHPPT存在线粒体基质定位池,明确了其N端线粒体靶向序列,阐明了AASDHPPT通过修饰线粒体脂肪酸合成通路关键靶标NDUFAB1调控氧化代谢的分子机制,并且首次在ClinVar数据库中鉴定出AASDHPPT的5个临床致病错义变异,为相关遗传疾病的病因解析提供了新的靶点,填补了领域空白。
3. 研究思路总结与详细解析
本研究的整体研究框架清晰,研究目标为明确哺乳动物AASDHPPT是否参与线粒体氧化代谢调控,核心科学问题是公认仅细胞质定位的AASDHPPT如何实现线粒体靶蛋白的磷酸泛酰巯基乙胺化修饰,技术路线遵循“科学问题提出→基因编辑构建突变细胞系→功能验证AASDHPPT对氧化代谢的影响→生物信息学共表达分析锁定下游靶通路→实验验证AASDHPPT对靶蛋白修饰的必要性→明确亚细胞定位及定位信号→功能验证线粒体定位的必要性→临床变异功能验证”的完整研究闭环。
3.1 AASDHPPT缺陷细胞系构建与氧化代谢功能验证
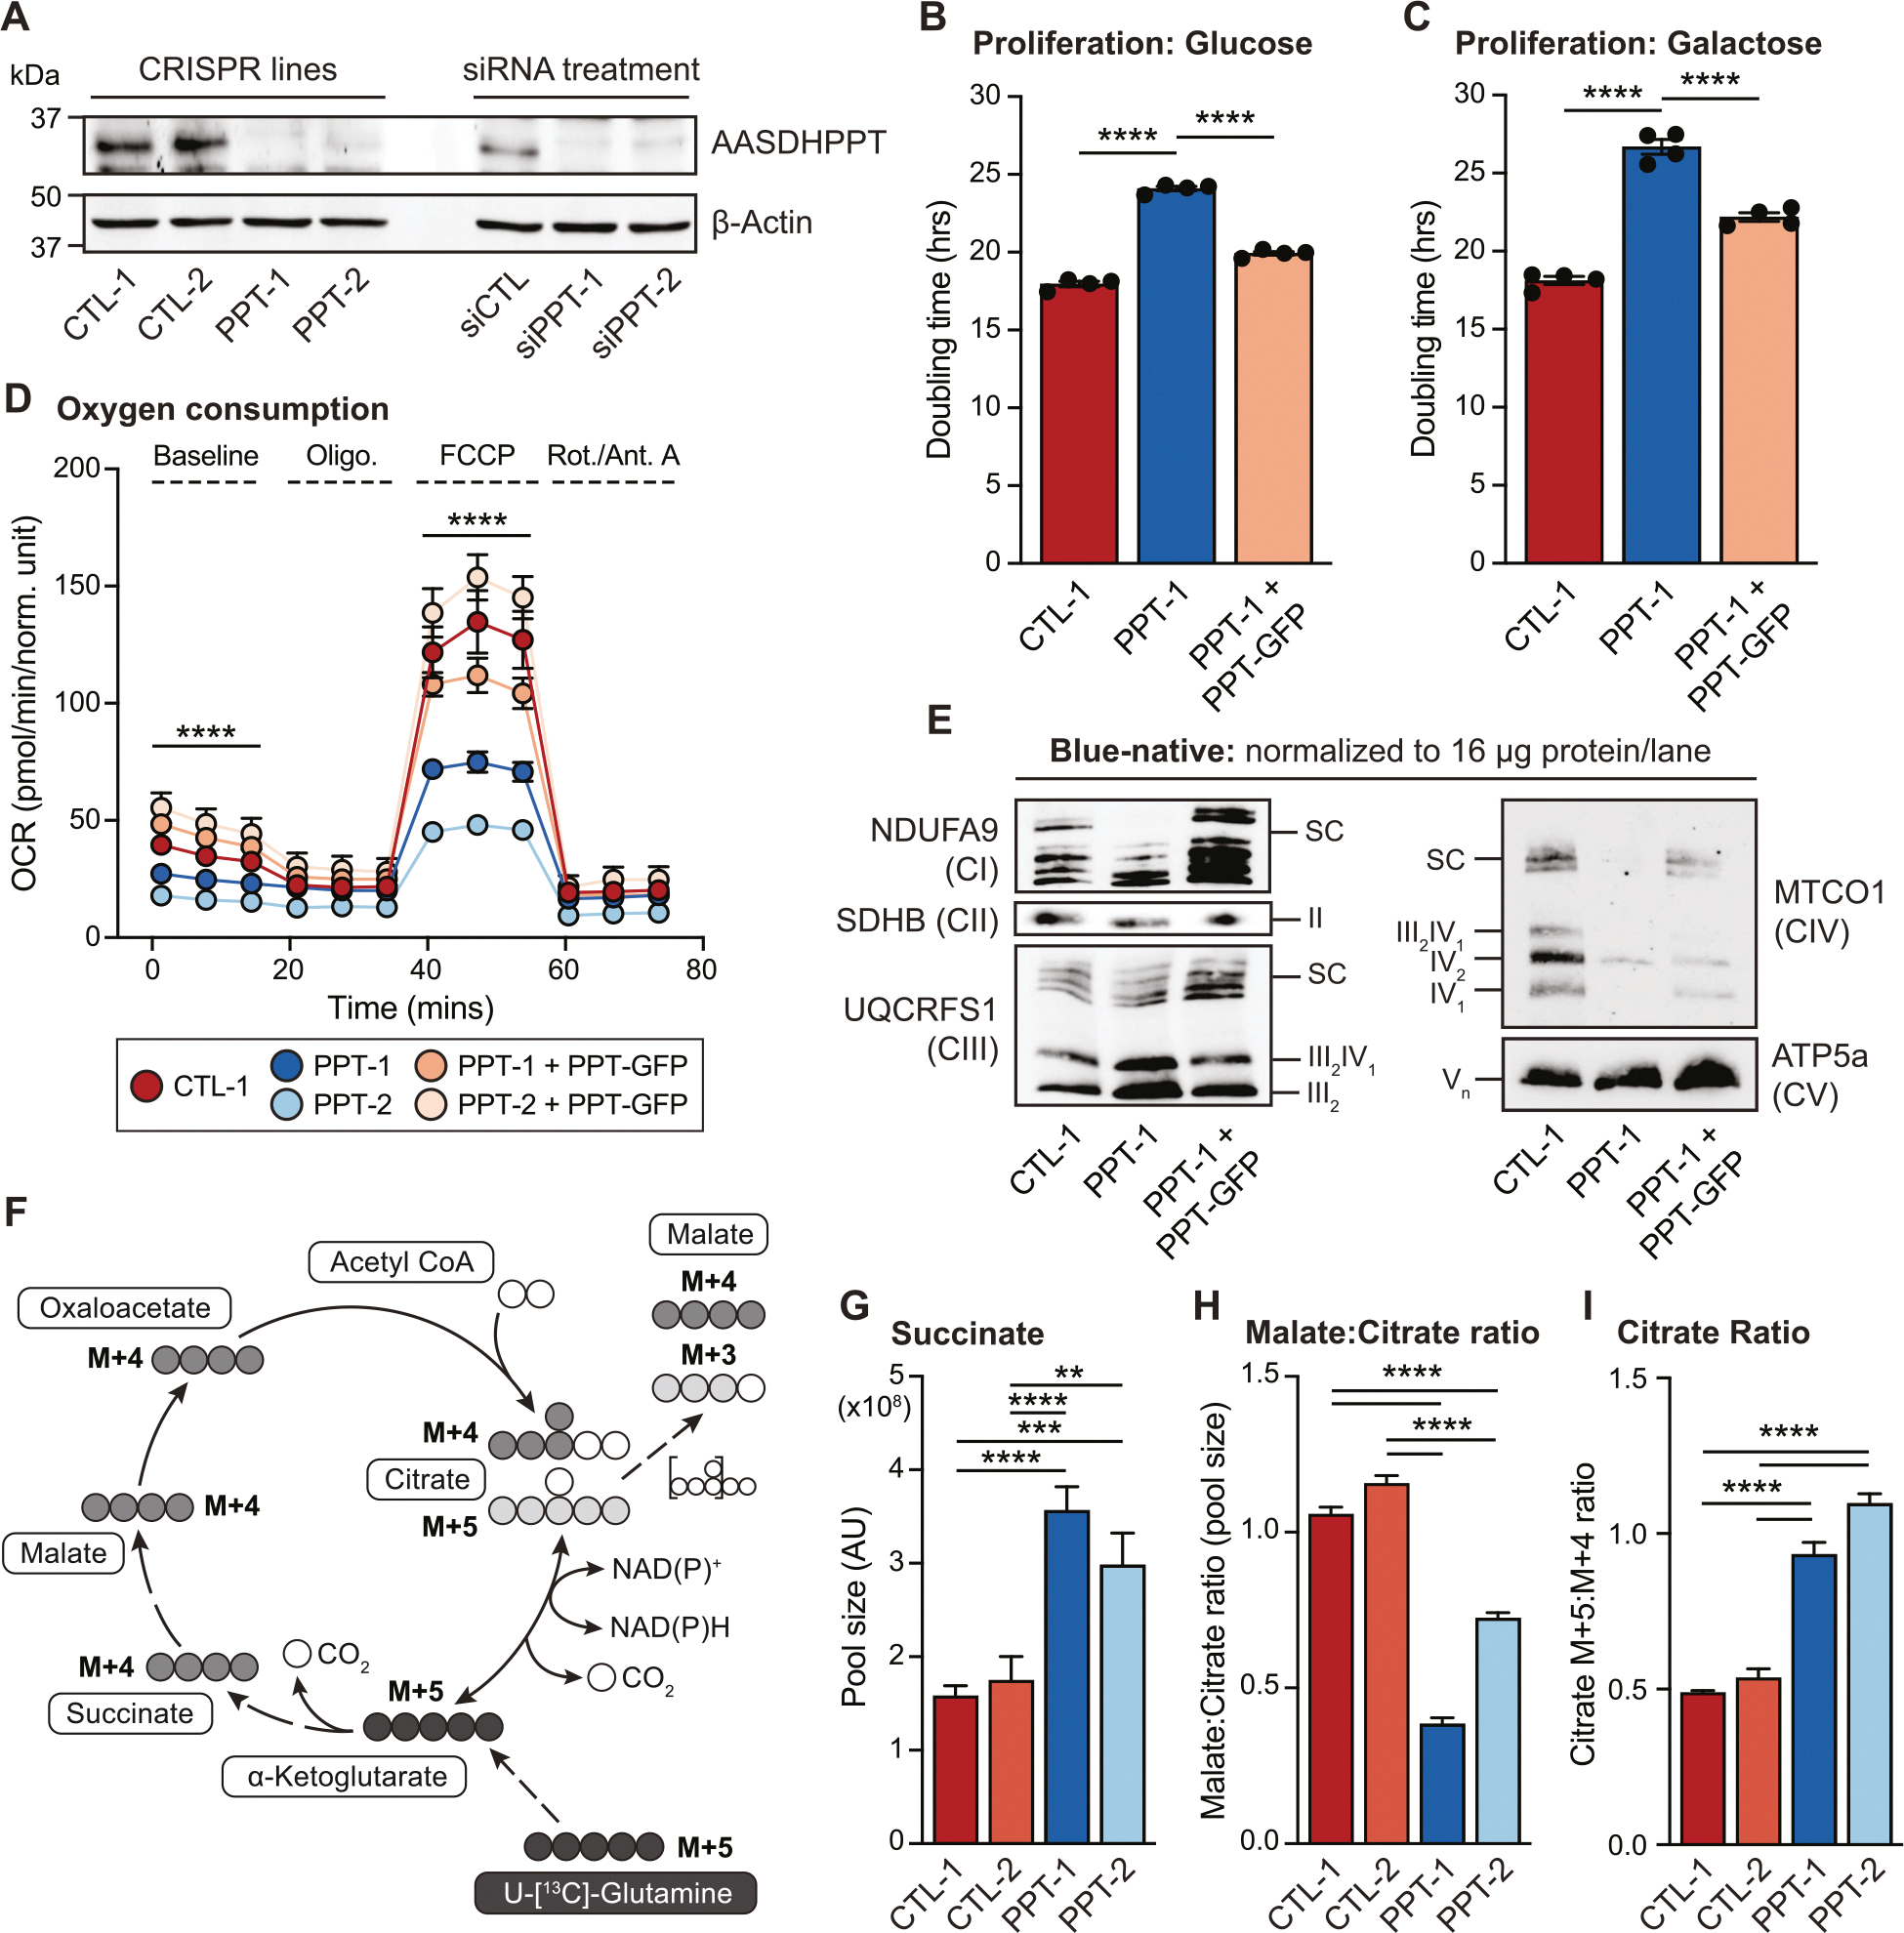
实验目的:验证AASDHPPT是否为线粒体氧化代谢所必需。方法细节:利用CRISPR-Cas9基因编辑技术在C2C12小鼠骨骼肌成肌细胞中突变Aasdhppt基因,筛选获得两个蛋白表达降低的克隆细胞系PPT-1和PPT-2,同时通过小干扰RNA敲降验证敲低效果;分别在含葡萄糖或半乳糖的培养基中培养细胞,检测细胞群体倍增时间,通过海马线粒体压力测试检测细胞氧消耗率,利用蓝 native 聚丙烯酰胺凝胶电泳检测电子传递链复合物的表达水平,最后通过全碳标记U-13C谷氨酰胺代谢流分析三羧酸循环的代谢流变化。结果解读:蛋白质免疫印迹结果显示两个克隆均存在AASDHPPT蛋白表达下调,其中PPT-2保留少量野生型等位基因,残余表达更高,表型更温和。PPT缺陷细胞在葡萄糖和半乳糖培养基中倍增时间均显著延长(n>3,P<0.0001),基础呼吸和最大呼吸速率均显著降低(n=3,P<0.0001),电子传递链复合物I、II、IV水平降低,含复合物III的超级复合物水平降低,ATP合酶和复合物III本身未受影响,上述所有表型均可被重新表达全长AASDHPPT逆转。代谢流结果显示,PPT缺陷细胞中琥珀酸池大小升高,延胡索酸、苹果酸、天冬氨酸等下游代谢物池大小降低,苹果酸与柠檬酸的比值显著降低(n=3,P<0.01),柠檬酸M+5与M+4的比值显著升高(n=3,P<0.0001),提示氧化三羧酸循环加工减少,谷氨酰胺还原性羧化增加,符合电子传递链损伤的典型特征,最终证实PPT突变细胞存在氧化线粒体代谢缺失。
实验所用关键产品:文献未提及具体实验产品,领域常规使用CRISPR-Cas9基因编辑相关试剂、海马能量代谢检测试剂盒、液相色谱-质谱联用仪等仪器试剂。
3.2 AASDHPPT靶通路验证与NDUFAB1修饰验证
实验目的:明确AASDHPPT影响氧化代谢的下游靶通路与靶蛋白。方法细节:首先利用DepMap公共数据库的基因共依赖性分析,对已知的3种线粒体磷酸泛酰巯基乙胺化修饰蛋白进行共表达分析,筛选相关性最高的靶通路;然后通过蛋白质免疫印迹检测PPT缺陷细胞中线粒体脂肪酸合成(mtFAS)通路终点,包括丙酮酸脱氢酶和α-酮戊二酸脱氢酶的脂酰化水平,以及琥珀酸脱氢酶B亚基(SDHB)的稳定性;构建NDUFAB1的112位丝氨酸突变为丙氨酸的突变体(S112A,可阻断修饰位点),通过SDS-PAGE迁移率变化验证修饰缺失对蛋白迁移的影响;最后开发基于免疫沉淀结合液相色谱-质谱联用法,直接检测NDUFAB1的不同修饰形式(apo-无修饰、holo-磷酸泛酰巯基乙胺化修饰、acyl-酰基化修饰)的水平。结果解读:共依赖性分析显示,在三种已知线粒体靶蛋白中AASDHPPT仅与NDUFAB1呈正相关,且线粒体脂肪酸合成通路所有核心基因均与AASDHPPT高度共依赖,二维网络分析显示AASDHPPT与线粒体脂肪酸合成通路基因及LYRM组装因子的相关性最强。PPT缺陷细胞中,丙酮酸脱氢酶和α-酮戊二酸脱氢酶亚基的脂酰化水平降低,SDHB稳定性降低,完全符合线粒体脂肪酸合成缺陷细胞的分子表型,该表型可被重新表达AASDHPPT逆转。SDS-PAGE中PPT缺陷细胞的NDUFAB1迁移更快,对照细胞中表达S112A突变体的NDUFAB1迁移率与PPT缺陷细胞中的野生型NDUFAB1一致,且突变体在PPT缺陷细胞中无进一步迁移率变化,说明迁移率变化确实由112位丝氨酸的磷酸泛酰巯基乙胺化缺失导致。质谱结果显示,相较于对照细胞,PPT缺陷细胞中holo-NDUFAB1和酰基化NDUFAB1水平均显著降低(n=3,P<0.001),PPT-1克隆中apo-NDUFAB1显著累积,最终证实AASDHPPT是NDUFAB1磷酸泛酰巯基乙胺化所必需。
实验所用关键产品:文献未提及具体实验产品,领域常规使用免疫沉淀试剂、液相色谱-质谱联用仪等。

3.3 AASDHPPT亚细胞定位分析
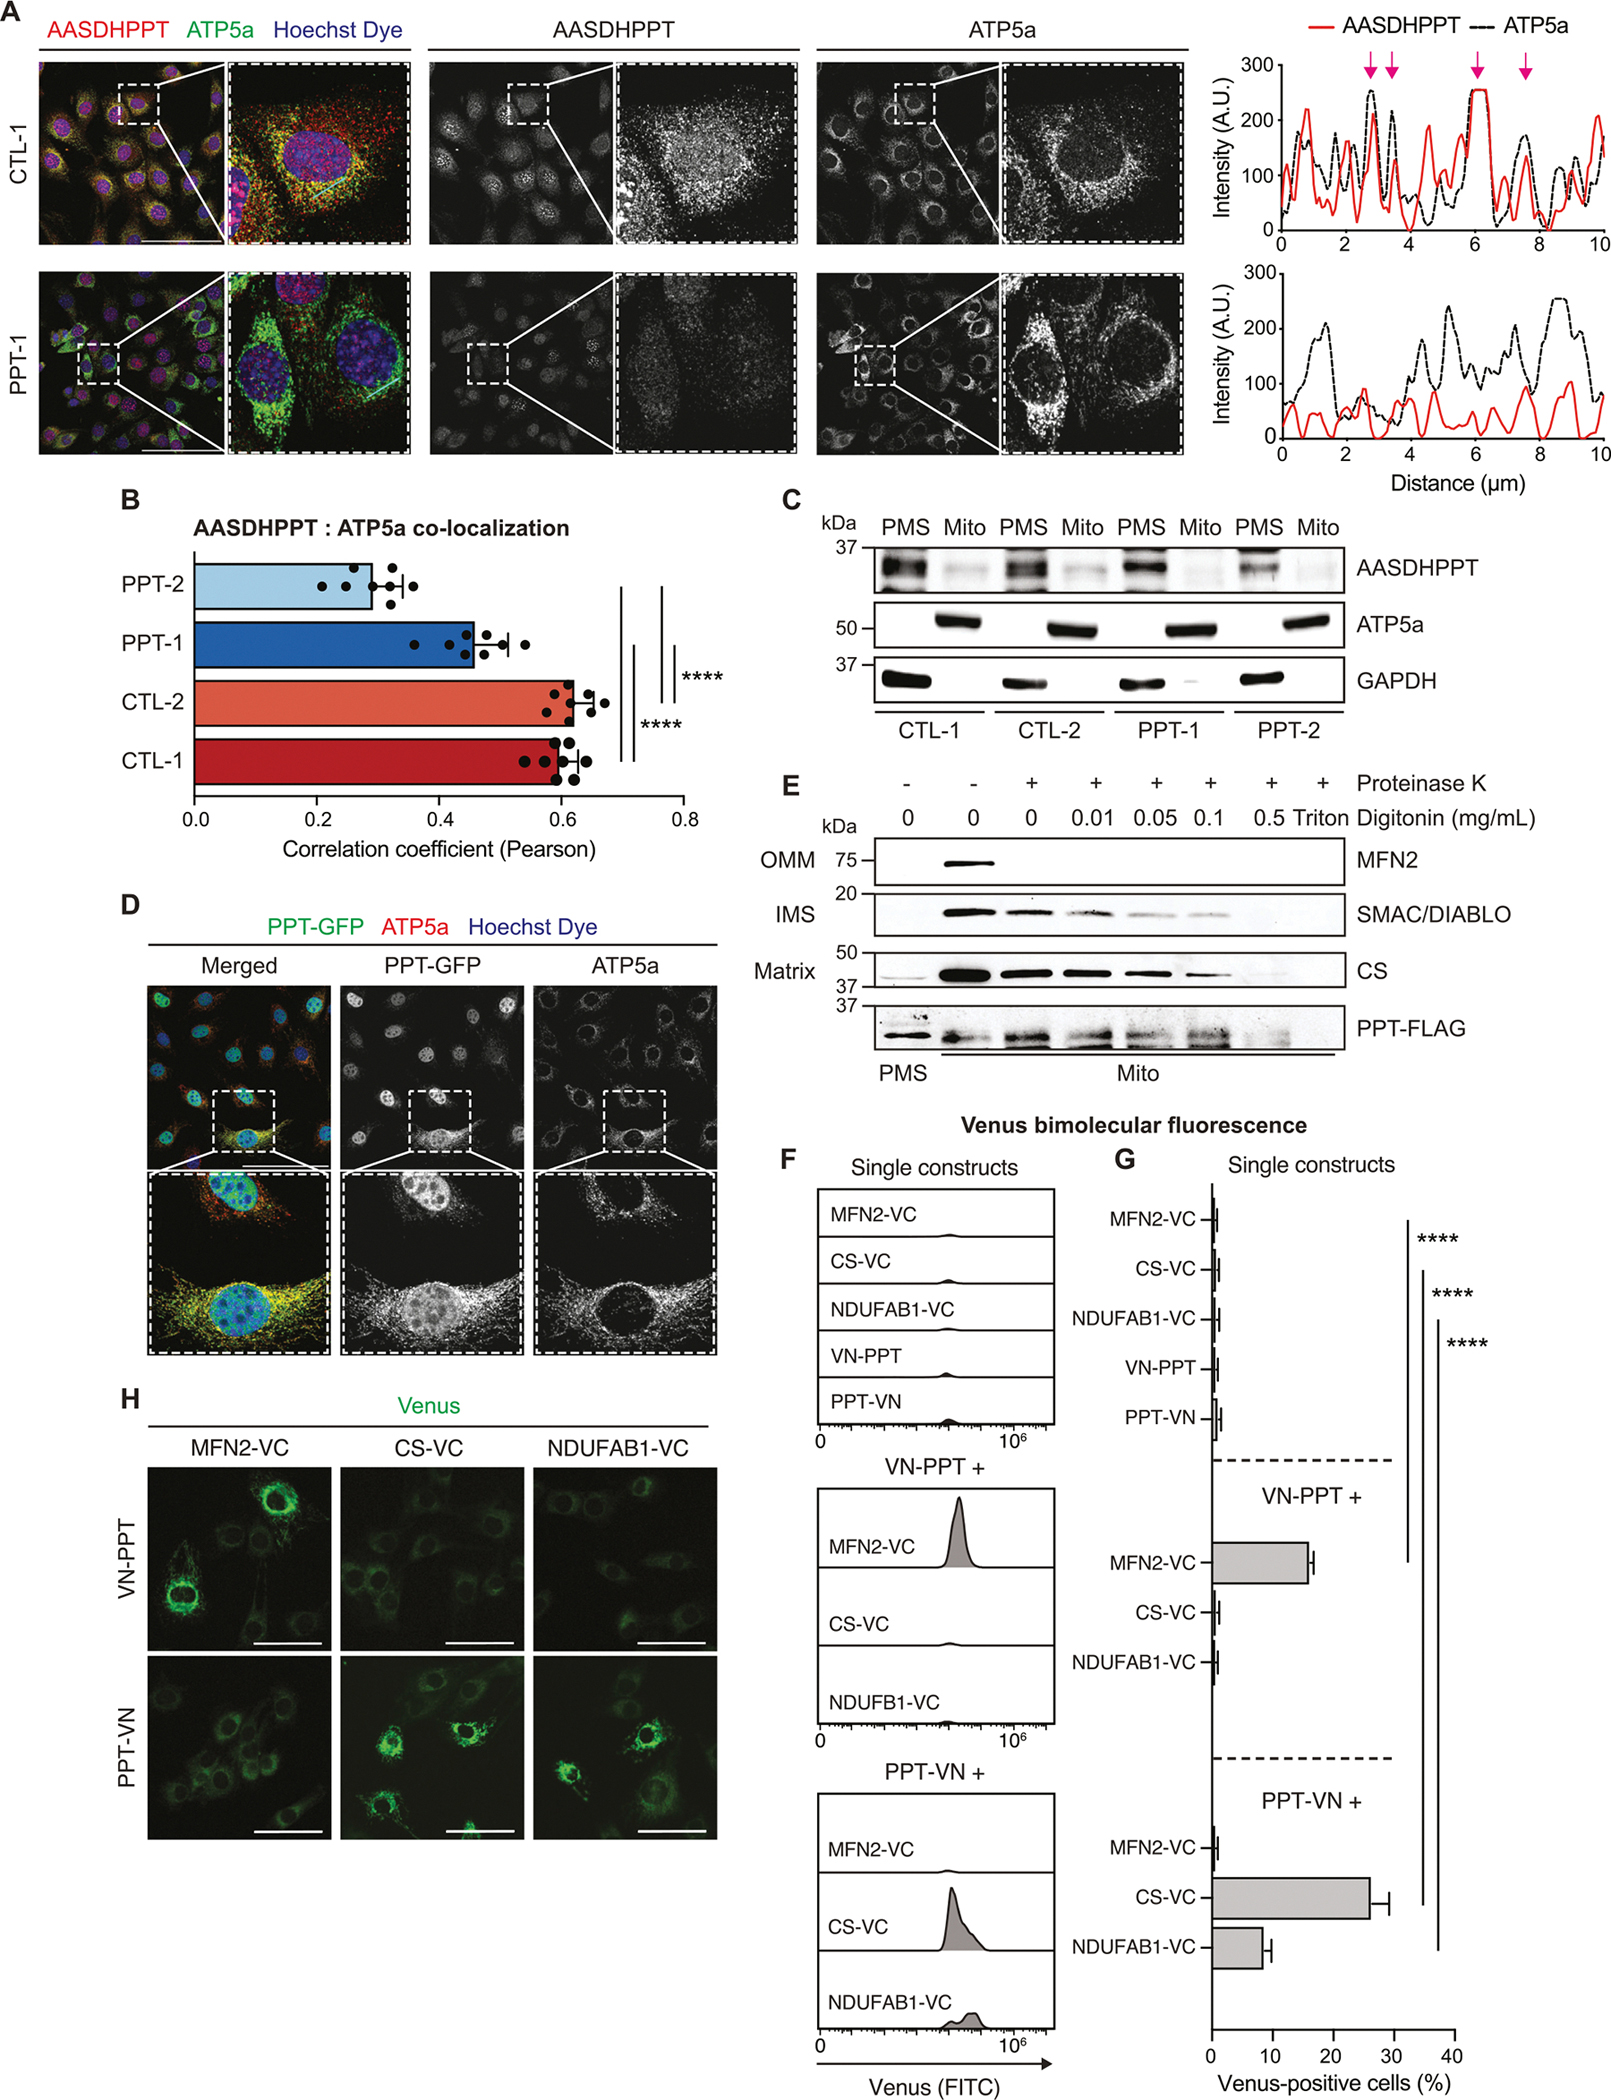
实验目的:明确AASDHPPT是否存在线粒体定位,以及其亚线粒体定位。方法细节:首先通过免疫荧光染色检测内源性AASDHPPT与线粒体标志物ATP5a的共定位,然后通过亚细胞组分分离结合蛋白质免疫印迹验证不同组分中AASDHPPT的表达;进一步通过蛋白酶K保护实验确定AASDHPPT的亚线粒体定位,最后利用双分子荧光互补(BiFC)系统验证AASDHPPT与线粒体基质已知蛋白的共定位。结果解读:免疫荧光结果显示内源性AASDHPPT存在与ATP5a共定位的点状染色,皮尔逊相关系数为0.60-0.62(n=8,P<0.0001),该信号在PPT缺陷细胞中显著降低;亚细胞组分分离结果证实内源性AASDHPPT同时存在于线粒体组分和线粒体后上清组分,PPT缺陷细胞中两个组分的AASDHPPT均降低,线粒体中几乎检测不到。蛋白酶K保护实验结果显示,AASDHPPT的蛋白酶抵抗性与线粒体基质标记物一致,提示AASDHPPT定位于线粒体基质;双分子荧光互补结果显示,仅当AASDHPPT的Venus N端片段与线粒体基质定位的柠檬酸合酶或NDUFAB1的Venus C端片段共表达时,才能检测到显著的Venus荧光信号,最终证实AASDHPPT定位于线粒体基质。
实验所用关键产品:文献未提及具体实验产品,领域常规使用免疫荧光抗体、共聚焦显微镜、流式细胞仪等。
3.4 AASDHPPT线粒体定位信号鉴定
实验目的:明确AASDHPPT线粒体定位的分子基础,鉴定其N端线粒体靶向序列。方法细节:利用MitoFates和DeepMito算法预测AASDHPPT的线粒体靶向序列,构建不同长度的N端截短突变体,通过免疫荧光共定位分析和亚细胞组分分离验证截短体的线粒体定位能力;同时将AASDHPPT的N端36个氨基酸连接到GFP上,验证该序列是否足以驱动GFP定位到线粒体基质,最后通过双分子荧光互补实验验证该序列的靶向能力。结果解读:生物信息学预测显示AASDHPPT的N端存在线粒体前导序列的概率为41.5%,该序列在哺乳动物中高度保守。全长AASDHPPT-GFP与ATP5a的皮尔逊共定位系数约为0.6(n=8,P<0.0001),截短N端1-13位氨基酸后,AASDHPPT-GFP呈弥散分布,共定位系数显著降低(n=8,P<0.0001),亚细胞组分分离显示截短体主要富集于线粒体后上清组分;将N端36个氨基酸连接到GFP后,该融合蛋白可以有效定位到线粒体基质,双分子荧光互补实验证实仅该序列与基质蛋白共表达时可产生荧光信号,说明AASDHPPT的N端36个氨基酸是功能性线粒体靶向序列,对于其线粒体定位是必需且充分的。
实验所用关键产品:文献未提及具体实验产品,领域常规使用分子克隆试剂、荧光显微镜等。
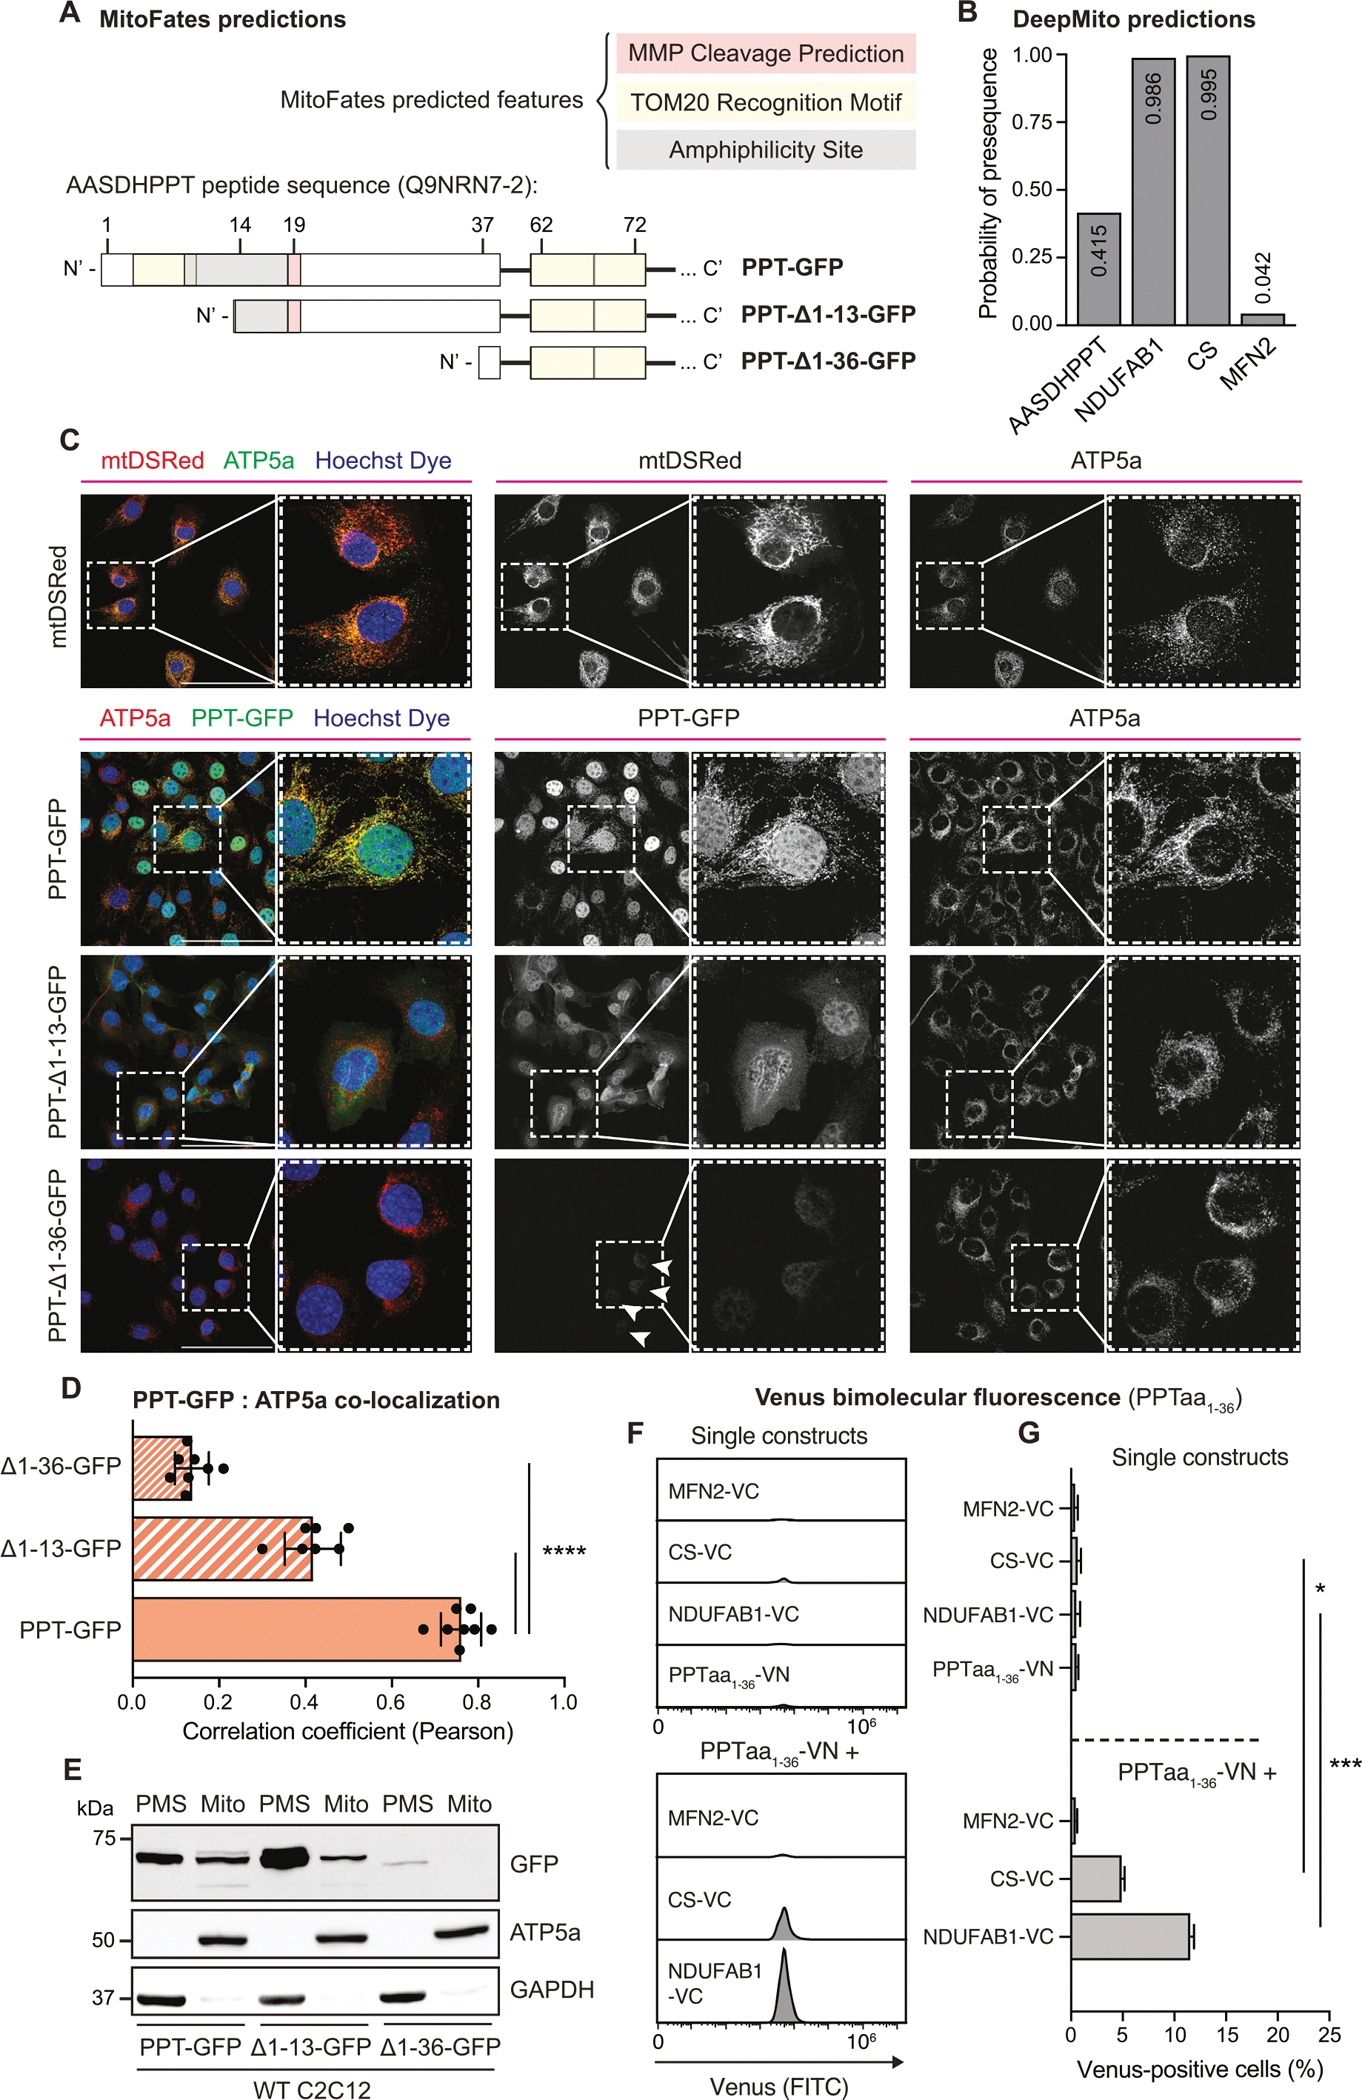
3.5 线粒体定位对AASDHPPT功能的必要性验证
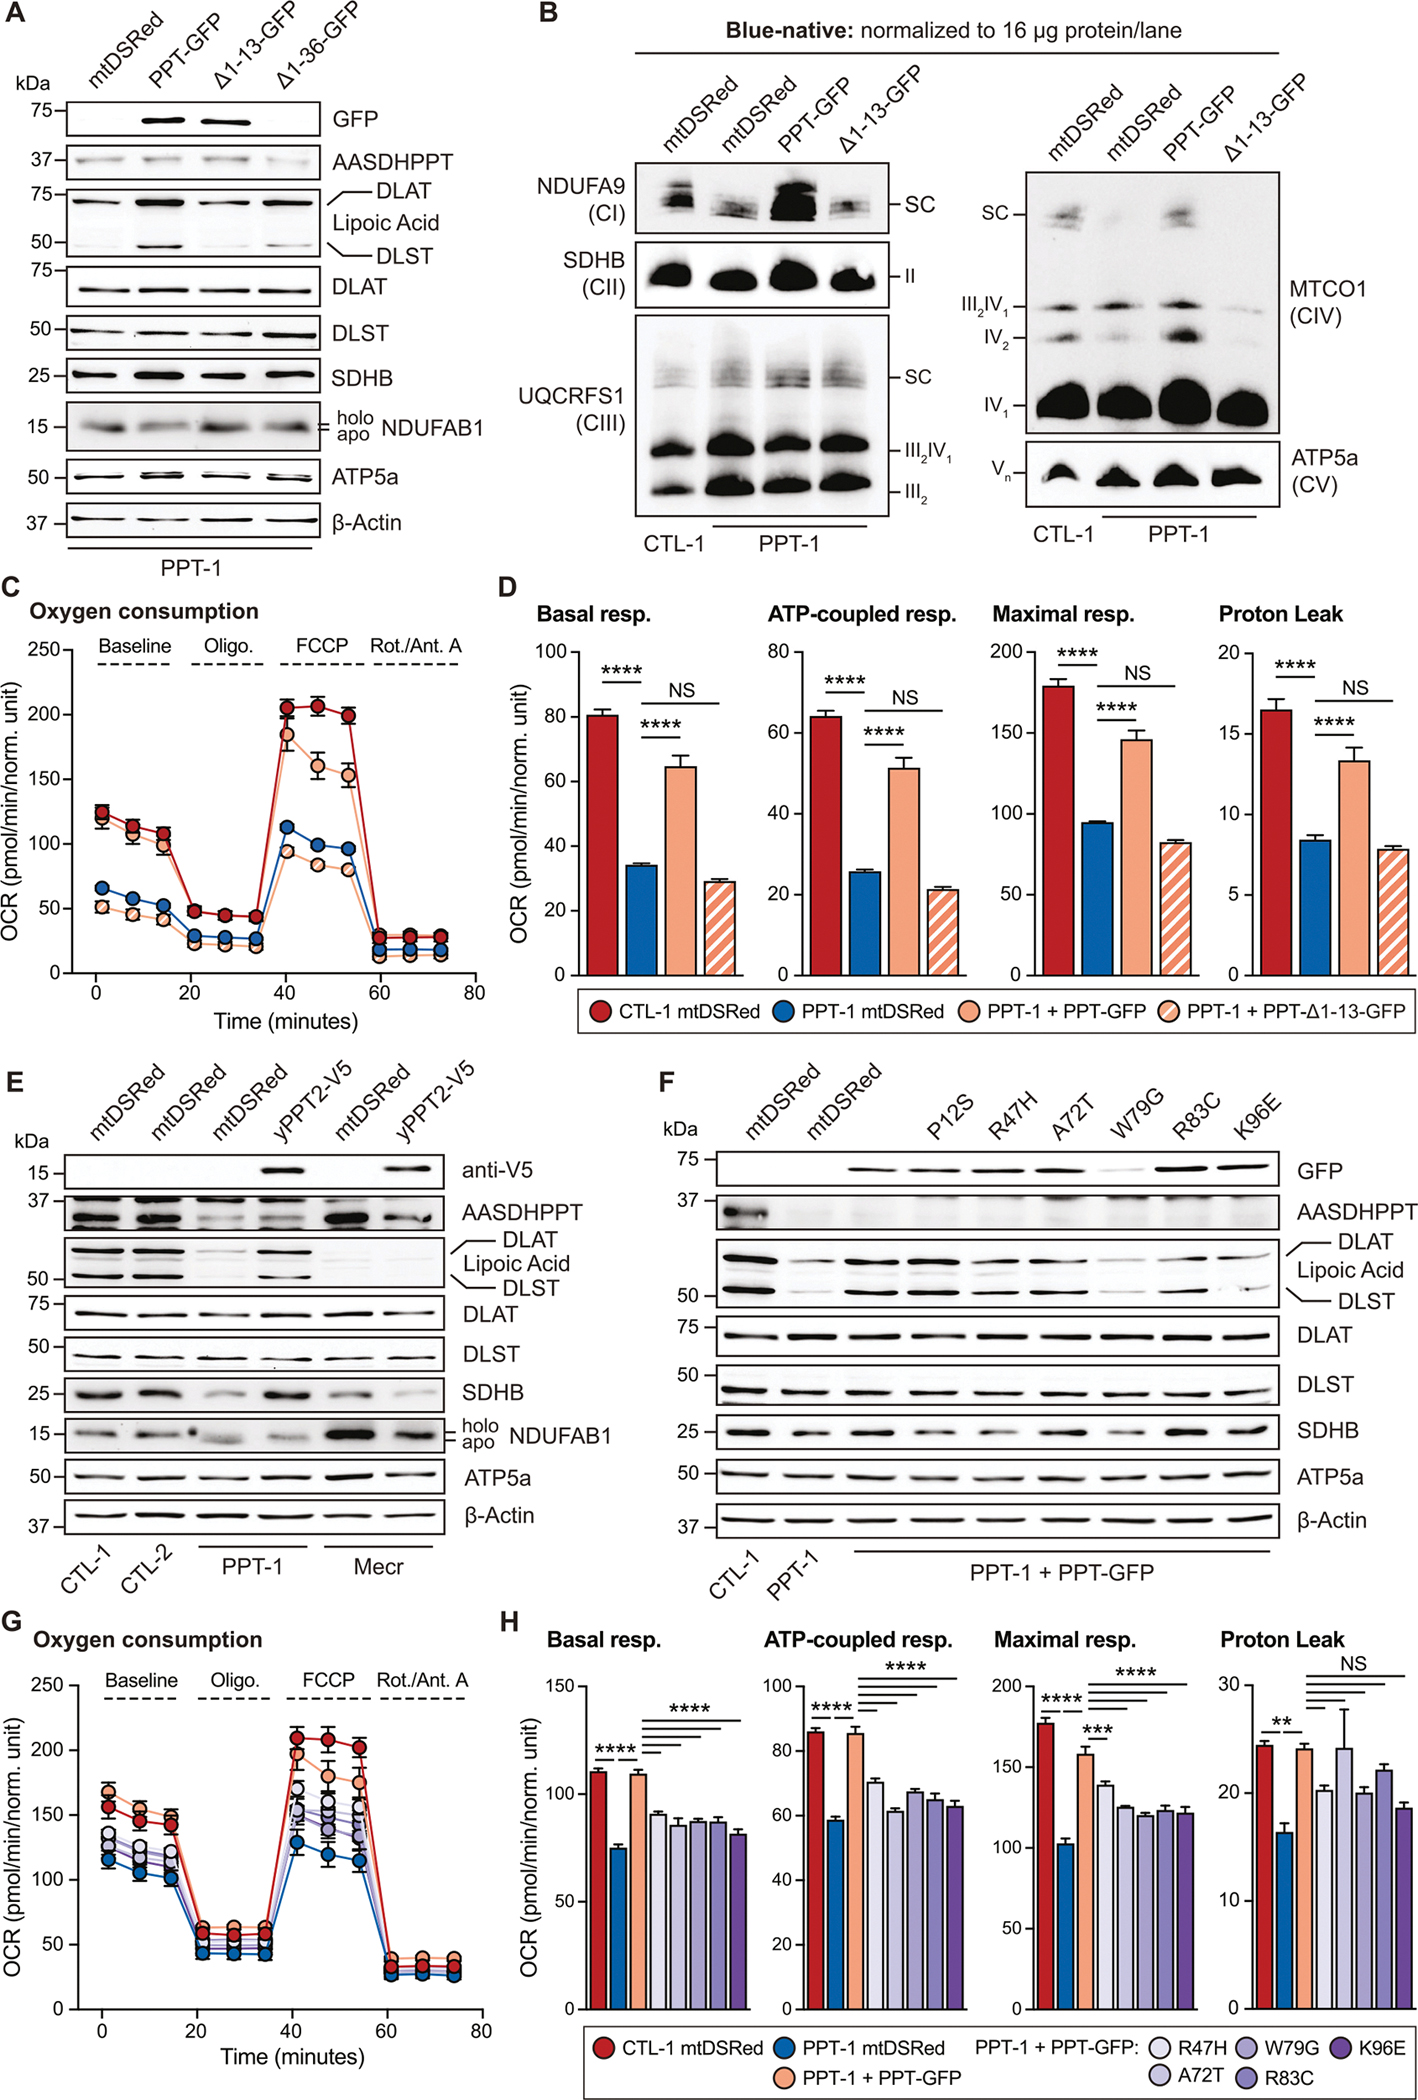
实验目的:验证线粒体定位是否为AASDHPPT发挥调控氧化代谢功能所必需。方法细节:在PPT缺陷细胞中分别表达线粒体定位缺失的N端截短体、全长AASDHPPT以及对照,检测线粒体脂肪酸合成通路终点(蛋白脂酰化、SDHB稳定性、电子传递链复合物水平)以及氧消耗率;同时利用酿酒酵母线粒体特异性PPTase yPpt2回补PPT缺陷细胞,验证线粒体定位的PPTase是否足以逆转表型。结果解读:全长AASDHPPT可以逆转蛋白脂酰化、SDHB稳定性、电子传递链复合物水平以及氧消耗率的异常,而N端截短体无法逆转上述表型,其对基础呼吸和最大呼吸的逆转效率显著低于全长AASDHPPT(P<0.0001)。酿酒酵母yPpt2特异性定位于线粒体基质,可以有效恢复PPT缺陷细胞的蛋白脂酰化、SDHB水平以及NDUFAB1迁移率,且yPpt2无法逆转线粒体脂肪酸合成通路核心酶MECR缺陷细胞的表型,说明yPpt2的逆转作用依赖于下游线粒体脂肪酸合成通路,最终证实线粒体定位的AASDHPPT对于其功能是必需且充分的。
实验所用关键产品:文献未提及具体实验产品,领域常规使用蛋白质免疫印迹试剂、海马能量代谢检测系统等。
3.6 AASDHPPT临床致病变异功能鉴定
实验目的:明确ClinVar数据库中AASDHPPT的错义变异是否存在功能缺陷。方法细节:从ClinVar数据库筛选出6个意义不明确的错义变异,分别构建突变体,在PPT缺陷细胞中表达这些突变体,检测其对线粒体脂肪酸合成终点和线粒体呼吸功能的逆转能力。结果解读:除P12S变异外,其余5个变异(R47H、A72T、W79G、R83C、K96E)的逆转能力均显著弱于野生型AASDHPPT,其中W79G变异蛋白表达水平显著降低,提示该变异导致蛋白不稳定。上述结果提示这5个变异为潜在的致病性变异,其功能缺陷通过影响线粒体脂肪酸合成进而损伤线粒体呼吸功能。
实验所用关键产品:文献未提及具体实验产品,领域常规使用定点突变试剂盒、分子生物学相关试剂。
4. Biomarker研究及发现成果
Biomarker定位:本研究鉴定的生物标志物为AASDHPPT基因的错义变异(R47H、A72T、W79G、R83C、K96E),属于遗传变异类生物标志物,筛选逻辑为:基于本研究发现AASDHPPT功能缺失会导致线粒体脂肪酸合成和氧化代谢损伤,进而从ClinVar数据库中筛选出已在患者中检出的意义未明错义变异,通过细胞功能实验验证其致病性,最终明确其作为潜在致病标志物的价值。
研究过程详述:变异来源为疑似遗传疾病患者的基因组测序数据,提交存储于ClinVar公共数据库,验证方法为通过定点突变构建各变异体质粒,在PPT缺陷细胞中分别表达不同变异体,通过蛋白质免疫印迹检测线粒体脂肪酸合成通路终点指标(蛋白脂酰化水平、SDHB稳定性),通过海马线粒体压力实验检测细胞呼吸功能,将各变异体的 rescue 能力与野生型AASDHPPT进行对比,明确变异的功能影响。统计学结果显示,5个功能缺陷变异 rescue 后的基础呼吸、最大呼吸速率均显著低于野生型 rescue 组(n=3,P<0.01~P<0.0001)。
核心成果提炼:本研究首次明确5种AASDHPPT错义变异存在功能缺陷,其中W79G变异会导致蛋白稳定性降低,所有变异均无法有效 rescue PPT缺陷导致的氧化代谢损伤,提示携带这些变异的患者可能存在线粒体功能异常,该组变异可作为线粒体脂肪酸合成异常相关遗传疾病的致病生物标志物,拓展了线粒体代谢异常相关疾病的致病基因图谱,为临床遗传诊断提供了新的靶点,本研究成果为后续相关疾病的机制研究和治疗探索奠定了基础。