

营养状态强烈调控全球淡水湖泊沉积物中一氧化二氮的产生,但对甲烷的产生没有显著影响。
Trophic status strongly regulates nitrous oxide but not methane production in global freshwater lake sediments
1. 领域背景与文献
发表期刊:Nature Communications;影响因子:未公开;研究领域:淡水湖泊生态系统微生物地球化学循环、温室气体排放调控;
淡水湖泊作为兼具氮汇与温室气体排放源双重功能的核心生态系统,其氮循环过程(硝化、反硝化、厌氧氨氧化)是调控氮去除效率的关键。领域发展关键节点包括:1980年代明确反硝化是内陆水体主要氮去除途径;2000年后宏基因组技术的应用推动了微生物驱动氮循环机制的解析;2010年代以来,富营养化对湖泊温室气体排放的影响成为研究热点。当前研究热点聚焦于营养状态变化下微生物群落结构与功能的响应规律,以及温室气体排放的调控机制。未解决的核心问题包括:不同营养状态下一氧化二氮(N₂O)产生途径的主导机制存在结论矛盾,富营养湖泊中N₂O是由硝化还是反硝化主导仍不明确;甲烷(CH₄)产生与营养状态的调控关系尚未厘清;缺乏营养状态转变过程中温室气体排放动态的实验验证。
针对上述研究空白,本研究通过整合宏基因组测序、批量培养实验、交叉接种模拟实验及全球宏基因组调查,系统解析了营养状态对淡水湖泊沉积物中CH₄和N₂O产生的调控机制,明确了N₂O产生途径随营养状态转变的可逆性,以及甲烷产生与固氮的耦合关系,为全球淡水湖泊温室气体的精准管理提供了科学依据。
2. 文献综述解析
作者以“营养状态-微生物功能-温室气体排放”的调控链条为核心逻辑,按研究尺度(站点尺度、全球尺度)与研究对象(氮循环、甲烷产生)对现有研究进行分类评述,梳理了领域内的共识与争议。
现有研究已明确淡水湖泊是全球重要的氮汇,反硝化去除氮的速率约为厌氧氨氧化的8倍,是内陆水体氮去除的主导途径;富营养化会通过刺激微生物活性促进CH₄和N₂O的排放,其中N₂O的产生途径主要包括硝化过程(氨氧化细菌的羟胺氧化或硝化反硝化)与反硝化过程(不完全反硝化)。现有研究的技术方法优势在于,宏基因组测序能够全面解析微生物群落的功能基因组成,批量培养实验可直接测定温室气体的产生速率,为机制解析提供量化数据;但局限性也较为明显,多数研究仅关注单一湖泊或单一营养状态,缺乏全球尺度的模式验证,且针对营养状态转变过程中温室气体排放动态的研究较少,同时不同研究对富营养湖泊中N₂O主导产生途径的结论存在矛盾,部分研究认为反硝化是主导途径,另一部分则支持硝化主导,这一矛盾导致对N₂O排放调控机制的理解存在偏差。
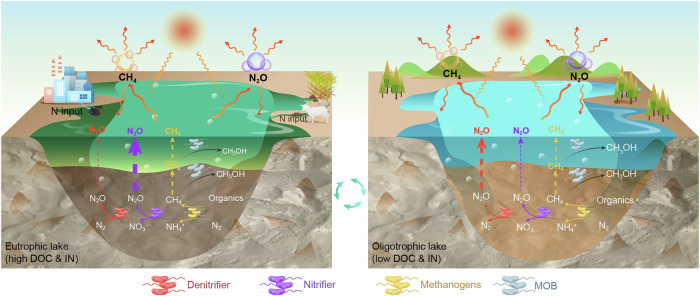
本研究通过交叉接种实验首次模拟了富营养化与贫营养化的连续转变过程,明确了N₂O产生途径的可逆性,即富营养化过程中N₂O产生途径从反硝化主导转变为硝化主导,贫营养化过程则相反,解决了现有研究中的结论矛盾;同时结合全球77个湖泊的宏基因组数据,验证了甲烷产生与古菌固氮的耦合关系,且发现甲烷产生潜力与营养状态无关,填补了全球尺度下营养状态对甲烷产生调控机制的研究空白,为领域内温室气体排放的调控提供了新的范式。
3. 研究思路总结与详细解析
本研究以“站点尺度解析-全球尺度验证-模拟实验揭示动态”为整体技术路线,核心研究目标是揭示营养状态对淡水湖泊沉积物中CH₄和N₂O产生的调控机制,核心科学问题包括不同营养状态下N₂O产生途径的转变机制,以及甲烷产生与营养状态的调控关系,通过“假设-实验验证-数据建模-结论”的闭环逻辑,系统解析了营养状态的调控作用。
3.1 站点尺度氮去除途径的微生物机制解析
实验目的:明确富营养湖泊(东湖)沉积物中氮去除的主导途径,以及微生物群落的氮循环功能特征。方法细节:采集东湖的水和沉积物样品,测定溶解氧、pH、碳氮含量等理化参数;进行宏基因组测序,获得宏基因组组装基因组(MAGs,≥50%完整性,≤50%污染率);开展¹⁵N同位素示踪实验,测定反硝化与厌氧氨氧化的氮去除速率。结果解读:宏基因组分析显示,沉积物中反硝化基因(narG、nirK/S、norB、nosZ)丰度较高,而厌氧氨氧化相关基因(hzs、hdh)未被检测到;¹⁵N同位素示踪实验结果表明,反硝化的氮去除速率显著高于厌氧氨氧化(n=3,P<0.05),证实反硝化是东湖沉积物中氮去除的主导途径;硝化基因(amo、hao、nxr)在沉积物中丰度较高,且与反硝化基因呈显著正相关(P<0.05),说明硝化与反硝化过程紧密耦合,硝化产生的硝酸盐为反硝化提供底物。
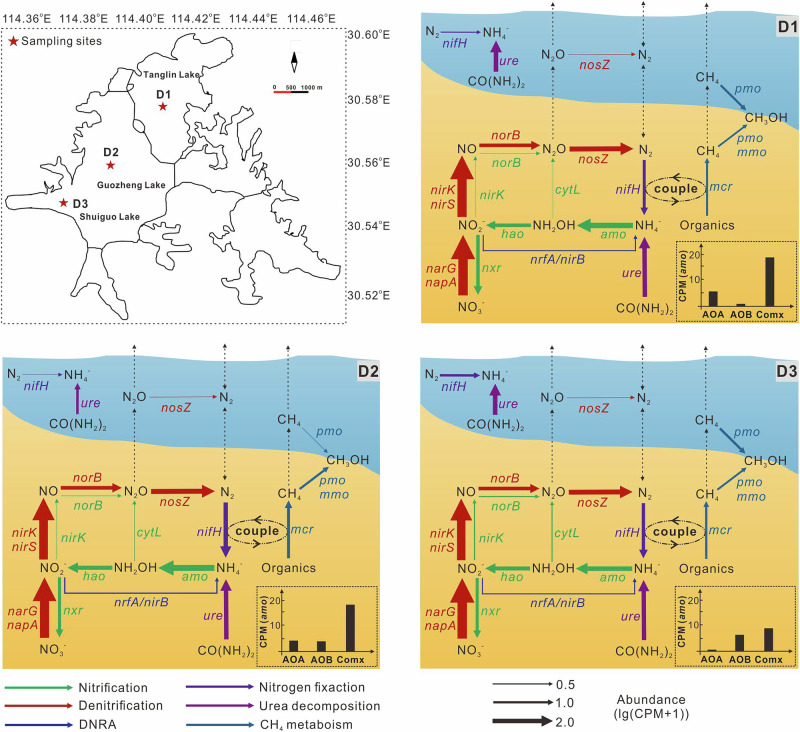
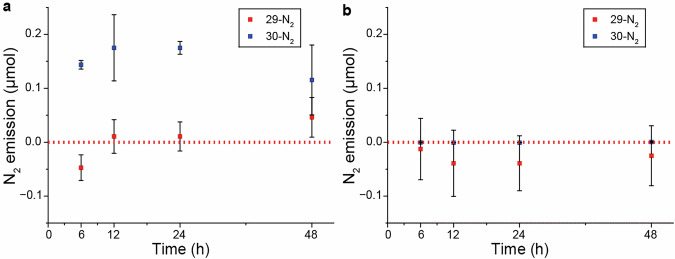
产品关联:文献未提及具体实验产品,领域常规使用宏基因组测序平台(如Illumina NovaSeq)、同位素标记试剂(¹⁵NO₃⁻)、气相色谱质谱联用仪等。
3.2 站点尺度甲烷产生与固氮的耦合关系验证
实验目的:验证东湖沉积物中甲烷产生与微生物固氮过程的耦合关系,明确环境因子对其的调控作用。方法细节:设置批量培养实验,以氩气(Ar)为顶空作为对照组,氮气(N₂)为顶空作为实验组,测定CH₄和NH₄⁺的产生速率;结合宏基因组数据分析甲烷产生标记基因(mcrA)与固氮基因(nifH)的丰度及相关性。结果解读:宏基因组分析显示,沉积物中古菌mcrA与nifH基因丰度较高,且呈显著正相关(P<0.05);批量培养实验结果表明,N₂顶空组的CH₄产生速率为0.586±0.054 nmol CH₄/g(沉积物)/h(n=3,P<0.001),显著高于Ar顶空组的0.285±0.009 nmol CH₄/g(沉积物)/h(n=3),同时N₂顶空组的NH₄⁺产生速率为2.86±0.05 μmol NH₄⁺/g(沉积物)/h(n=3,P<0.001),显著高于Ar顶空组的0.17±0.05 μmol NH₄⁺/g(沉积物)/h(n=3),证实古菌固氮过程为甲烷产生提供氮源,两者存在功能耦合。
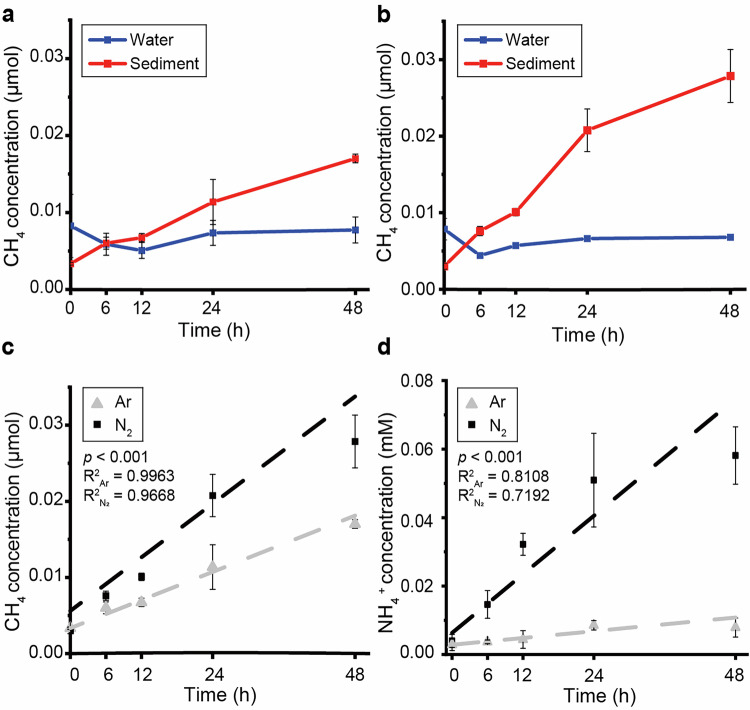
产品关联:文献未提及具体实验产品,领域常规使用气相色谱(用于CH₄测定)、比色法(用于NH₄⁺测定)、高纯气体(Ar、N₂)等。
3.3 站点尺度营养状态对N₂O产生途径的调控解析
实验目的:明确不同营养状态湖泊沉积物中N₂O的主导产生途径,揭示营养状态对N₂O产生的调控机制。方法细节:选取富营养湖泊(东湖、康乐湖)与贫营养湖泊(然乌湖)的沉积物样品,使用硝化抑制剂双氰胺(DCD,2 mM)特异性阻断硝化过程,设置对照组与抑制剂处理组,测定N₂O的产生速率;同时通过宏基因组分析nirS、nirK、nosZ等功能基因的丰度与多样性。结果解读:富营养湖泊(东湖、康乐湖)的沉积物样品中,添加DCD后N₂O产生速率降至可忽略水平,证实硝化是N₂O产生的主导途径;贫营养湖泊(然乌湖)的沉积物样品中,添加DCD后N₂O产生速率无显著变化(P>0.05),证实反硝化是N₂O产生的主导途径。宏基因组分析显示,富营养湖泊沉积物中nirS基因丰度远高于nirK,nirS/nirK比值较高(东湖平均0.7,康乐湖0.6),且nosZ基因(N₂O还原酶基因)的丰度与多样性较高,说明富营养湖泊沉积物具有较强的N₂O汇能力,反硝化过程更完全;而贫营养湖泊沉积物中nirK基因丰度较高,nirS/nirK比值较低(0.3),反硝化过程不完全,导致N₂O积累。
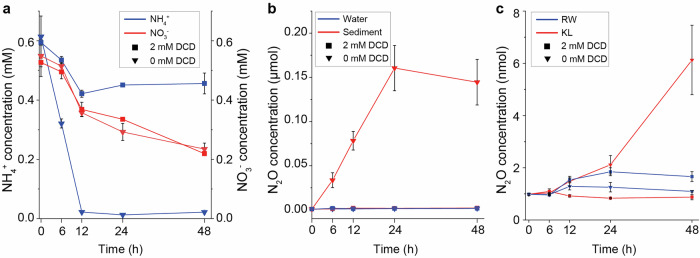
产品关联:实验所用关键产品:双氰胺(DCD,上海麦克林生化,纯度99.7%)、气相色谱(福立GC9790Plus,用于N₂O测定)。
3.4 全球尺度营养状态与温室气体排放的模式验证
实验目的:验证站点尺度研究结果的全球普适性,明确全球淡水湖泊沉积物中CH₄和N₂O产生与营养状态的关联模式。方法细节:收集全球77个淡水湖泊沉积物的宏基因组数据(40个富营养湖泊,37个贫营养湖泊),分析mcrA、nifH、nirS、nirK、nosZ等功能基因的丰度与营养状态的相关性,构建全球尺度的调控模式。结果解读:全球宏基因组分析显示,古菌mcrA与nifH基因丰度呈显著正相关(P<0.001),证实甲烷产生与古菌固氮的耦合关系在全球淡水湖泊沉积物中普遍存在;但mcrA与古菌nifH的丰度与营养状态无显著相关(P>0.05),说明甲烷产生潜力不受营养状态的直接调控,其速率可能受温度、铁硫浓度、湖泊深度等其他环境因子影响。对于N₂O相关功能基因,富营养湖泊沉积物中nirS基因丰度与nirS/nirK比值显著高于贫营养湖泊(P<0.01),nosZ基因的丰度与多样性也更高,说明富营养湖泊沉积物具有更强的N₂O汇能力,而贫营养湖泊沉积物中nirK基因丰度较高,N₂O排放潜力更大。
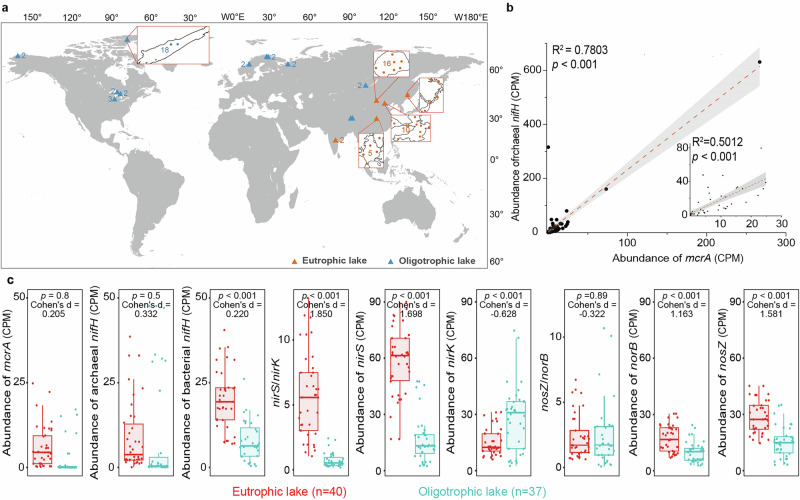
产品关联:文献未提及具体实验产品,领域常规使用宏基因组数据分析工具(如CoverM、Prokka)、R语言统计分析包(如ggpubr、ggplot2)等。
3.5 交叉接种实验模拟营养状态转变的温室气体响应
实验目的:模拟富营养化与贫营养化的连续转变过程,验证N₂O产生途径的可逆性,以及CH₄产生速率与营养状态的关系。方法细节:将贫营养然乌湖沉积物接种到灭菌的富营养康乐湖沉积物中(接种比例25%、50%、75%),模拟富营养化过程;将富营养康乐湖沉积物接种到灭菌的贫营养然乌湖沉积物中(接种比例25%、50%、75%),模拟贫营养化过程。设置对照组与DCD处理组,测定N₂O产生速率;同时测定不同营养状态下的CH₄产生速率。结果解读:模拟富营养化过程中,当营养状态达到中度富营养(接种比例25%然乌湖+75%康乐湖)时,添加DCD显著抑制N₂O排放(P<0.05),说明硝化成为N₂O产生的主导途径;当营养状态为轻度富营养或中营养时,添加DCD对N₂O排放无显著影响(P>0.05),说明反硝化仍为主导途径。模拟贫营养化过程中,当营养状态降至中营养以下时,添加DCD不再显著抑制N₂O排放(P>0.05),说明反硝化重新成为主导途径;而在中度富营养状态下,添加DCD仍显著抑制N₂O排放(P<0.05),说明硝化仍为主导途径。CH₄产生速率在模拟富营养化与贫营养化过程中均与营养状态无显著相关(P>0.05),进一步证实甲烷产生潜力不受营养状态的直接调控。
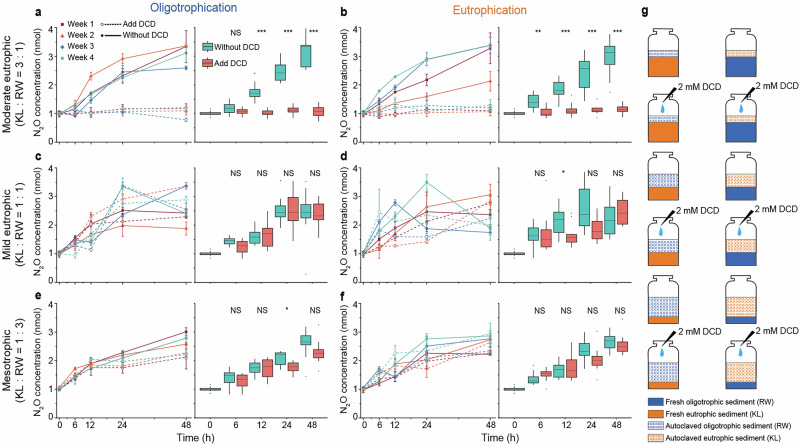
产品关联:实验所用关键产品:气相色谱(安捷伦GC 8890,用于N₂O和CH₄测定)、实时荧光定量PCR系统(Bio-Rad CFX Opus 96,用于nirS和nirK基因丰度定量)。
4. Biomarker研究及发现成果解析
本研究以微生物功能基因为核心Biomarker,构建了“功能基因丰度-营养状态-温室气体排放”的关联模型,明确了不同Biomarker的指示功能与应用价值。
Biomarker定位:涉及的Biomarker包括甲烷产生标记基因mcrA、固氮基因nifH、反硝化功能基因nirS与nirK、N₂O还原酶基因nosZ。筛选逻辑为:通过宏基因组测序从淡水湖泊沉积物中筛选氮循环与甲烷产生的关键功能基因,结合批量培养实验验证基因丰度与温室气体产生速率的相关性,再通过全球宏基因组数据验证其全球普适性,最终确定可指示营养状态与温室气体排放的Biomarker。
研究过程详述:Biomarker的来源为全球77个淡水湖泊沉积物的宏基因组数据及3个典型湖泊的培养实验样品。验证方法包括:宏基因组丰度分析(通过CoverM计算基因覆盖度)、实时荧光定量PCR(qPCR)定量nirS与nirK基因丰度、批量培养实验测定CH₄与N₂O的产生速率。特异性与敏感性方面,nirS/nirK比值作为N₂O产生途径与营养状态的指示Biomarker,在富营养湖泊中比值高于0.6,对应硝化主导N₂O产生,特异性与敏感性均较高;mcrA与nifH的相关性作为甲烷-固氮耦合的指示Biomarker,全球尺度相关系数显著(P<0.001),可有效指示两者的功能耦合关系。
核心成果提炼:nirS/nirK比值可作为可靠的Biomarker,用于指示淡水湖泊沉积物的营养状态与N₂O产生途径,比值越高,湖泊营养状态越富营养,N₂O产生越倾向于硝化主导,且N₂O汇能力越强;古菌mcrA与nifH的耦合关系是全球淡水湖泊沉积物的普遍特征,但甲烷产生潜力与营养状态无关,其速率受温度、铁硫浓度等其他环境因子调控。本研究首次揭示了nirS/nirK比值随营养状态转变的动态变化,以及N₂O产生途径的可逆性,相关成果的统计学结果包括:nirS/nirK比值在富营养与贫营养湖泊间差异显著(P<0.001),mcrA与nifH的全球相关性显著(P<0.001),交叉接种实验中N₂O产生速率的组间差异显著(P<0.05)。