

KYSE150食管鳞状细胞癌细胞中转座元件和TE基因嵌合体的治疗性应激诱导重塑
Therapeutic Stress-Induced Remodeling of Transposable Elements and TE-Gene Chimeras in KYSE150 Esophageal Squamous Cell Carcinoma Cells
1. 领域背景与文献
文献英文标题:Therapeutic Stress-Induced Remodeling of Transposable Elements and TE-Gene Chimeras in KYSE150 Esophageal Squamous Cell Carcinoma Cells;
发表期刊:文献未明确提供;影响因子:文献未明确提供;研究领域:食管鳞状细胞癌(肿瘤学)
食管鳞状细胞癌(ESCC)是食管癌的主要病理亚型,具有高度侵袭性,因诊断延迟和治疗手段受限,临床预后普遍较差。现有局部治疗如125I粒子近距离放疗可通过诱导活性氧(ROS)生成、DNA损伤及内质网应激(ERS)等发挥抗肿瘤作用,但ESCC细胞对其存在天然耐药性,限制了治疗效果。卡非佐米(CFZ)作为不可逆蛋白酶体抑制剂,可破坏蛋白稳态、诱导内质网应激并抑制内质网相关降解(ERAD)通路,近年研究显示其与125I粒子放疗联合可通过增强细胞应激水平显著促进ESCC细胞死亡,涉及凋亡、副凋亡、铁死亡等多种细胞死亡方式。
领域共识:转座元件(TE)曾被视为“垃圾DNA”,现已证实其可作为基因组活性的重要调控因子,在正常细胞中通过DNA甲基化、组蛋白修饰等机制被沉默,而在细胞应激(如放疗、药物处理)状态下可被激活,产生TE-基因嵌合转录本,这类嵌合体可通过癌基因捕获重排致癌通路、作为肿瘤特异性新抗原被MHC-I呈递,或通过胞质核酸感应通路诱导先天免疫应答。
当前研究空白:现有ESCC相关研究多聚焦于联合治疗诱导细胞死亡的机制,而对这种联合应激下转座元件转录组的重塑特征,以及TE-基因嵌合体的形成规律与功能关联尚未系统阐明;针对ESCC中转座元件激活的动态变化,尤其是联合治疗范式下的特异性表征仍存在研究缺口。本研究旨在填补这一空白,通过对KYSE150食管鳞状细胞癌细胞经125I联合卡非佐米处理后的RNA-seq数据进行系统分析,全面解析转座元件的差异表达模式及TE-基因嵌合体的类别特异性变化,揭示治疗应激对转座元件活性及转录组结构的影响,为ESCC的治疗应激响应机制提供新的理论依据。
2. 文献综述解析
作者对领域内现有研究按研究方向分为三类:ESCC联合治疗的细胞死亡机制研究、应激诱导转座元件激活的基础研究、TE-基因嵌合体的功能调控研究,通过对比不同研究的结论与局限性,凸显本研究在联合应激下转座元件转录组研究领域的创新性与必要性。
现有研究的关键结论包括:125I粒子放疗可通过诱导DNA损伤、内质网应激等发挥抗肿瘤作用,但ESCC细胞的天然耐药性降低了其临床疗效;卡非佐米可通过抑制蛋白酶体活性破坏蛋白稳态,诱导内质网应激及相关通路抑制,二者联合可通过叠加细胞应激效应显著增强ESCC细胞的多种死亡方式;细胞应激可打破转座元件的沉默状态,激活其转录并产生TE-基因嵌合转录本,这类嵌合体具有调控肿瘤细胞表型、参与免疫应答的潜在功能。现有研究的技术方法优势在于,针对细胞死亡机制的研究已通过多组实验验证了联合治疗的协同效应,如通过检测ROS水平、钙超载、蛋白泛素化等指标明确了细胞应激的增强作用。但现有研究也存在明显局限性:多数研究仅聚焦于联合治疗诱导的细胞死亡通路,未深入探究这种应激状态对转座元件转录组的影响;对ESCC中转座元件激活的研究多基于单一应激源,缺乏联合治疗范式下的系统表征;针对TE-基因嵌合体的研究尚未明确其在ESCC治疗应激响应中的具体作用模式。
本研究的创新价值在于,首次系统分析了125I粒子放疗与卡非佐米联合处理后,KYSE150食管鳞状细胞癌细胞中转座元件的差异表达特征及TE-基因嵌合体的类别特异性变化,填补了ESCC联合治疗应激下转座元件转录调控研究的空白;通过关联TE-基因嵌合体与基因表达的变化,揭示了转座元件在治疗应激诱导的转录组重塑中的潜在调控作用,为进一步探索TE衍生的新抗原作为ESCC免疫治疗靶点提供了理论基础。
3. 研究思路总结与详细解析
本研究的整体框架为“数据获取→生物信息学分析→结果验证与关联→功能解读”,研究目标是阐明125I联合卡非佐米的治疗应激对KYSE150细胞中转座元件转录组及TE-基因嵌合体的影响,核心科学问题是联合应激如何调控转座元件的转录激活及TE-基因嵌合体的形成,以及这些变化与基因表达调控的关联,通过多维度的生物信息学分析构建了治疗应激下转座元件重塑的完整图谱。
3.1 数据获取与预处理
实验目的是获取高质量的RNA-seq测序数据,为后续转座元件及TE-基因嵌合体的分析提供可靠基础。方法细节为从NCBI序列读取档案(SRA)数据库获取KYSE150细胞经125I联合卡非佐米处理及未处理对照组的RNA-seq数据,每组包含3个生物学重复,使用SRA Toolkit和fastq-dl工具下载FASTQ文件,通过FastQC进行数据质量评估,采用Trimmomatic v0.39进行接头修剪和低质量碱基去除,丢弃Phred质量评分<20且长度<36bp的测序读段。结果解读为经过预处理后获得了符合分析要求的高质量测序数据,确保后续生物信息学分析的准确性与可靠性。产品关联:文献未提及具体实验产品,领域常规使用SRA Toolkit、FastQC、Trimmomatic等生物信息学工具。
3.2 差异表达转座元件的表征
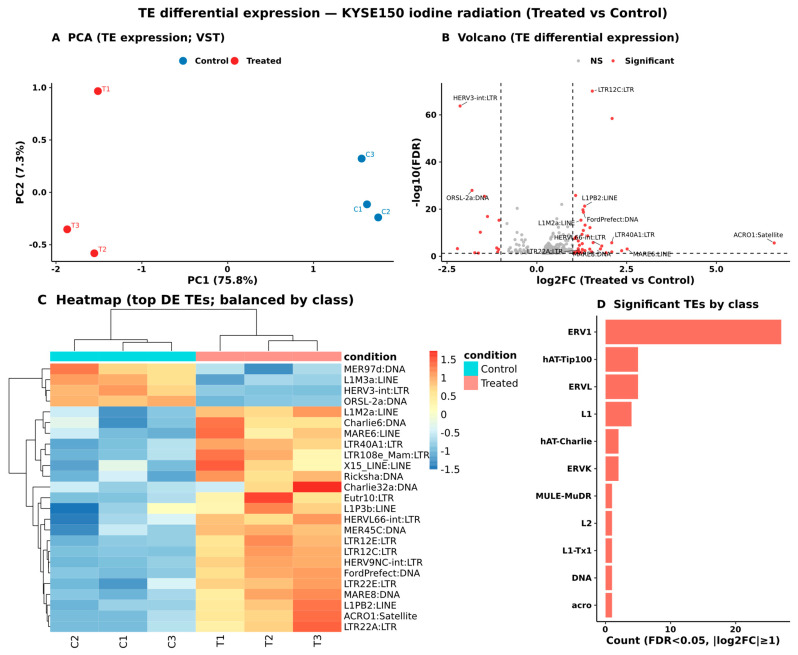
实验目的是分析联合处理后KYSE150细胞中转座元件的差异表达模式,明确应激诱导的转座元件激活特征。方法细节为使用STAR v2.7.11b将预处理后的测序读段比对到人类参考基因组GRCh38,采用TEtranscripts v2.2.3软件结合DESeq2 v1.44.x统计框架,对转座元件的表达进行定量与差异分析,设定差异表达阈值为错误发现率(FDR)<0.05且|log2倍数变化(log2FC)|>1,通过定制化R脚本绘制主成分分析(PCA)图、火山图、层次聚类热图等进行可视化。结果解读为联合处理后共鉴定到148个显著差异表达的转座元件(FDR<0.05,|log2FC|>1,n=3),PCA图显示处理组与对照组的转座元件表达模式存在明显分离,验证了放疗诱导的转座元件转录组的一致性改变;层次聚类热图显示差异表达转座元件在生物学重复中呈现协调的上调或下调模式,表明转座元件对治疗应激的响应具有选择性而非随机激活;类别水平分析显示逆转录转座子家族在差异表达元件中显著富集,其中ERV1长末端重复(LTR)元件受影响最大(n=27),其次为ERVL(n=5)、ERVK(n=2)及LINE元件L1(n=4),DNA转座子如hAT-Tip100(n=5)也存在显著差异表达,提示治疗应激主要影响逆转录转座子来源的元件,尤其是内源性逆转录病毒的转录活性。产品关联:文献未提及具体实验产品,领域常规使用STAR、TEtranscripts、DESeq2等生物信息学工具。
3.3 TE-基因嵌合体的类别特异性分析
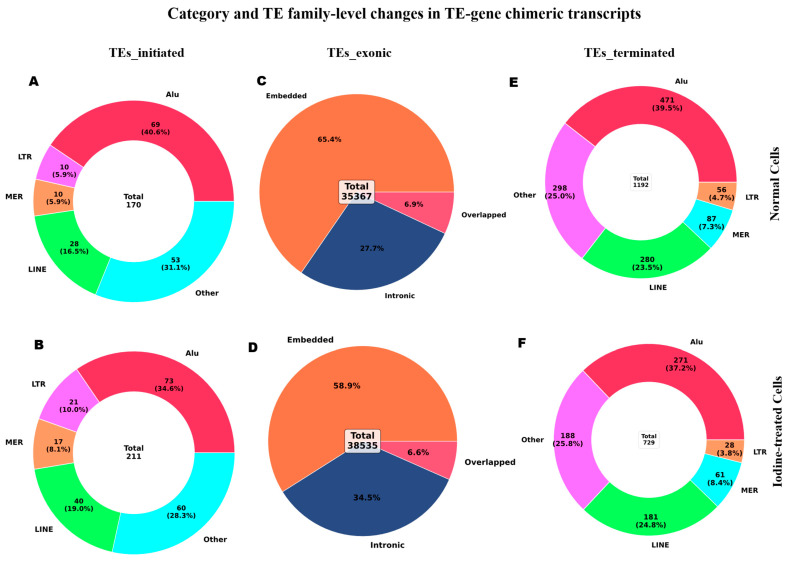
实验目的是鉴定联合处理后KYSE150细胞中TE-基因嵌合转录本的类型,分析不同类别嵌合体的动态变化特征。方法细节为使用ChimeraTE v1.0软件(基于参考基因组GRCh38的Mode1模式)对预处理后的RNA-seq数据进行分析,将嵌合体分为TE起始型、TE外显子型、TE末端型三类,统计不同类别嵌合体在处理组与对照组中的数量及转座元件家族分布。结果解读为联合处理后,TE起始型嵌合体从170个增加到211个,TE外显子型从35367个增加到38535个,而TE末端型从1192个减少到729个;家族水平分析显示TE起始型嵌合体中LINE、LTR、MER元件的参与比例显著升高,TE外显子型中内含子型嵌合体从9792个增加到13285个,嵌入型从23119个减少到22710个;共鉴定到301个统计学显著的TE-嵌合事件(FDR<0.05,n=3),其中短散在核元件(SINE)/Alu家族是主要驱动者,AluSx(24个基因)、AluJb(20个基因)、MIRb(18个基因)参与的嵌合事件最多,表明联合治疗应激可诱导TE-基因嵌合体的类别特异性重塑。产品关联:文献未提及具体实验产品,领域常规使用ChimeraTE等生物信息学工具。
3.4 TE-基因嵌合体的伙伴选择与基因表达关联
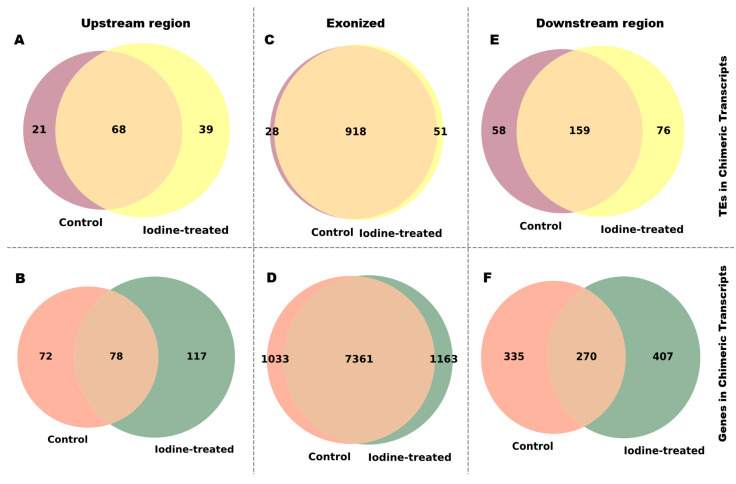
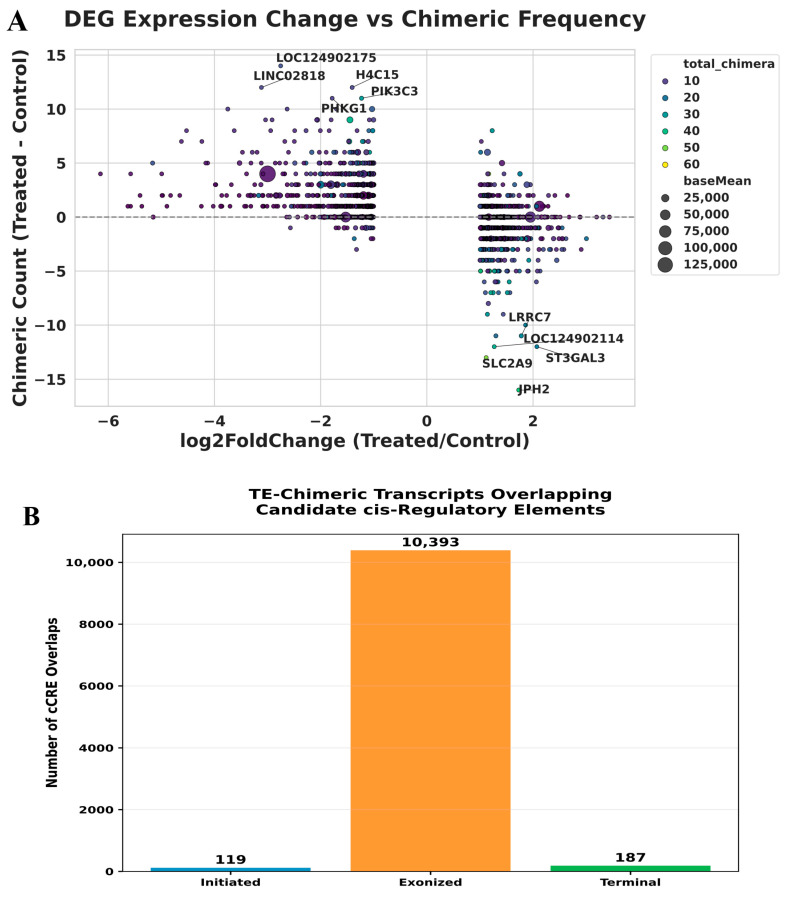
实验目的是分析转座元件与基因在嵌合体形成中的伙伴选择模式,以及TE-基因嵌合体与基因表达变化的关联。方法细节为通过韦恩图分析处理组与对照组中参与嵌合体形成的转座元件和基因的重叠情况,采用Pearson和Spearman相关性分析基因表达变化与嵌合体频率的关系,使用DESeq2分析与嵌合体相关的基因的差异表达情况。结果解读为韦恩图显示处理组中参与嵌合体的独特转座元件和基因数量均显著增加,TE起始型中独特转座元件从21个增加到39个,独特基因从72个增加到117个;转座元件的伙伴选择模式显示AluSx、AluJb、MIRb等家族可与多个基因形成嵌合体,而部分基因仅与少数转座元件家族关联,呈现出明显的hub-like行为;差异表达分析显示TE外显子型关联的基因中有1460个差异表达基因(779个上调,681个下调,n=3),TE末端型关联112个差异表达基因,TE起始型关联42个差异表达基因;基因表达变化与嵌合体频率呈显著负相关(Pearson r=-0.556,p=4.69×10^-119;Spearman r=-0.601,p=7.34×10^-144,n=3),即表达下调的基因往往伴随更高的嵌合体频率,提示TE-基因嵌合体的形成可能参与基因表达的负调控。产品关联:文献未提及具体实验产品,领域常规使用R语言、DESeq2等生物信息学工具。
3.5 功能富集与表观遗传关联分析
实验目的是解析与TE-基因嵌合体相关的基因的功能通路,以及嵌合体与基因组顺式调控元件的关联。方法细节为使用clusterProfiler v4.18.4 R包进行基因本体(GO)和京都基因与基因组百科全书(KEGG)通路富集分析,采用BEDTools v2.30.0分析TE-基因嵌合体与候选顺式调控元件(cCREs)的重叠情况。结果解读为GO富集分析显示上调基因主要富集在细胞分裂、DNA损伤应答等过程,下调基因主要富集在自噬相关过程;KEGG分析显示上调基因参与DNA复制、细胞周期、碱基切除修复等通路,提示联合治疗应激通过调控这些通路影响ESCC细胞的生物学行为;TE-外显子型嵌合体与10393个候选顺式调控元件存在重叠,表明TE外显子化多发生在调控活性基因组区域,可能改变局部染色质可及性和转录因子结合图谱。产品关联:文献未提及具体实验产品,领域常规使用clusterProfiler、BEDTools等生物信息学工具。
4. Biomarker研究及发现成果
本研究中潜在的生物标志物为与TE-基因嵌合体相关的转座元件家族及关联基因,筛选逻辑为通过RNA-seq数据鉴定差异表达的转座元件及TE-基因嵌合体→关联基因表达变化→功能富集分析→筛选高影响候选事件,为ESCC的治疗应激响应及免疫治疗靶点探索提供了新的方向。
Biomarker的来源为KYSE150食管鳞状细胞癌细胞的转录组数据(处理组和对照组,n=3),验证方法为多维度的生物信息学分析,包括差异表达分析、嵌合体鉴定、相关性分析、功能富集分析等。特异性与敏感性数据显示,共鉴定到301个统计学显著的TE-嵌合事件(FDR<0.05,n=3),其中SINE/Alu家族是嵌合体形成的主要驱动者,AluSx、AluJb、MIRb参与的嵌合事件数量最多;基因表达变化与嵌合体频率的负相关具有极高的统计学显著性(Pearson r=-0.556,p=4.69×10^-119;Spearman r=-0.601,p=7.34×10^-144,n=3)。
核心成果包括:发现联合治疗应激可诱导转座元件转录组的选择性重塑,ERV1 LTR元件为显著差异表达的转座元件家族;揭示了TE-基因嵌合体的类别特异性变化,TE起始型和外显子型嵌合体数量增加,TE末端型减少,且参与嵌合体的转座元件和基因的多样性显著提升;明确了转座元件与基因在嵌合体形成中的不对称伙伴选择模式,部分TE家族可作为应激响应的融合枢纽,快速扩展转录组多样性;证实了基因表达变化与TE-基因嵌合体频率的显著负相关,提示TE嵌合体可能参与治疗应激下的基因表达调控;功能富集显示相关基因参与细胞周期、DNA修复、自噬等关键通路,这些通路与ESCC的治疗应激响应密切相关。本研究的创新性在于首次系统阐明了125I联合卡非佐米处理下ESCC细胞中转座元件及TE-基因嵌合体的重塑特征,为ESCC的治疗应激机制研究提供了新的视角,同时也为后续探索TE衍生的新抗原作为ESCC免疫治疗靶点提供了潜在的生物标志物候选。