

Jagged介导的侧向诱导模式Notch3信号在成年神经干细胞群中的作用
Jagged-mediated lateral induction patterns Notch3 signaling within adult neural stem cell populations
1. 领域背景与文献
文献英文标题:Jagged-mediated lateral induction patterns Notch3 signaling within adult neural stem cell populations;
发表期刊:Nature Communications;影响因子:17.6(2025年);研究领域:神经干细胞生物学、Notch信号通路调控
神经干细胞(NSCs)在成年脊椎动物脑中持续维持神经发生,调控脑的可塑性、损伤修复及稳态维持,其静息、激活、自我更新及神经分化的命运决定受严格的时空精准调控。Notch信号通路是NSCs命运调控的核心通路,不同Notch受体亚型在NSCs命运决定中发挥差异化功能:Notch1主要在NSCs激活后限制神经分化,Notch2和Notch3则在静息NSCs中高表达并维持静息状态。然而,成年NSCs群中Notch3信号的时空模式调控机制仍不明确,尤其是配体介导的信号调控方式及Delta与Jagged两类配体的协同作用机制尚未被系统解析。当前研究空白在于缺乏直接、定量的Notch3信号在体检测工具,无法精准解析Notch3信号的时空分布模式及配体介导的调控机制;同时,Jagged配体在成年NSCs中的功能及与Notch3的相互作用模式认知不足,不同配体的协同调控机制尚未被系统研究。本研究通过构建两种Notch3信号转基因报告鱼系,首次实现了成年斑马鱼端脑NSCs中Notch3信号的在体动态可视化与定量分析,解析了Jagged1b介导的侧向诱导与DeltaA介导的侧向抑制协同调控Notch3信号时空模式的机制,为成年NSCs命运调控的时空精准性提供了新的理论依据,填补了领域内相关研究空白。
2. 文献综述解析
作者对领域内Notch信号调控成年NSCs的研究按受体亚型(Notch1/2/3)及配体类型(Delta/Jagged)进行分类评述,系统梳理了不同Notch受体在NSCs命运决定中的功能差异,以及配体介导的信号调控模式的研究进展。
既往研究表明,Notch1在NSCs激活后通过抑制神经分化相关基因的表达维持NSCs的增殖状态,Notch2和Notch3则通过调控静息相关基因的表达维持NSCs的静息状态;Delta配体主要通过侧向抑制模式调控NSCs激活的空间分布,避免NSCs在局部区域过度激活,而Jagged配体在神经发生中的作用及调控模式研究相对较少。技术方法方面,既往研究主要利用基因敲除、药物抑制等手段解析Notch信号的功能,部分研究结合单细胞转录组技术揭示NSCs亚群的基因表达特征;但现有研究存在明显局限性,缺乏直接、动态、定量的Notch3信号在体检测工具,无法精准解析Notch3信号的时空分布模式及配体介导的调控机制;对Jagged配体在成年NSCs中的功能及与Notch3的相互作用模式认知不足,且不同配体的协同调控机制尚未被系统解析。
本研究的创新价值体现在三个核心维度:一是首次构建了两种可直接、定量检测成年斑马鱼端脑NSCs中Notch3信号的转基因报告系,实现了Notch3信号的在体动态可视化与定量分析,解决了领域内缺乏精准Notch3信号检测工具的问题;二是首次系统解析了Jagged1b介导的侧向诱导与DeltaA介导的侧向抑制协同调控Notch3信号时空模式的机制,明确了Jagged1b在维持NSCs干细胞性中的关键作用,填补了成年NSCs中Jagged-Notch3信号调控机制的研究空白;三是首次将核内N3ICD水平作为成年NSCs静息状态与干细胞性的定量Biomarker,为NSCs命运状态的在体检测提供了新的工具。
3. 研究思路总结与详细解析
本研究的研究目标是解析成年NSCs群中Notch3信号的时空模式调控机制,核心科学问题是Jagged与Delta配体如何协同调控Notch3信号的时空分布及NSCs命运决定,技术路线遵循“构建工具→验证功能→解析模式→鉴定配体→揭示机制”的闭环逻辑:首先构建两种Notch3信号转基因报告系并验证其功能与定量可靠性,然后利用空间统计方法解析Notch3信号的时空分布模式,通过单细胞转录组预测与单分子荧光原位杂交(smFISH)鉴定调控Notch3信号的关键配体,最后通过药物抑制、基因敲低等手段解析配体介导的信号调控模式及协同机制。
3.1 Notch3信号报告系的构建与功能验证
实验目的:构建可直接、定量检测成年斑马鱼端脑NSCs中Notch3信号的转基因报告系,并验证Notch3融合蛋白的功能与野生型Notch3的一致性。
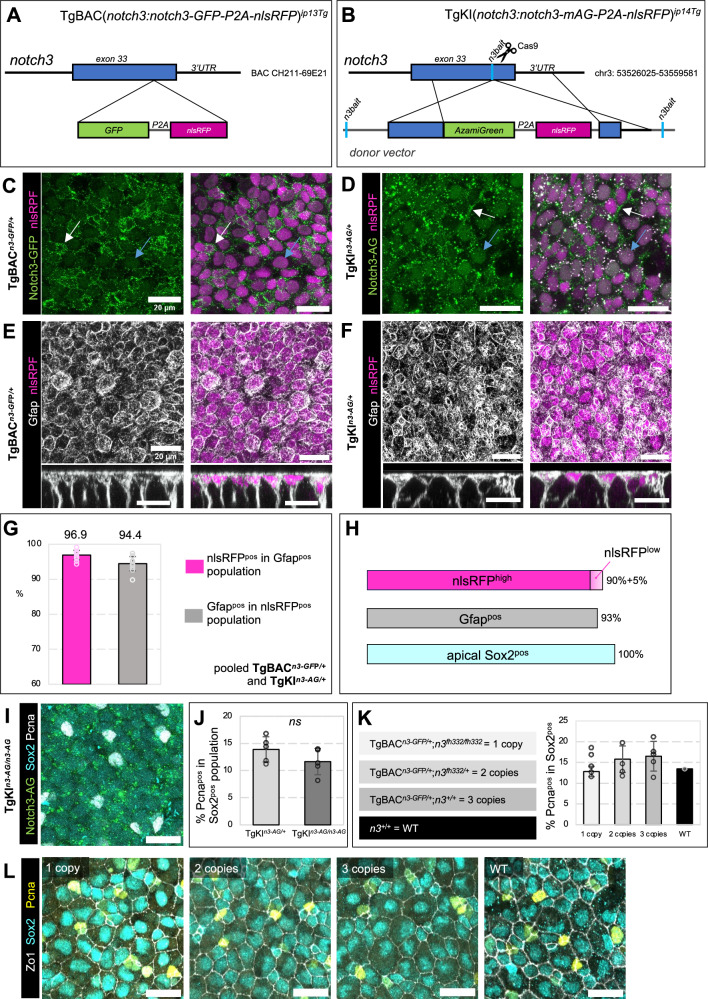
方法细节:采用两种策略构建报告系:一是通过细菌人工染色体(BAC)重组技术,将GFP-P2A-nlsRFP表达盒插入notch3基因的第33外显子,构建TgBAC(notch3:notch3-GFP-P2A-nlsRFP)ip13Tg系,该系保留完整的内源性notch3基因座;二是利用CRISPR/Cas9介导的同源定向修复(HDR)技术,将AzamiGreen(AG)-P2A-nlsRFP表达盒敲入内源性notch3基因的第33外显子,构建TgKI(notch3:notch3-mAG-P2A-nlsRFP)ip14Tg系。通过原位杂交检测报告基因的表达模式,通过免疫组化(IHC)检测Notch3融合蛋白的亚细胞定位,通过与notch3纯合突变体杂交验证报告系中Notch3融合蛋白的功能,包括胚胎期神经发生、幼虫期NSCs静息状态及成年NSCs增殖等表型。
结果解读:原位杂交显示报告基因(GFP/AG)的表达模式与内源性notch3完全一致;免疫组化显示Notch3融合蛋白定位于细胞膜及细胞核,nlsRFP作为核标记可用于细胞核的分割与定量分析;功能验证显示,纯合报告系鱼的胚胎期神经发生(BrdU增殖标记、HuC/D神经标记)、幼虫期NSCs静息状态(Blbp阳性细胞中Pcna阳性比例)及成年NSCs增殖(Sox2阳性细胞中Pcna阳性比例)均与野生型无显著差异,表明Notch3融合蛋白的功能与野生型Notch3高度一致(n=1781/1595细胞,P=0.16)。
产品关联:文献未提及具体实验产品,领域常规使用CRISPR/Cas9基因编辑试剂盒、BAC重组系统、免疫组化抗体(抗GFP、抗Sox2、抗Pcna等)、原位杂交探针合成试剂等。
3.2 Notch3信号的定量可靠性与剂量依赖性分析
实验目的:验证报告系对Notch3信号的定量检测可靠性,并解析notch3基因剂量与Notch3信号水平的关系。
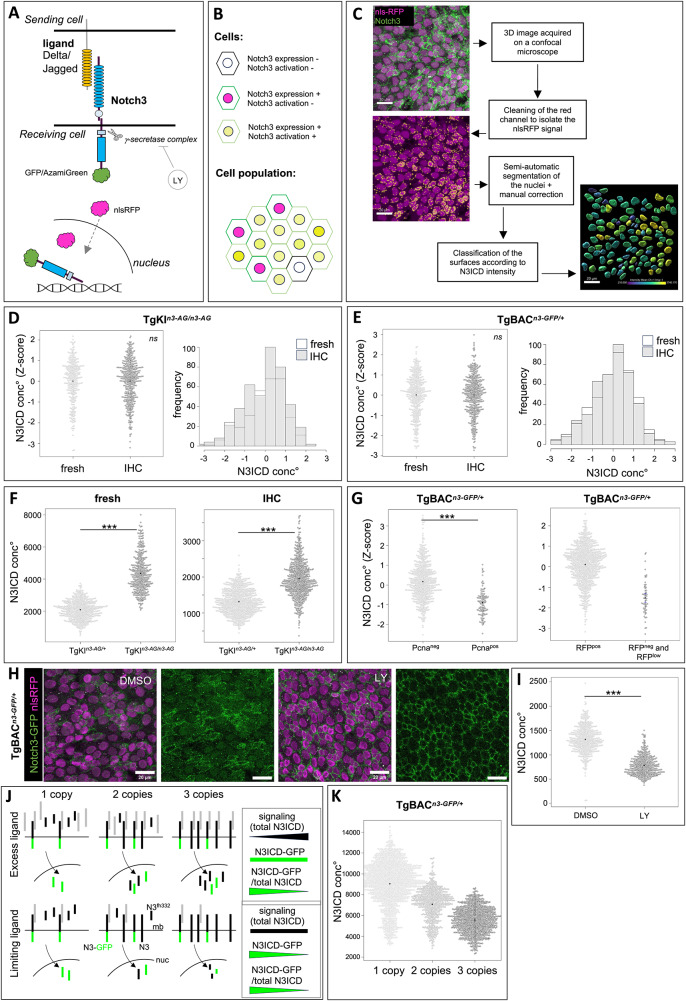
方法细节:利用Imaris图像分析软件建立基于nlsRFP或Sox2信号的细胞核分割流程,定量分析核内Notch3融合蛋白(GFP/AG)的荧光强度(包括总强度与浓度);通过比较纯合与杂合报告系的核内荧光强度,验证定量检测的可靠性;通过构建携带1、2、3个功能性notch3拷贝的报告系鱼(TgBACn3-GFP/+与notch3fh332突变体杂交),检测核内N3ICD-GFP水平的变化;通过γ-分泌酶抑制剂LY-411575处理抑制Notch信号,检测核内N3ICD-GFP水平的变化。
结果解读:纯合TgKIn3-AG/n3-AG系的核内N3ICD-AG水平显著高于杂合TgKIn3-AG/+系(约2倍,n=501/725细胞,P<2.2e-16);增殖NSCs(Pcna阳性)的核内N3ICD-GFP水平显著低于静息NSCs(Pcna阴性,n=565/103细胞,P<2.2e-16);LY处理后核内N3ICD-GFP水平显著降低(n=474/383细胞,P<2.2e-16),表明报告系可定量反映Notch3信号的活性变化;携带1、2、3个功能性notch3拷贝的报告系鱼,核内N3ICD-GFP水平依次降低,表明配体可用性是Notch3信号水平的主要限制因素,而非基因剂量。
产品关联:文献未提及具体实验产品,领域常规使用Imaris图像分析软件、γ-分泌酶抑制剂LY-411575、共聚焦显微镜等。
3.3 Notch3信号的时空分布模式解析
实验目的:解析成年斑马鱼端脑NSCs群中Notch3信号的空间分布模式,揭示其空间调控特征。
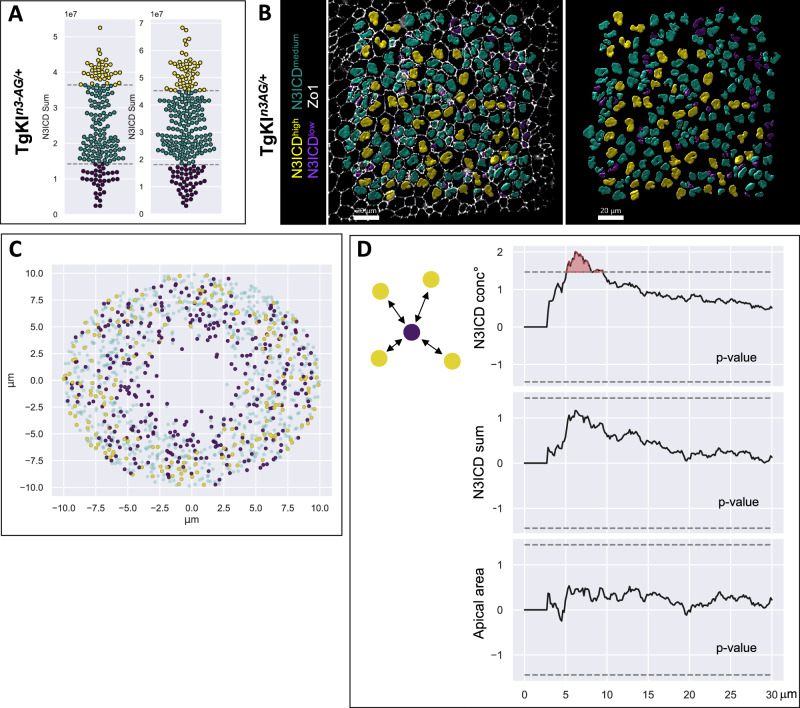
方法细节:利用空间统计方法(标记L函数)分析成年报告系鱼端脑NSCs的核内N3ICD水平的空间分布,将细胞分为高、低N3ICD水平组(各占总细胞数的20%),比较低N3ICD水平细胞周围的N3ICD水平与随机分布模型的差异;结合细胞顶面积分析,排除细胞大小对信号分布的影响。
结果解读:低N3ICD水平细胞周围的N3ICD水平显著高于随机分布模型预期(在7-8μm范围内,P=0.01),表明Notch3信号在空间上呈现“低信号细胞被高信号细胞包围”的模式;细胞顶面积与N3ICD水平呈正相关,但低N3ICD细胞周围的细胞顶面积无显著差异,排除了细胞大小对信号空间模式的影响。
产品关联:文献未提及具体实验产品,领域常规使用空间统计分析软件(R、Python相关库)、共聚焦显微镜等。
3.4 调控Notch3信号的关键配体鉴定及功能解析
实验目的:鉴定调控成年斑马鱼端脑NSCs Notch3信号的关键配体,并解析配体表达与Notch3信号的相关性及响应模式。
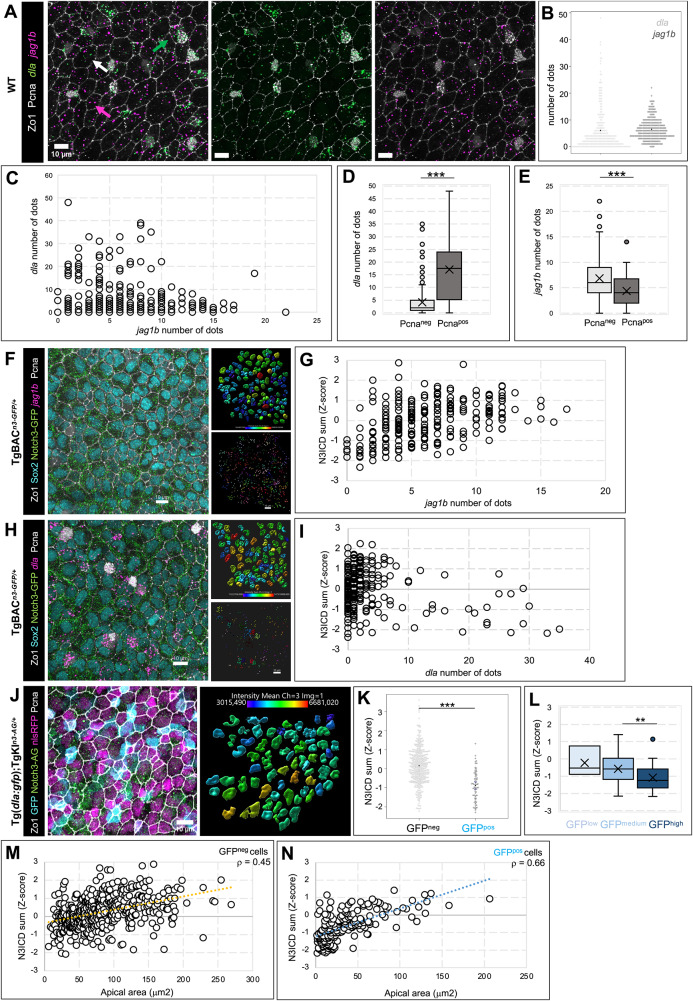
方法细节:通过单细胞转录组数据预测成年斑马鱼端脑NSCs中表达的Notch配体,利用smFISH验证配体的表达模式;结合报告系的N3ICD定量分析,解析配体表达与N3ICD水平的相关性;通过γ-分泌酶抑制剂LY-411575处理抑制Notch信号,检测配体表达的变化。
结果解读:smFISH验证显示DeltaA(dla)与Jagged1b(jag1b)是成年端脑NSCs中主要表达的Notch配体,jag1a未表达,jag2b仅在神经元中表达;dla表达呈“盐-胡椒”模式,增殖NSCs(Pcna阳性)中dla表达显著高于静息NSCs(n=229/40细胞,P<2.2e-16),且dla高表达细胞的N3ICD水平显著降低;jag1b表达呈广泛分布模式,静息NSCs中jag1b表达显著高于增殖NSCs(n=229/40细胞,P=0.0004),且jag1b表达与N3ICD水平呈正相关(Spearman相关系数ρ=0.45);LY处理后,dla表达显著升高,jag1b表达显著降低,表明dla与jag1b分别参与侧向抑制与侧向诱导模式。
产品关联:文献未提及具体实验产品,领域常规使用RNAscope smFISH试剂盒、原位杂交探针、γ-分泌酶抑制剂LY-411575等。
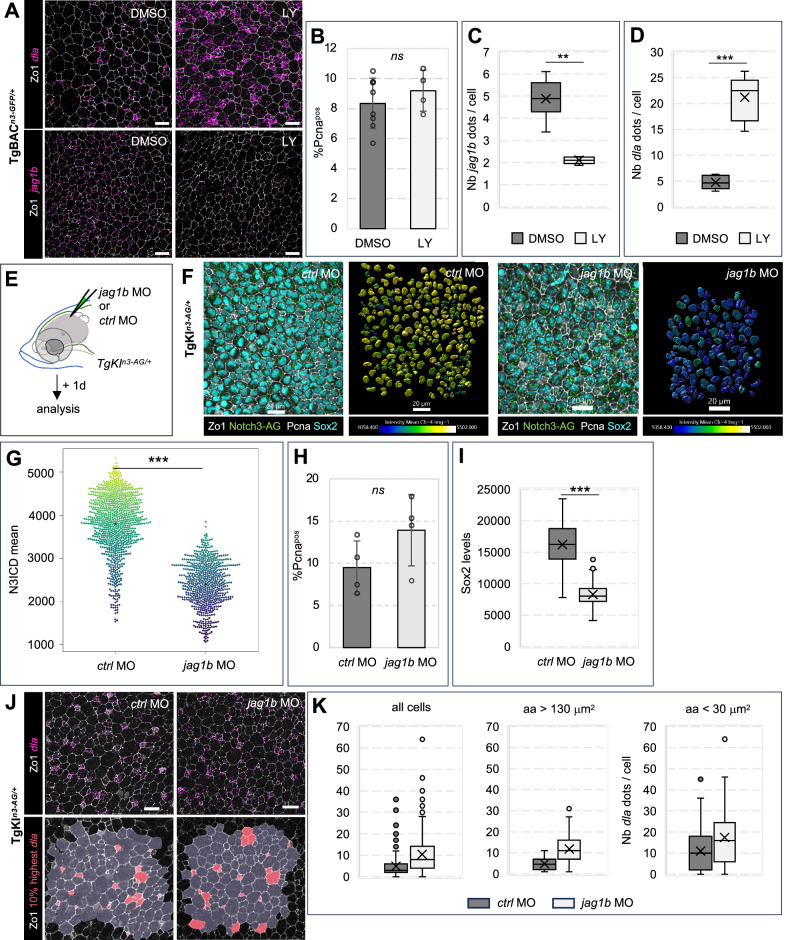
3.5 Jagged1b介导的侧向诱导模式及功能验证
实验目的:验证Jagged1b对Notch3信号的调控作用及功能,解析其介导的侧向诱导模式与DeltaA侧向抑制的协同机制。
方法细节:通过颅内注射jag1b vivo-MO(细胞穿透型吗啉寡核苷酸)敲低成年TgKIn3-AG/+鱼端脑NSCs中的jag1b表达,利用免疫组化检测核内N3ICD-AG水平的变化,同时检测NSCs增殖(Pcna阳性比例)及干细胞性(Sox2表达强度)的变化;利用空间统计方法分析敲低jag1b后Notch3信号的空间分布模式变化。
结果解读:jag1b敲低后,核内N3ICD-AG水平显著降低(n=876/637细胞,P<2.2e-16),表明Jagged1b是维持Notch3信号的关键配体;NSCs增殖水平无显著变化(n=670/535细胞,P=0.11),但Sox2表达强度显著降低(n=876/637细胞,P<2.2e-16),表明Jagged1b介导的Notch3信号主要维持NSCs的干细胞性而非静息状态;空间统计分析显示,敲低jag1b后低N3ICD细胞周围的高信号模式仍存在,但N3ICD水平的分布范围显著缩小,表明Jagged1b介导的侧向诱导增强了DeltaA介导的侧向抑制模式,精准调控Notch3信号的时空分布。
产品关联:文献未提及具体实验产品,领域常规使用vivo-MO(Gene Tools)、免疫组化抗体(抗Sox2、抗Pcna等)、共聚焦显微镜等。
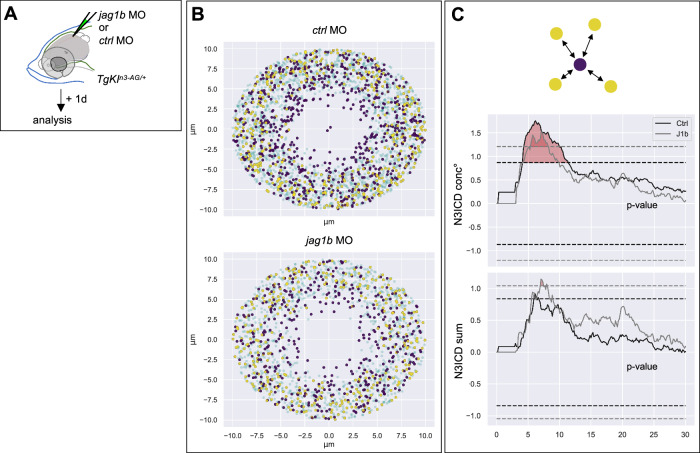
3.6 Hey1作为Jagged1b-Notch3信号轴下游效应因子的验证
实验目的:解析Jagged1b-Notch3信号轴的下游效应因子,验证Hey1的功能作用。
方法细节:通过smFISH检测hey1在成年斑马鱼端脑NSCs中的表达模式,解析其与jag1b表达及N3ICD水平的相关性;通过LY处理抑制Notch信号及jag1b敲低,检测hey1表达的变化。
结果解读:hey1在静息NSCs中广泛表达,与jag1b表达及N3ICD水平呈弱正相关;LY处理后hey1表达显著降低,jag1b敲低后hey1表达呈降低趋势,表明hey1是Jagged1b-Notch3信号轴的下游效应因子,参与调控NSCs的干细胞性。
产品关联:文献未提及具体实验产品,领域常规使用RNAscope smFISH试剂盒、原位杂交探针等。
4. Biomarker研究及发现成果解析
本研究鉴定了成年NSCs中Notch3信号调控相关的三类Biomarker:核内N3ICD水平(Notch3信号活性标记)、Jagged1b表达(干细胞性维持标记)、DeltaA表达(神经分化进程标记),并系统解析了这些Biomarker的调控机制与功能意义。
Biomarker定位:核内N3ICD水平作为Notch3信号活性的定量Biomarker,筛选逻辑为通过构建Notch3信号报告系实现在体动态检测,验证逻辑为其水平与NSCs静息状态正相关、与神经分化进程负相关;Jagged1b表达作为NSCs干细胞性维持的Biomarker,筛选逻辑为通过单细胞转录组预测与smFISH验证其在NSCs中的表达,验证逻辑为其介导的Notch3信号维持Sox2表达;DeltaA表达作为NSCs神经分化进程的Biomarker,筛选逻辑为通过smFISH验证其在增殖NSCs中的高表达,验证逻辑为其介导的侧向抑制调控NSCs激活的空间分布。
研究过程详述:核内N3ICD水平Biomarker来源于成年斑马鱼端脑NSCs的细胞核,通过报告系的GFP/AG荧光定量检测,特异性表现为静息NSCs中N3ICD水平显著高于增殖NSCs(n=565/103细胞,P<2.2e-16),敏感性可反映Notch3信号的动态变化(如LY处理后水平显著降低);Jagged1b表达Biomarker通过smFISH检测,特异性表现为静息NSCs中表达显著高于增殖NSCs(n=229/40细胞,P=0.0004),与N3ICD水平呈正相关(Spearman ρ=0.45);DeltaA表达Biomarker通过smFISH检测,特异性表现为增殖NSCs中表达显著高于静息NSCs(n=229/40细胞,P<2.2e-16),与N3ICD水平呈负相关。
核心成果提炼:核内N3ICD水平可作为成年NSCs静息状态与干细胞性的定量Biomarker,其水平可精准反映NSCs的命运状态:水平越高,NSCs越倾向于维持静息与干细胞性,水平越低,NSCs越倾向于激活与神经分化;Jagged1b表达可作为维持NSCs干细胞性的Biomarker,其介导的侧向诱导模式协同DeltaA的侧向抑制模式,精准调控Notch3信号的时空分布,维持NSCs群的命运平衡;DeltaA表达可作为NSCs神经分化进程的Biomarker,其介导的侧向抑制模式避免NSCs在局部区域过度激活,维持神经发生的空间有序性。创新性:首次将核内N3ICD水平作为成年NSCs静息状态与干细胞性的定量Biomarker,实现了在体动态检测;首次揭示Jagged1b表达作为NSCs干细胞性的Biomarker,及其与DeltaA协同调控Notch3信号时空模式的机制,为成年NSCs命运调控的Biomarker研究提供了新的方向。