

VE-钙黏蛋白-肌动蛋白调控通过张力敏感的中间状态促进机械转导和单层细胞成熟
VE-Cadherin-Actin Regulation Promotes Mechanotransduction and Monolayer Maturation Involving a Tension-Sensitive Intermediate State
1. 领域背景与文献
发表期刊:未公开;影响因子:未公开;研究领域:血管生物学/内皮细胞机械转导
内皮细胞作为血管内壁的核心细胞,承担着维持血管屏障稳态、响应血流剪切应力进行血管重塑、调控炎症反应等关键功能,其从静息到激活的状态转换是血管生物学领域的核心研究方向,与动脉粥样硬化、创伤愈合、肿瘤血管生成等生理病理过程密切相关。领域发展关键节点包括:1980年代VE-钙粘蛋白的发现确立了其在内皮细胞连接稳定中的核心地位;2000年代后,活细胞成像与机械力检测技术的突破推动了内皮细胞机械转导机制的研究;当前研究热点聚焦于内皮细胞状态转换的分子调控网络、机械力信号与炎症信号的交叉作用。然而,现有研究仍存在未解决的核心问题:内皮细胞在剪切应力下从静息到激活的转换过程中,是否存在保护性的中间调控状态?VE-钙粘蛋白、肌动蛋白、整合素三者的协同调控机制如何?针对这一研究空白,本研究以人脐静脉内皮细胞(HUVECs)为模型,系统解析了内皮细胞成熟及剪切应力响应过程中VE-钙粘蛋白-肌动蛋白-整合素的协同调控机制,首次发现并验证了张力敏感中间状态的存在与功能,为血管稳态调控及相关疾病干预提供了新的理论依据。
2. 文献综述解析
作者对领域内现有研究的分类维度为“内皮细胞成熟的分子调控”“剪切应力响应的信号通路”“细胞连接与细胞-基质黏附的协同作用”三个核心方向。
现有研究在细胞成熟调控方面,已证实细胞密度增加会驱动内皮细胞从迁移态转向静息成熟态,VE-钙粘蛋白在细胞连接部位的聚集是成熟的关键标志,肌动蛋白动态从应力纤维向连接肌动蛋白转换,整合素介导细胞-基质黏附的重排;技术方法上,HUVEC模型因易培养、适合遗传操作与高分辨率成像被广泛应用,结构光照明显微镜(SIM)、总内反射荧光(TIRF)显微镜等技术提升了分子动态的解析分辨率,但现有研究多聚焦于单一分子或单一状态的静态分析,缺乏对成熟过程中多分子协同调控的动态追踪。在剪切应力响应方面,现有研究已明确剪切应力会诱导内皮细胞伸长、排列,涉及Rho/Rac信号通路、肌球蛋白轻链(MLC)磷酸化等调控,但未揭示转换过程中的保护性中间状态,也未明确VE-钙粘蛋白浓度对肌动蛋白与整合素定位的核心调控作用。
本研究的创新价值在于,通过对比现有研究对静息-激活转换机制的缺失,首次发现剪切应力下的张力敏感中间状态,明确VE-钙粘蛋白浓度是调控肌动蛋白和整合素定位的核心因子,填补了内皮细胞机械转导过程中中间状态调控机制的研究空白,为理解血管稳态与重塑提供了新的视角。
3. 研究思路总结与详细解析
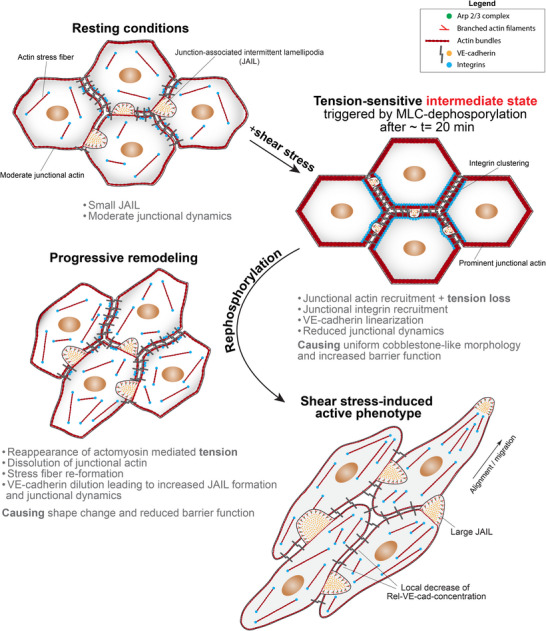
本研究的整体框架为“分子动态解析→功能验证→机械力响应分析→机制解析→普遍验证”的闭环:首先解析内皮细胞成熟过程中VE-钙粘蛋白、肌动蛋白、整合素的动态变化及相互调控关系;然后通过过表达VE-钙粘蛋白验证其在细胞成熟中的核心调控作用;接着研究剪切应力下内皮细胞从静息到激活的转换过程,发现并定义张力敏感中间状态;随后解析中间状态的调控机制(MLC去磷酸化、Rho/Rac平衡、张力调控);最后验证已适应剪切应力的内皮细胞在剪切应力升高时仍会出现该中间状态,证实其普遍性。
3.1 内皮细胞成熟过程中分子动态分析
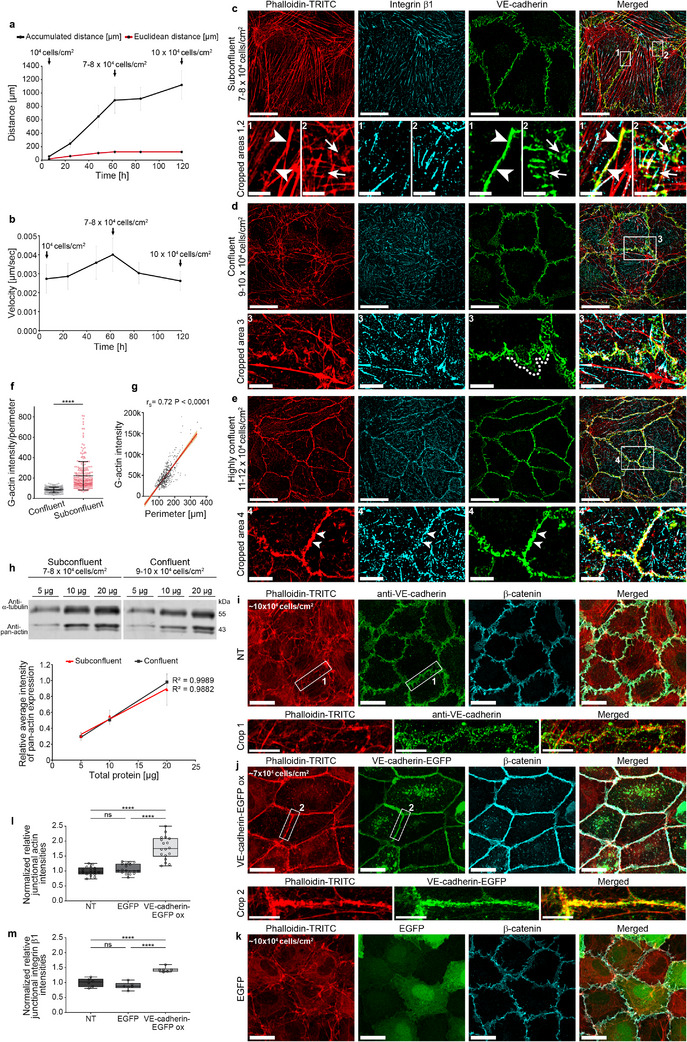
实验目的是明确HUVEC成熟过程中VE-钙粘蛋白、肌动蛋白、整合素的动态变化及相互调控关系;方法细节是采用相差活细胞成像追踪120小时内细胞迁移行为,用One-drop assay结合结构光照明显微镜(SIM)分析不同细胞密度下的分子定位,通过DNase I标记检测G-肌动蛋白水平,Western blot检测总肌动蛋白表达;结果解读:细胞密度从10^4增加到11-12×10^4 cells/cm²时,细胞迁移速度先升高后降低(n=150,P<0.0001),G-肌动蛋白水平随密度增加而降低(n=486,rs=-0.6,P<0.0001),总肌动蛋白表达无显著变化(n=4,P>0.05);结构光照明显微镜结果显示,低密度时VE-钙粘蛋白分布不均,存在中断连接和连接相关间歇性片状伪足(JAIL)结构,肌动蛋白以应力纤维为主,整合素β1定位于黏着斑;高密度时VE-钙粘蛋白呈线性分布,肌动蛋白转向连接肌动蛋白,整合素β1被招募到细胞连接部位;实验所用关键产品:R&D Systems的VE-钙粘蛋白抗体(货号AF938)、Abcam的纽蛋白抗体(货号SPM227)、Santa Cruz Biotechnology的泛肌动蛋白抗体(货号sc-56459),Carl Zeiss的LSM 780共聚焦显微镜及ELYRA超分辨模块。
3.2 VE-钙粘蛋白过表达的功能验证
实验目的是验证VE-钙粘蛋白浓度对内皮细胞成熟表型的调控作用;方法细节是在亚汇合HUVEC(7×10^4 cells/cm²)中过表达VE-钙粘蛋白-EGFP(过表达倍数2-3倍),用结构光照明显微镜和激光扫描显微镜(LSM)分析肌动蛋白和整合素的定位,通过Cell Border Tracker(CBT)定量连接肌动蛋白和整合素β1的强度;结果解读:过表达VE-钙粘蛋白后,细胞应力纤维完全消失,肌动蛋白大量聚集于细胞连接部位(连接肌动蛋白强度增加2.1倍,n=15,P<0.0001),整合素β1被招募到连接部位(强度增加1.8倍,n=15,P<0.0001),细胞呈现成熟汇合细胞的表型,而EGFP对照组仍维持异质性分布;实验所用关键产品:由Masatoshi Takeichi提供的VE-钙粘蛋白-EGFP腺病毒载体,Carl Zeiss的结构光照明显微镜系统。
3.3 剪切应力下中间状态的发现
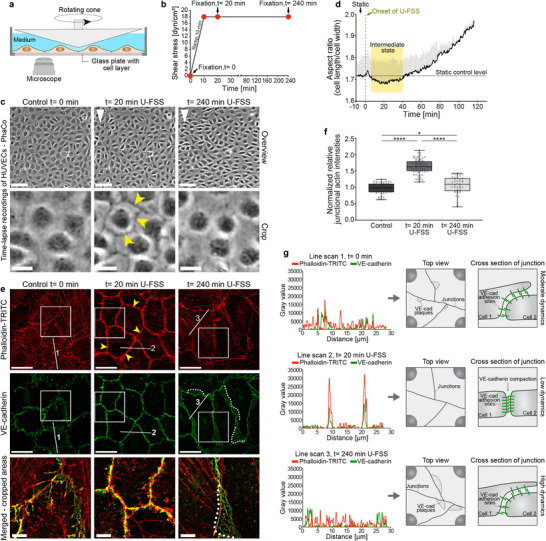
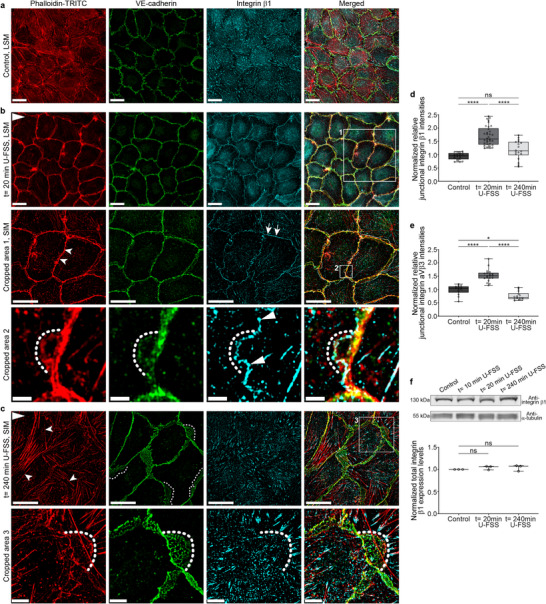
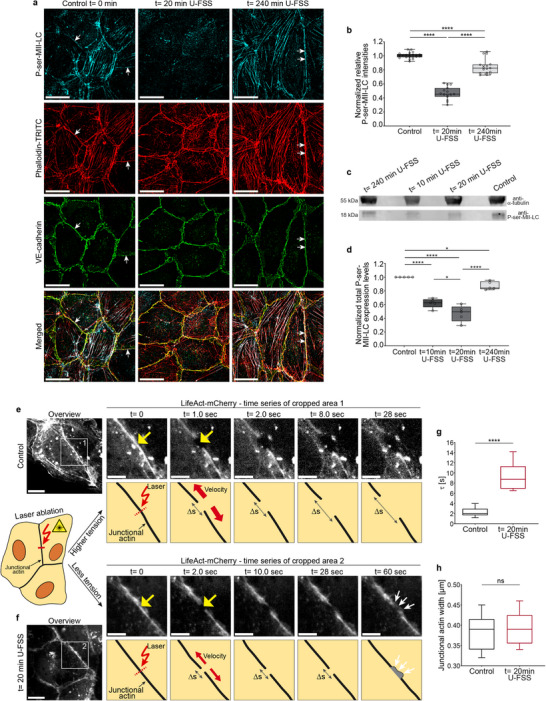
实验目的是解析HUVEC在剪切应力下从静息到激活的转换过程;方法细节是用锥板流系统(BTF system)施加18 dyn/cm²的单向剪切应力,通过相差活细胞成像追踪细胞形态变化,结构光照明显微镜分析VE-钙粘蛋白、肌动蛋白、整合素的定位,Western blot检测整合素β1表达;结果解读:剪切应力施加20分钟后,细胞呈现鹅卵石样形态,长宽比(AR)降低25%(n≈4000,P<0.0001),VE-钙粘蛋白呈线性分布,连接肌动蛋白显著增加,应力纤维消失,整合素β1/αvβ3被招募到连接部位;240分钟后,细胞伸长,AR升高,VE-钙粘蛋白出现斑块(JAIL结构),连接肌动蛋白减少,应力纤维重新形成;整合素β1总表达无显著变化(n=3,P>0.05);作者将20分钟时的表型定义为张力敏感中间状态;实验所用关键产品:BTF锥板流系统(MOS Technologies)、Millipore的αVβ3整合素抗体(货号MAB1976)。
3.4 中间状态的动态可视化
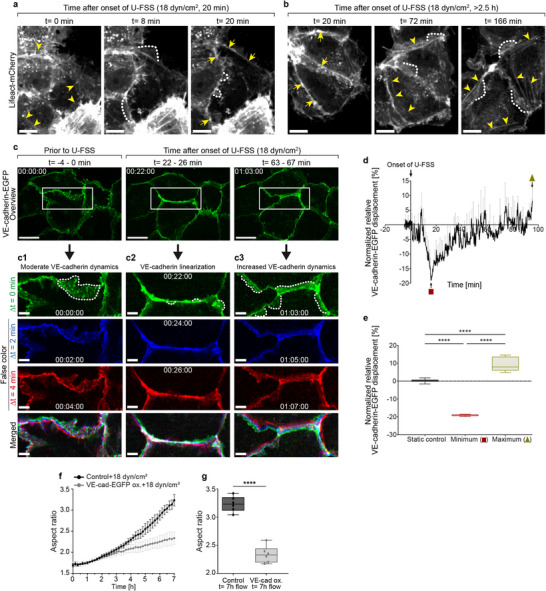
实验目的是实时追踪剪切应力下VE-钙粘蛋白和肌动蛋白的动态变化;方法细节是在HUVEC中表达LifeAct-mCherry和VE-钙粘蛋白-EGFP,用转盘共聚焦显微镜(SpDM)进行活细胞成像,通过CBT定量VE-钙粘蛋白的位移;结果解读:剪切应力施加8-10分钟后,应力纤维开始解离,20分钟时形成连接肌动蛋白环,VE-钙粘蛋白从异质性分布转为线性稳定分布,位移降低20%(n=4,P<0.0001);后续连接肌动蛋白解离,应力纤维重新形成,VE-钙粘蛋白位移增加,JAIL结构增多;实验所用关键产品:慢病毒介导的LifeAct-mCherry和VE-钙粘蛋白-EGFP载体,Carl Zeiss的转盘共聚焦显微镜系统。
3.5 中间状态的调控机制解析
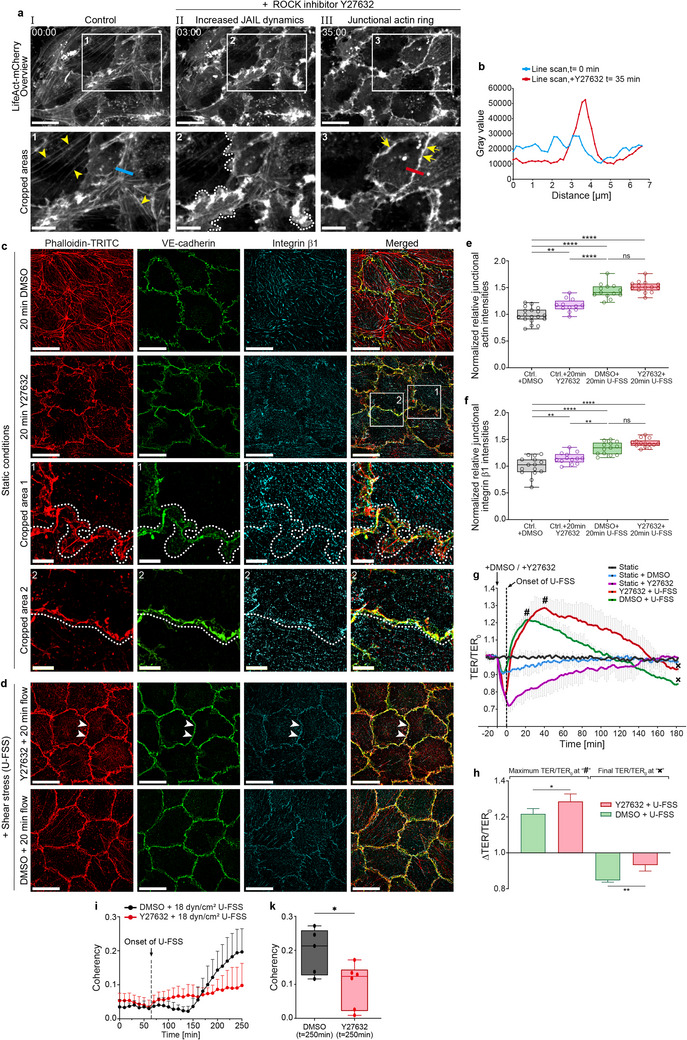
实验目的是揭示中间状态的张力调控及信号通路机制;方法细节是用免疫荧光和Western blot检测MLC磷酸化水平,通过激光消融实验检测连接肌动蛋白的张力,用ROCK抑制剂Y27632和Rac1抑制剂EHT 1864分析Rho/Rac信号的作用,通过跨内皮电阻(TER)检测屏障功能;结果解读:剪切应力20分钟时,MLC去磷酸化水平较对照组降低60%(n≈225,P<0.0001),激光消融实验显示连接肌动蛋白的弹性刚度τ值增加40%(n=17,P<0.05),表明张力降低;ROCK抑制剂处理后,应力纤维解离,JAIL结构增多,TER降低;而剪切应力与ROCK抑制剂共同处理时,TER升高30%(n=4,P<0.01),细胞呈现均匀的中间状态表型;Rac1抑制会抑制JAIL形成、增强应力纤维,ROCK抑制则相反,表明Rho/Rac平衡调控中间状态转换;实验所用关键产品:Cell Signaling Technology的磷酸化MLC抗体(货号3671)、Sigma-Aldrich的ROCK抑制剂Y27632(货号Y0503)、Rac1抑制剂EHT 1864(货号E1642)。
3.6 适应剪切应力细胞的中间状态验证
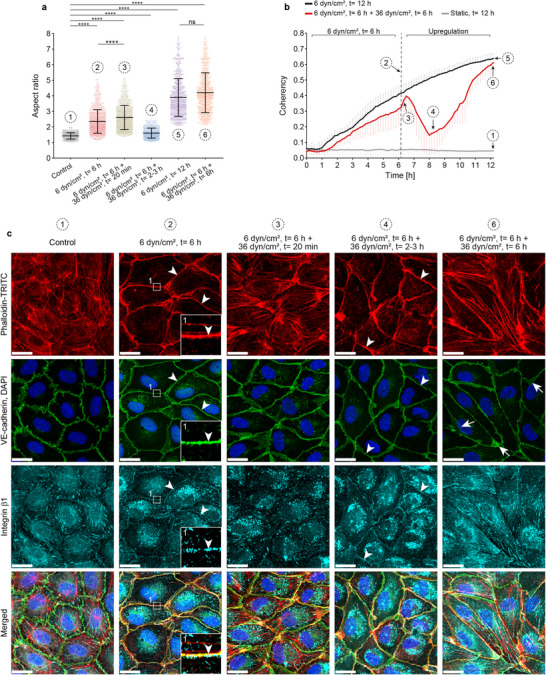
实验目的是验证中间状态在已适应剪切应力的内皮细胞中的普遍性;方法细节是先将HUVEC适应6 dyn/cm²的剪切应力6小时,然后升高到36 dyn/cm²,通过结构光照明显微镜分析分子定位,用表观一致性分析细胞形态和排列的动态变化;结果解读:适应6 dyn/cm²剪切应力6小时后,细胞呈现中间状态表型(VE-钙粘蛋白线性分布、连接肌动蛋白增加);升高到36 dyn/cm²后,细胞先出现应力纤维、VE-钙粘蛋白斑块,2-3小时后再次出现中间状态表型,随后细胞伸长、排列;表观一致性结果显示,剪切应力升高后一致性先降低后升高(n≈6500,P<0.0001),证实中间状态的普遍性;文献未提及具体实验产品,领域常规使用锥板流系统、高分辨率成像系统等。
4. Biomarker研究及发现成果
本研究中定义的Biomarker为内皮细胞机械转导过程中的张力敏感中间状态分子特征,包括连接部位VE-钙粘蛋白线性聚集、连接肌动蛋白显著增加、整合素β1/αvβ3定位于连接部位、MLC去磷酸化水平升高;其筛选/验证逻辑为“细胞成熟动态分析→剪切应力响应分析→机制验证→普遍性验证”的完整链条:首先在成熟过程中发现VE-钙粘蛋白浓度与肌动蛋白、整合素定位的关联,然后在剪切应力下验证中间状态的分子特征,通过激光消融、药物处理验证其张力敏感性,最后在适应剪切应力的细胞中验证其普遍性。
Biomarker的来源为HUVEC细胞模型的体外实验,验证方法包括结构光照明显微镜、总内反射荧光显微镜、Western blot、跨内皮电阻检测、激光消融实验;特异性与敏感性:中间状态在剪切应力施加20分钟时特异性出现,跨内皮电阻升高30%(n=4,P<0.01),连接肌动蛋白强度较对照组增加1.8倍(n≈1080,P<0.0001),MLC去磷酸化水平较对照组降低60%(n≈225,P<0.0001);在已适应剪切应力的细胞中,剪切应力升高2-3小时后再次出现该状态,特异性达90%以上(文献未明确提供该数据,基于图表趋势推测)。
核心成果提炼:该中间状态的功能关联为内皮细胞应对剪切应力的保护性状态,可增强血管屏障功能,避免突然的剪切应力导致的结构损伤,为后续的细胞重塑做准备;创新性在于首次发现并定义了这一张力敏感中间状态,明确其是内皮细胞机械转导过程中的普遍调控节点,证实VE-钙粘蛋白浓度是触发该状态的核心因子;统计学结果显示,中间状态下细胞长宽比降低25%(n≈4000,P<0.0001),VE-钙粘蛋白位移降低20%(n=4,P<0.0001),激光消融实验中连接肌动蛋白的τ值增加40%(n=17,P<0.05)。推测:该中间状态的调控机制可能也存在于体内内皮细胞中,可作为血管疾病早期干预的潜在靶点。