IMK2-IMK3模块调控拟南芥新生细胞壁的生物合成和胞质分裂后分化
IMK2-IMK3 module regulates biogenesis of nascent cell walls and postcytokinetic differentiation in Arabidopsis thaliana
1. 领域背景与文献
文献英文标题:IMK2-IMK3 module regulates biogenesis of nascent cell walls and postcytokinetic differentiation inArabidopsis thaliana;
发表期刊:Science Advances;影响因子:14.9(2024年);研究领域:植物细胞生物学,植物胞质分裂与细胞壁发育方向。
植物细胞壁为植物组织器官提供机械支撑,参与水分和溶质运输,同时帮助植物抵御生物和非生物胁迫。细胞壁发育与生长器官中新细胞的产生和分化协同进行,分为三个核心阶段:新生细胞壁形成、初生细胞壁合成、细胞壁终末分化,其中新生细胞壁起源于胞质分裂过程中形成的细胞板。领域共识:细胞板的生物发生依赖植物特有的成膜体结构,该结构由细胞骨架元件、膜区室和相关蛋白组成,微管骨架引导携带细胞壁构建原料的胞质分裂囊泡运输到成膜体中区,囊泡融合后逐步发生结构和化学修饰,最终完成细胞板向新生细胞壁的身份转换。
现有研究已经明确,微管反向平行重叠的建立依赖MAP65微管交联因子和7类驱动蛋白,囊泡运输通过TRAPPII和胞吐复合体依赖的运输通路完成,胼胝质沉积会提升细胞板机械刚性,进而触发微管解聚,启动细胞板向质膜身份的转换。但领域内长期存在一个未解决的核心问题:细胞板如何感知自身形态变化和腔内化学成分变化,进而将信号传递给微管调控系统,触发微管解聚。研究者普遍推测该功能由跨膜受体蛋白完成,其受体结构域暴露于细胞板腔,信号结构域面向细胞质,响应腔内化学信号触发微管解聚,但该关键受体模块一直未被实验鉴定,因此本研究针对该核心问题开展功能解析,填补领域研究空白,完善细胞板生物发生的调控网络。
2. 文献综述解析
作者按照细胞板生物发生的时间进程对现有研究进行分类梳理,首先是细胞板起始组装阶段,现有研究已经明确了微管组织、囊泡运输的核心调控因子,建立了细胞板形成起始阶段的基本调控框架,该阶段核心技术突破包括活细胞成像技术对囊泡运输动态的解析、遗传鉴定对核心骨架蛋白功能的验证,现有研究的优势在于明确了细胞板组装的核心结构基础,但局限性在于仅关注组成型结构蛋白的功能,未涉及组装过程中的信号感知与质量调控环节。其次是细胞板修饰与身份转换阶段,现有研究已经观察到胼胝质沉积与微管解聚的相关性,明确了细胞板化学组成变化对微管动态的调控作用,但该过程的信号连接机制一直未被解析,仅提出了跨膜受体感知的假说,缺乏直接的实验证据,同时已有研究很少关注功能冗余的受体激酶家族成员,对多蛋白协同调控的解析不足。
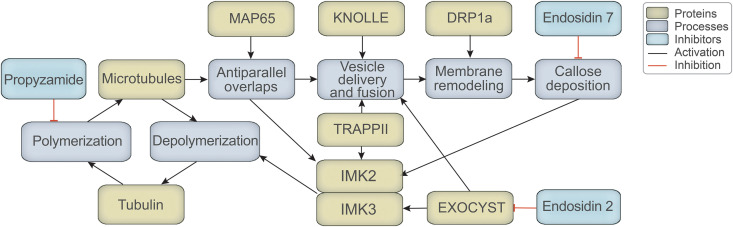
本研究的创新价值十分明确,通过共表达网络筛选结合遗传学验证,首次在拟南芥中鉴定到由两个富含亮氨酸重复受体样激酶IMK2和IMK3组成的信号模块,明确了该模块作为细胞板生物发生的感知枢纽,整合上游囊泡运输、胼胝质合成信号,调控下游微管解聚的分子机制,解决了领域内长期未解决的信号感知机制问题,同时发现该模块在胞质分裂完成后还参与调控细胞伸长与分化的耦合,拓展了细胞壁发育调控的功能认知,完善了植物胞质分裂的调控网络。
3. 研究思路总结与详细解析
本研究的核心科学问题是“是否存在受体样激酶模块感知细胞板生物发生过程中的化学信号,进而调控微管解聚和新生细胞壁身份转换”,研究目标是明确IMK2-IMK3模块在新生细胞壁生物发生和胞质分裂后分化中的功能与调控机制,整体技术路线为:共表达网络筛选候选基因→亚细胞定位与功能验证→蛋白互作鉴定→双突变体构建与表型分析→调控通路解析→最终建立完整的调控模型。
3.1 候选基因筛选与IMK2功能初步验证
实验目的:从细胞分裂调控共表达网络中筛选参与胞质分裂的受体样激酶,验证IMK2在细胞板生物发生中的功能。方法细节:基于拟南芥共表达网络,筛选与已知胞质分裂调控因子共表达的受体样激酶,分离两个纯合T-DNA插入敲除等位基因,构建内源启动子驱动的IMK2-GFP融合回补载体,转化突变体验证表型,通过激光共聚焦成像分析亚细胞定位,采用化学遗传学方法利用不同功能抑制剂处理,分析IMK2定位的影响因素,在烟草BY-2单细胞体系中验证IMK2与细胞壁的结合特性,利用荧光漂白丢失技术分析IMK2在细胞板不同区域的结合强度,采用诱导型显性负突变策略验证IMK2功能的必要性,通过透射电子显微镜观察细胞分裂缺陷表型。结果解读:共表达网络分析显示IMK2与MAP65-3、HINKEL等多个已知胞质分裂调控因子共表达,符合细胞周期调控胞质分裂受体的预测;两个敲除等位基因植株整体发育无明显异常,但根顶端分生组织长度显著短于野生型对照(n>3,P<0.05),内源IMK2-GFP可以完全回补该表型,证明表型由IMK2缺失导致;成像结果显示IMK2-GFP特异性富集在根尖分生组织的细胞板和新生交叉壁,在交叉壁与侧壁的连接位置富集,每次胞质分裂后形成的新生交叉壁信号更强,该极性定位依赖IMK2的表达水平;化学抑制剂处理显示,仅微管聚合抑制剂和胼胝质合成抑制剂会导致IMK2从交叉壁解离,积累到内体区室;烟草BY-2细胞实验证实,IMK2可以正常运输到细胞板,但胼胝质合成抑制后IMK2无法在新生细胞板滞留,说明IMK2的滞留而非运输依赖胼胝质合成;质壁分离实验显示IMK2-GFP会残留在细胞壁上,直接证明其与细胞壁结合;荧光漂白丢失实验显示,细胞板边缘的IMK2-GFP信号衰减速率显著慢于细胞板中心,边缘与中心信号强度比值显著高于对照蛋白(n=7,P<0.05),说明IMK2在细胞板边缘结合更强;诱导显性负突变后,观察到胞质分裂失败、细胞壁残根形成、交叉壁定位错误,多核细胞频率显著升高(n>5,P<0.01),透射电子显微镜直接观察到子细胞间共享细胞核和质体,证明IMK2是细胞板生物发生的关键调控因子。

实验所用关键产品:文献未提及具体实验产品,领域常规使用CRISPR-Cas9基因编辑试剂、激光共聚焦显微镜、GFP-Trap琼脂糖珠。
3.2 IMK2-IMK3蛋白复合体鉴定与功能验证
实验目的:验证IMK2存在功能冗余的互作蛋白IMK3,明确二者的互作关系与功能不对称性。方法细节:利用同步化到分裂末期的烟草BY-2细胞系,通过免疫共沉淀联合质谱鉴定IMK2-GFP的互作蛋白,利用双分子荧光互补验证二者的体内互作,分离IMK3的T-DNA插入敲除突变体,构建内源启动子驱动的IMK3-GFP回补载体,通过互交回补实验验证二者的功能关系。结果解读:免疫共沉淀质谱显示,IMK2-GFP的pull down产物中特异性鉴定到烟草IMK3肽段,反之IMK3-GFP的pull down产物也能特异性鉴定到IMK2肽段,阴性对照无特异性信号;双分子荧光互补实验证实,IMK2和IMK3可以在质膜上形成同源和异源寡聚体,与非相关膜蛋白共表达无法重现荧光信号,证明二者互作具有特异性;IMK3单突变体根顶端分生组织大小显著小于野生型(n>32,P<0.05),但成熟植株形态正常,内源IMK3-GFP可以完全回补该表型;IMK3-GFP的整体定位与IMK2类似,富集在细胞板、新生交叉壁和交叉壁边缘,仅在发育中器官表达,但微管聚合抑制剂和胼胝质合成抑制剂处理不影响IMK3的定位,与IMK2存在明显差异;互交回补实验显示,IMK3-GFP可以回补imk2突变体的分生组织表型,而IMK2-GFP无法回补imk3突变体的表型,imk3突变体背景下IMK2-GFP定位异常,积累在内体区室,说明IMK3是IMK2正确定位到细胞板的必需因子,二者存在功能不对称性。

实验所用关键产品:文献未提及具体实验产品,领域常规使用蛋白质质谱试剂、双分子荧光互补载体系统。
3.3 IMK2-IMK3双突变体构建与整体功能分析
实验目的:明确IMK2-IMK3模块缺失后的整体生物学功能,分析其对细胞分裂、分化和伸长的影响。方法细节:利用CRISPR-Cas9基因编辑技术,分别在单突变体背景下敲除另一个基因获得双突变体,分析主根生长和分生组织表型,利用细胞周期报告基因proCYCB1;1:GFP分析细胞分裂速率,利用分化报告基因proTMO5:GFP-NLS分析细胞分化起始,测量根分生组织不同位置的表皮和皮层细胞长度,明确模块对细胞伸长的调控作用。结果解读:双突变体植株整体形态正常,但主根长度和根顶端分生组织长度显著短于单突变体和野生型(n>32,P<0.05);proCYCB1;1:GFP阳性细胞频率在野生型和双突变体间无显著差异(n=10,P>0.05),说明IMK2-IMK3模块不调控细胞分裂速率;proTMO5:GFP阳性细胞数量在不同基因型间也无显著差异(n=10,P>0.05),说明模块不影响细胞分化的起始;细胞长度测量显示,双突变体从距离静止中心第6位表皮细胞、第22位皮层细胞开始,平均细胞长度显著大于野生型(n=10,P<0.05),说明IMK2-IMK3模块缺失会导致细胞伸长提前起始,该模块在胞质分裂完成后发挥耦合细胞伸长与分化进程的功能。
3.4 IMK2-IMK3模块对微管稳定性的调控分析
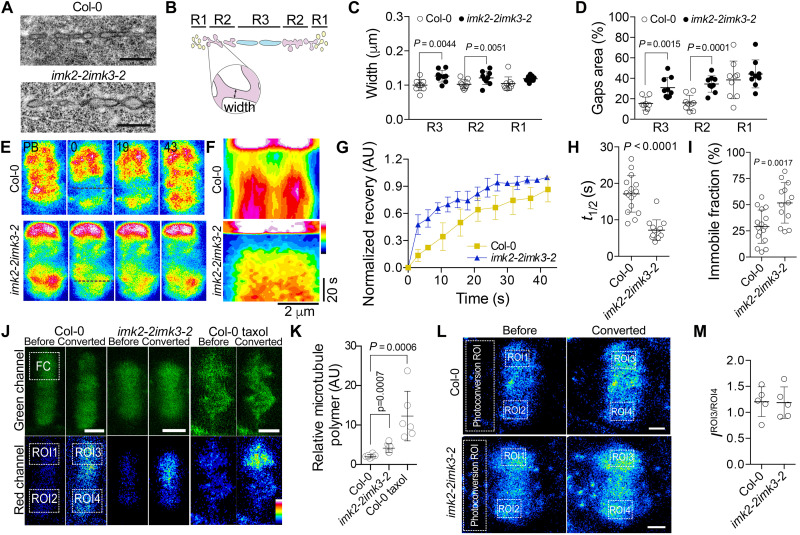
实验目的:明确IMK2-IMK3模块对成膜体微管动态的调控作用,验证其促进微管解聚的功能。方法细节:利用透射电子显微镜观察野生型和双突变体细胞板的超微结构,测量细胞板不同区域的膜区室宽度和间隙面积,利用光漂白后荧光恢复分析成膜体微管的周转速率,利用光转换微管探针EosFP-TuB2直接测量稳定微管的比例,统计分析表型差异。结果解读:透射电子显微镜观察显示,双突变体细胞板的管状网络转化区和细胞板中心区的膜区室宽度、间隙面积比例都显著大于野生型(n=9,P<0.05),而囊泡融合起始区无显著差异,说明缺陷发生在细胞板向质膜身份转换的阶段,符合预期;约20%的双突变体成膜体微管形态不规则,成膜体扩张速率变慢;光漂白后荧光恢复实验显示,双突变体微管周转速率是野生型的2倍,不可移动组分比例也是野生型的2倍(n=16,P<0.05),说明双突变体微管稳定性显著升高;光转换实验进一步验证,双突变体稳定微管比例比野生型高50%(n=5,P<0.05),紫杉醇处理阳性对照的稳定微管比例也提升2倍,证明实验体系可靠,最终明确IMK2-IMK3模块的核心功能是促进成膜体微管解聚。
实验所用关键产品:文献未提及具体实验产品,领域常规使用透射电子显微镜、激光共聚焦活细胞成像系统。
3.5 IMK2和IMK3的上游运输通路分析
实验目的:明确上游调控因子对IMK2和IMK3定位的影响,梳理二者运输通路的差异。方法细节:分别在微管重叠缺失的map65-1 map65-2双突变体、TRAPPII复合体功能缺失的club-2突变体背景下观察IMK2和IMK3的定位,利用胞吐复合体抑制剂安甙菌素2处理野生型根,分析二者定位变化,利用环己亚胺处理分析蛋白周转速率。结果解读:map65-1 map65-2双突变体中,IMK2的交叉壁富集程度显著降低,部分信号积累在内体,而IMK3的定位和富集不受影响,说明IMK2招募到成膜体中区依赖微管反向平行聚集,IMK3不依赖该过程;TRAPPII复合体突变体club-2中,IMK2完全丧失细胞板和交叉壁的富集,信号均匀分布在所有细胞壁和内体区室,而IMK3仍然正常定位于细胞板和交叉壁,富集程度不受影响,说明IMK2的运输依赖TRAPPII复合体,IMK3不依赖该通路;胞吐复合体抑制剂处理后,IMK2定位类似imk3突变体,积累在胞质分裂相关内体区室,而IMK3的交叉壁信号显著降低,富集被破坏,说明IMK3的运输依赖胞吐复合体;环己亚胺处理1小时后,IMK2仍然保留在交叉壁,而IMK3信号显著降低,说明IMK2在交叉壁的周转速率慢,IMK3周转速率快,二者的周转特性存在明显差异。

实验所用关键产品:文献未提及具体实验产品,领域常规使用化学抑制剂、植物转基因体系。
4. Biomarker 研究及发现成果
本研究属于植物发育机制基础研究,未筛选临床相关生物标志物,但明确了IMK2和IMK3可作为新生细胞壁发育的特异性分子标记。Biomarker定位:IMK2和IMK3属于时空特异性表达的定位型分子标记,仅在发育中的分生组织和幼嫩器官的新生交叉壁表达,分化成熟组织中无表达,其特异性高于传统的细胞分裂标记。筛选验证逻辑:通过共表达网络分析筛选候选,结合遗传敲除、回补实验验证功能,通过多器官活细胞成像明确表达的时空特异性,通过遗传和化学处理验证定位的特异性。
研究过程详述:标记来源于拟南芥内源编码基因,通过GFP融合蛋白的活体成像验证定位特异性,在根顶端分生组织、花序分生组织、胚、花药、气孔等多个发育中器官验证表达模式,通过不同上游通路突变体和抑制剂处理验证定位的调控特异性。核心成果:IMK2和IMK3可以作为新生细胞壁的活体分子标记,其信号富集特性可以反映细胞板的发育阶段,其中IMK2的富集严格依赖细胞板胼胝质合成,因此还可以作为体内检测胼胝质沉积功能的指示标记。本研究的核心创新成果是首次明确了IMK2-IMK3模块是细胞板生物发生的感知枢纽,该模块整合上游微管组织、TRAPPII依赖的囊泡运输、胼胝质合成信号,促进成膜体微管解聚,保证细胞板身份转换正常进行,双突变体中稳定微管比例升高50%(n=5,P<0.05),细胞板转化区宽度显著增加(n=9,P<0.05),根分生组织长度显著降低(n>32,P<0.05),同时该模块还在胞质分裂后调控细胞伸长,耦合细胞分裂与后分化进程,完善了植物胞质分裂和细胞壁发育的调控网络。