

布拉氏酵母菌 CNCM I-745 与小肠微生物群协同作用,增强乳糜泻中的 AhR 信号传导。
Saccharomyces boulardii CNCM I-745 synergizes with the small intestinal microbiota to boost AhR signaling in celiac disease
1. 领域背景与文献
文献英文标题:Saccharomyces boulardiiCNCM I-745 synergizes with the small intestinal microbiota to boost AhR signaling in celiac disease;
发表期刊:未明确提供;影响因子:未公开;研究领域:胃肠病学,乳糜泻发病机制与益生菌靶向治疗。
乳糜泻(CeD)是遗传易感人群摄入小麦、黑麦、大麦中的谷蛋白后,诱发的免疫介导性小肠炎症,携带易感基因型HLA-DQ2或HLA-DQ8是发病必要条件,但仅有约2%-3%的携带者最终发病,说明除遗传与饮食外,肠道微生物等其他因素在发病中发挥重要作用。领域共识:芳香烃受体(AhR)是广泛表达的核转录因子,肠道微生物可将饮食中的色氨酸代谢为AhR配体,进而调控下游靶基因表达,维持肠道免疫稳态与屏障功能,在炎症与稳态平衡中发挥核心作用。既往研究已证实,活动期乳糜泻患者存在微生物色氨酸代谢受损、AhR通路激活异常,无谷蛋白饮食仅能部分恢复该通路功能,而目前高达30%的无谷蛋白饮食治疗患者存在无应答或无意接触谷蛋白后症状复发的问题,亟需靶向AhR通路的微生物辅助治疗。
当前益生菌治疗虽在改善乳糜泻患者胃肠道症状中展现出一定效果,但现有研究存在明显局限性,无法给出循证医学推荐,也未明确益生菌发挥作用的具体机制,因此亟需基于疾病致病机制,开展针对性的益生菌机制研究,为乳糜泻辅助治疗提供新方向。本研究针对乳糜泻中AhR通路失调的核心问题,探究已表征的益生菌布拉氏酵母菌CNCM I-745对谷蛋白免疫病理的改善作用及具体机制,为后续临床转化提供预临床证据。
2. 文献综述解析
作者围绕乳糜泻发病机制、AhR通路功能、益生菌治疗研究进展逐层梳理现有研究,分类逻辑清晰,先从乳糜泻发病的遗传饮食基础出延伸,明确额外致病因素的存在,再聚焦到肠道微生物-色氨酸-AhR通路轴在乳糜泻中的作用,最后梳理现有益生菌治疗乳糜泻的研究进展与不足。现有研究已明确乳糜泻的核心发病逻辑,即携带HLA-DQ2/DQ8的遗传易感个体,摄入谷蛋白后诱发CD4+T细胞炎症反应,该结论已得到大量基础与临床研究验证,同时也证实AhR通路通过调控肠道免疫与屏障功能,参与乳糜泻的发生发展,活动期乳糜泻患者确实存在AhR通路激活受损的特征。现有益生菌治疗乳糜泻的研究优势在于,证实益生菌可一定程度改善患者胃肠道症状,且益生菌安全性高适合长期使用,但现有研究的局限性十分突出,多数研究样本量小、研究设计异质性高,更关键的是现有研究未基于乳糜泻特异性致病机制选择益生菌菌株,无法阐释益生菌发挥作用的分子机制,因此无法给出明确的临床推荐。
对比现有研究的不足,本研究的创新价值十分明确,首次针对乳糜泻中失调的AhR通路,选择已证实可改善肠道屏障功能、调节肠道菌群的布拉氏酵母菌CNCM I-745,从体内动物实验到体外人类临床样本验证,系统阐释了布拉氏酵母菌与小肠微生物群协同调控色氨酸代谢、激活AhR通路改善谷蛋白免疫病理的机制,填补了益生菌治疗乳糜泻的机制研究空白,为乳糜泻无谷蛋白饮食无应答患者的辅助治疗提供了新的方向,也为益生菌的机制性研究提供了可参考的研究范式。
3. 研究思路总结与详细解析
本研究整体研究目标为明确布拉氏酵母菌CNCM I-745是否可通过激活AhR通路改善乳糜泻谷蛋白免疫病理,核心科学问题是布拉氏酵母菌如何与小肠微生物群相互作用调控色氨酸代谢和AhR激活,技术路线遵循“科学假设提出→体内动物模型验证→机制探究→体外人体样本验证”的闭环逻辑,先在转基因小鼠模型中验证布拉氏酵母菌的治疗效果,再通过药理学抑制明确AhR通路的介导作用,随后分析其对肠道菌群组成和色氨酸代谢的调控,再通过体外共培养验证微生物的必要性,最后在乳糜泻患者样本中验证作用,整个研究逻辑完整严谨。
3.1 动物模型构建与分组处理
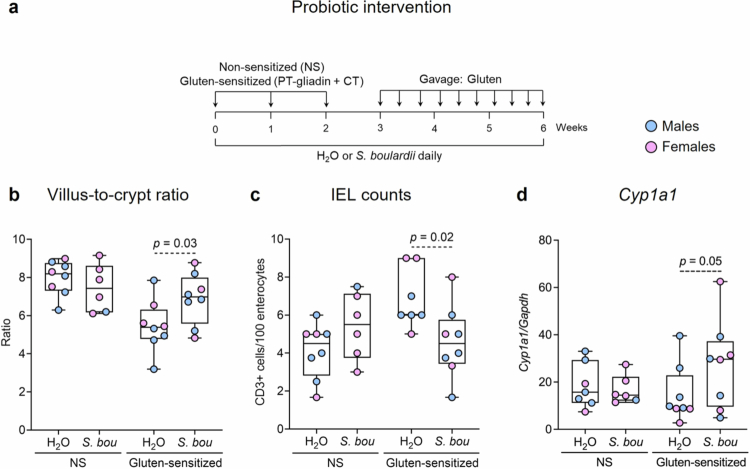
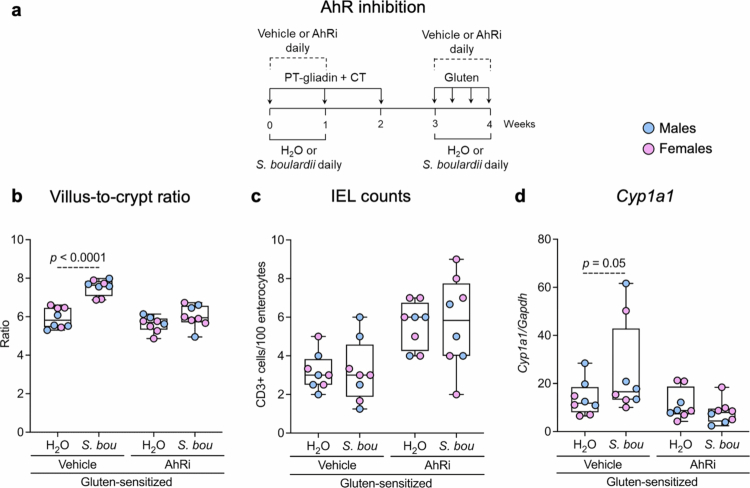
实验目的:构建谷蛋白致敏的乳糜泻小鼠模型,探究布拉氏酵母菌对谷蛋白免疫病理的作用,同时验证AhR通路是否介导该作用。方法细节:实验采用8-11周龄的无特定病原体NOD/DQ8转基因小鼠,至少两代维持无谷蛋白饮食,首先设置基础分组,包括非致敏对照组、谷蛋白致敏组,每组分别每日灌胃水或3g/kg布拉氏酵母菌CNCM I-745,持续6周,每组样本量n=6-8;额外设置药理学验证分组,谷蛋白致敏小鼠分别给予布拉氏酵母菌或水,联合给予溶剂或AhR特异性抑制剂CH-223191,每组n=8。致敏方案为每周一次灌胃500μg脱酰胺麦胶蛋白胃蛋白酶-胰蛋白酶消化物联合25μg霍乱毒素,持续2周,致敏结束一周后,每2天灌胃10mg谷蛋白,持续3周,实验结束后收集十二指肠内容物和近端空肠组织用于后续检测。文献未提及特殊定制实验产品,领域常规使用该类转基因小鼠模型及商品化试剂。结果显示该模型成功构建出谷蛋白诱导的小肠免疫病理,可用于后续疗效与机制验证。
3.2 肠道组织病理与AhR通路激活检测
实验目的:明确布拉氏酵母菌对谷蛋白免疫病理的改善效果,验证AhR通路的介导作用。方法细节:近端空肠组织经10%福尔马林固定后石蜡包埋,制作切片后苏木精-伊红染色,测量绒毛隐窝比;采用CD3免疫组化染色标记上皮内淋巴细胞,计数单位肠上皮内CD3阳性淋巴细胞数量,计算复合病理评分;提取组织总RNA,采用定量逆转录PCR检测AhR下游靶基因Cyp1a1的表达,表达量归一化至内参基因Gapdh。实验所用关键产品:Qiagen的RNeasy Mini Kit,Bio-Rad的iScript Reverse Transcriptase、SsoFast EvaGreen Supermix,Dako的多克隆兔抗人CD3抗体。结果显示,谷蛋白致敏小鼠绒毛隐窝比相较于非致敏小鼠显著降低,布拉氏酵母菌处理后谷蛋白致敏小鼠的绒毛隐窝比提升23%(n=8,P=0.03),CD3阳性上皮内淋巴细胞计数降低40%(n=8,P=0.02),复合病理评分显示布拉氏酵母菌处理组评分为0.29,显著高于水处理组的-1.63(n=8,P=0.008)。Cyp1a1表达检测显示,谷蛋白致敏小鼠中布拉氏酵母菌处理组Cyp1a1表达比水处理组高86%(n=8,P=0.05),证实布拉氏酵母菌可激活谷蛋白致敏小鼠的AhR通路。AhR抑制剂验证结果显示,溶剂对照组中布拉氏酵母菌处理组绒毛隐窝比比水处理组提升27%(n=8,P<0.0001),复合病理评分提升7倍(n=8,P=0.0001),Cyp1a1表达提升82%(n=8,P=0.05),而AhR抑制剂处理后,布拉氏酵母菌对肠道病理的改善作用和对AhR通路的激活作用完全消失,证实布拉氏酵母菌改善谷蛋白免疫病理的作用依赖AhR通路。
3.3 色氨酸代谢与肠道菌群分析
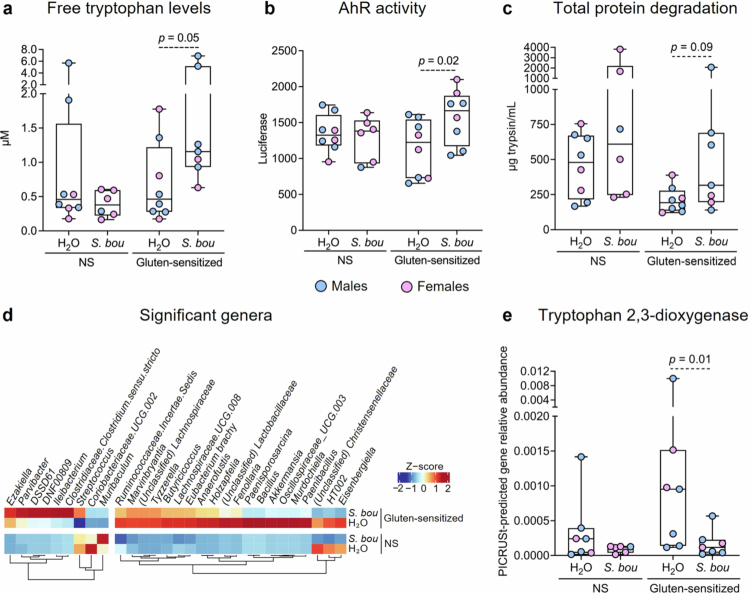
实验目的:探究布拉氏酵母菌调控AhR通路激活的具体机制,分析其对色氨酸代谢和肠道菌群的影响。方法细节:采用时间分辨荧光共振能量转移法检测小鼠十二指肠内容物游离色氨酸水平,采用携带二噁英响应元件驱动荧光素酶报告基因的H1L1.1c2细胞检测AhR活性,采用偶氮酪蛋白法检测总蛋白降解能力;提取小鼠近端小肠菌群总DNA,扩增16S rRNA基因V3-V4区测序,分析菌群多样性和分类组成,采用PICRUSt2预测菌群功能,分析色氨酸代谢相关基因丰度。实验所用关键产品:Mediomics的TR-FRET Bridge-IT L-色氨酸荧光检测试剂盒,Sigma-Aldrich的偶氮酪蛋白。结果显示,谷蛋白致敏小鼠中布拉氏酵母菌处理组游离色氨酸水平是水处理组的2.5倍(n=8,P=0.05),AhR活性提升37%(n=8,P=0.02),总蛋白降解能力呈现升高趋势(P=0.09,文献未明确提供样本量,基于分组设计推测n=8)。菌群分析显示,布拉氏酵母菌处理不影响谷蛋白致敏小鼠菌群α多样性,但显著改变菌群组成,增加了已知产AhR激动剂的梭菌属相对丰度;功能预测结果显示,布拉氏酵母菌处理组色氨酸2,3-二加氧酶(可降解吲哚环的酶)预测基因丰度降低91%(n=8,P=0.01),且AhR活性与该基因丰度呈负相关(R²=0.22,n=8,P=0.05),说明减少吲哚降解、增加游离色氨酸可获得性是布拉氏酵母菌激活AhR的重要机制。
3.4 体外小鼠小肠微生物共培养验证
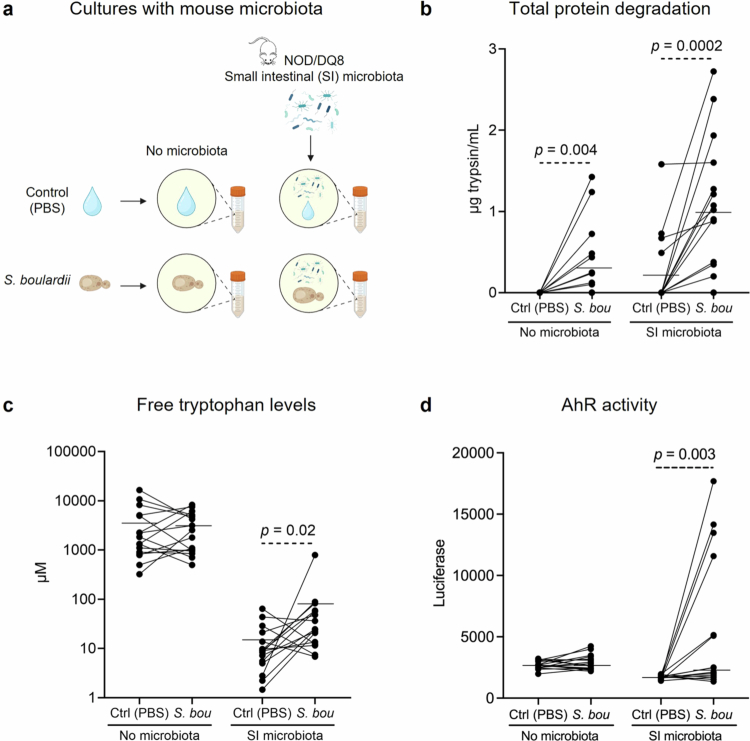
实验目的:明确布拉氏酵母菌促进色氨酸代谢和AhR激活是否依赖小肠微生物的存在。方法细节:采集未致敏NOD/DQ8小鼠小肠微生物,设置四组分组:无微生物+磷酸盐缓冲液、无微生物+布拉氏酵母菌、有微生物+磷酸盐缓冲液、有微生物+布拉氏酵母菌,在脑心浸液培养基中厌氧培养6小时,检测各组总蛋白降解、游离色氨酸水平和AhR活性。文献未提及特殊实验产品,领域常规使用厌氧培养系统及上述检测试剂盒。结果显示,布拉氏酵母菌本身即可提升总蛋白降解水平,当存在小鼠小肠微生物时,总蛋白降解水平提升3.5倍(n=8,P=0.0002);仅在存在微生物的情况下,布拉氏酵母菌可使游离色氨酸水平提升4.5倍(n=8,P=0.02),AhR活性提升2倍(n=8,P=0.003),无微生物组中未观察到上述变化,证实布拉氏酵母菌促进AhR激活完全依赖小肠微生物的存在,而小鼠小肠本身富含产AhR激动剂的乳杆菌科,为AhR激活提供了代谢基础。
3.5 乳糜泻患者样本体外共培养验证
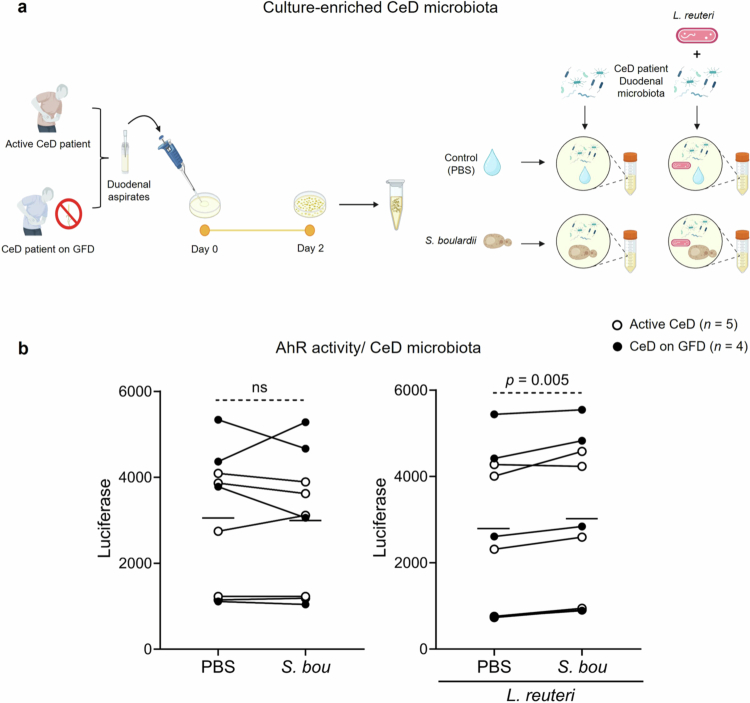
实验目的:验证布拉氏酵母菌对乳糜泻患者小肠微生物AhR激活的作用,明确产AhR激动剂细菌在其中的必要性。方法细节:本研究共纳入5例活动期乳糜泻患者、4例无谷蛋白饮食治疗后乳糜泻患者,所有患者入组前1个月未使用抗生素或益生菌,经内镜采集十二指肠抽吸物,对微生物进行富集培养后,设置对照组、布拉氏酵母菌组、罗伊乳杆菌组、布拉氏酵母菌联合罗伊乳杆菌组,厌氧培养后检测各组AhR活性。实验所用布拉氏酵母菌CNCM I-745来自Biocodex。结果显示,仅添加布拉氏酵母菌无法提升乳糜泻微生物的AhR活性,而当补充罗伊乳杆菌(经典产AhR激动剂菌种)后,布拉氏酵母菌可显著提升乳糜泻微生物的AhR活性(P=0.005,样本量n=9,基于纳入患者数推测),单独罗伊乳杆菌在无乳糜泻微生物存在时无法提升AhR活性,证实乳糜泻患者小肠微生物中产AhR激动剂的乳杆菌丰度降低,布拉氏酵母菌提升AhR活性需要这类细菌的存在,该结果在活动期和治疗后乳糜泻患者样本中保持一致。
4. Biomarker研究及发现成果
本研究围绕AhR通路激活状态与乳糜泻特征性微生物改变,明确了两类与乳糜泻治疗响应相关的生物标志物。Biomarker定位:本研究涉及的生物标志物分为两类,其一为AhR通路激活标志物,包括小肠组织Cyp1a1表达、十二指肠内容物AhR活性,用于表征AhR通路的激活状态;其二为微生物标志物,即小肠微生物中的罗伊乳杆菌(属于乳杆菌科),作为乳糜泻中色氨酸代谢异常的特征性标志物,也可作为预测布拉氏酵母菌治疗响应的潜在标志物。筛选验证逻辑为:基于既往研究发现乳糜泻中AhR通路受损、微生物色氨酸代谢异常的基础,首先在小鼠模型中验证AhR通路激活与病理改善的关联,再通过重新分析既往公开队列数据,发现乳糜泻患者小肠乳杆菌科丰度降低,最后通过体外共培养实验验证罗伊乳杆菌在布拉氏酵母菌激活AhR中的必要性,整个逻辑链条完整。
研究过程详述:Cyp1a1表达来源于小鼠小肠组织,采用定量逆转录PCR检测,AhR活性采用荧光素酶报告细胞实验检测,分别在小鼠体内模型和体外微生物培养体系中完成验证;微生物标志物来源于小鼠小肠组织和乳糜泻患者十二指肠抽吸物,首先通过16S rRNA测序分析乳糜泻患者与健康对照的丰度差异,再通过体外补充实验验证其功能,研究结果显示,相较于健康对照,活动期和治疗后乳糜泻患者小肠乳杆菌科丰度显著降低,超过40%的活动期乳糜泻患者(n=22)和20%的治疗后乳糜泻患者(n=4)小肠中未检测到乳杆菌科。特异性与敏感性数据文献未明确提供,但功能验证实验证实补充罗伊乳杆菌后AhR活性显著提升(P=0.005)。
核心成果提炼:本研究证实Cyp1a1表达可准确反映AhR通路的激活状态,在谷蛋白致敏小鼠中,布拉氏酵母菌处理后Cyp1a1表达上调86%(n=8,P=0.05),且该变化与肠道病理改善显著正相关;本研究首次明确乳糜泻患者小肠中罗伊乳杆菌丰度降低是布拉氏酵母菌无法有效激活AhR通路的核心原因,证实罗伊乳杆菌可作为预测布拉氏酵母菌治疗响应的潜在生物标志物,本研究也首次阐明了布拉氏酵母菌与产AhR激动剂小肠微生物协同激活AhR改善乳糜泻免疫病理的机制,为乳糜泻益生菌联合治疗提供了理论基础。推测:临床实践中可通过检测小肠乳杆菌丰度筛选适合布拉氏酵母菌联合罗伊乳杆菌治疗的乳糜泻患者,尤其是无谷蛋白饮食无应答患者,该推论需要大样本临床研究进一步验证。