

1. 领域背景与文献
文献英文标题:Network integration of neocortical Cajal-Retzius neurons shapes early cortical dynamics and contributes to their transient nature;
发表期刊:未明确提供;影响因子:未公开;研究领域:神经发育生物学,哺乳动物新皮层发育。
卡哈尔-雷齐乌斯神经元(CRN)是哺乳动物新皮层中最早产生的瞬时神经元群,早在一个多世纪前就被发现,其最经典的功能是分泌瑞林(reelin)蛋白,调控发育皮层的神经元迁移和分层形成。领域发展的关键节点:早期研究主要聚焦于CRN的起源、分子分型、迁移规律以及瑞林调控皮层发育的机制,随着近年来基因编辑、功能成像、光遗传操控等技术的突破,研究者开始关注CRN在发育皮层环路中的功能整合,但核心科学问题一直未得到解决。
领域共识:早期发育阶段皮层的自发同步化活动对神经环路组装、突触成熟和网络连接建立至关重要,CRN作为新皮层第一层最主要的早期神经元,长期被推测参与了早期网络活动的调控,但缺乏直接的功能验证。当前研究空白:既往研究仅通过形态学和逆行示踪初步解析了CRN的输入输出结构连接,但对CRN的功能整合状态、活性特征以及对整个皮层网络的调控作用尚未明确,也不清楚CRN的活性是否参与调控自身的发育性丢失过程。本研究针对这一空白,系统解析CRN在发育新皮层网络中的结构与功能整合,阐明其对早期皮层动力学的作用,以及活性对CRN自身瞬时特性的调控机制,为理解新皮层发育提供了新的视角。
2. 文献综述解析
作者将现有研究按研究方向分为四个维度:CRN的起源与分子异质性、CRN的迁移与发育性死亡调控、CRN的结构连接组学、CRN的已知功能。现有研究已经明确,CRN是哺乳动物皮层最早产生的神经元类群之一,在小鼠出生后第三周几乎完全消失,人类大部分CRN也会在妊娠后期丢失,仅少数存留至成年;CRN存在不同起源的亚型,不同亚型在迁移路径、分子特征和死亡调控上存在异质性;已经通过逆行示踪等技术发现CRN接受来自第五层锥体细胞和第一层、第六层抑制性中间神经元的突触前输入,也有研究记录到了CRN上γ-氨基丁酸A型(GABAA)受体介导的自发突触后电流,提示CRN存在功能性突触连接。
现有研究的局限性体现在:多数研究仅聚焦于CRN的结构连接和瑞林的功能,缺乏对CRN功能整合的系统功能验证;虽然已知CRN存在高密度GABA能输入,但不清楚这种输入对CRN活性的调控作用,以及CRN活性对整个皮层网络的影响;也没有研究阐明CRN的氯离子转运体表达特征是否与其活性和存活有关,更缺乏直接证据证明CRN自身活性是否会促进其发育性丢失。
本研究的创新价值十分明确:通过结构分析、功能成像、电生理记录结合光遗传操控,首次明确证明了CRN在发育早期就整合进新皮层网络,其活性可以放大皮层网络的整体兴奋性;首次系统证实在CRN整个生命周期中都维持钠钾氯共转运体1(NKCC1)占优的氯离子转运体表达谱,这种表达特征不仅介导了GABA的兴奋作用,还直接促进了CRN的发育性丢失;首次明确了CRN活性可以加速自身的清除,揭示了CRN发育性瞬时特性的新调控机制,完善了我们对CRN在新皮层发育中作用的认知。
3. 研究思路总结与详细解析
本研究的整体研究框架:研究目标是解析CRN在发育新皮层网络中的结构与功能整合,核心科学问题是CRN如何接受突触输入、如何被激活、对早期皮层网络动力学有什么调控作用,以及CRN自身活性是否影响其发育性存活。技术路线遵循从结构到功能、从分子到环路的逻辑:先从结构层面分析不同发育阶段CRN的GABA能突触输入密度变化,再从功能层面验证CRN的自发活性以及与整体网络活动的相关性,随后从分子层面分析CRN不同发育阶段的氯离子转运体表达特征,通过药理学验证NKCC1对CRN存活的影响,最后通过光遗传操控结合电生理记录,验证CRN激活对网络兴奋性的影响,以及慢性激活对CRN存活的影响,形成了完整的研究闭环。
3.1 CRN的GABA能突触输入密度纵向分析
实验目的:明确不同发育阶段CRN树突上GABA能突触输入密度的变化规律。
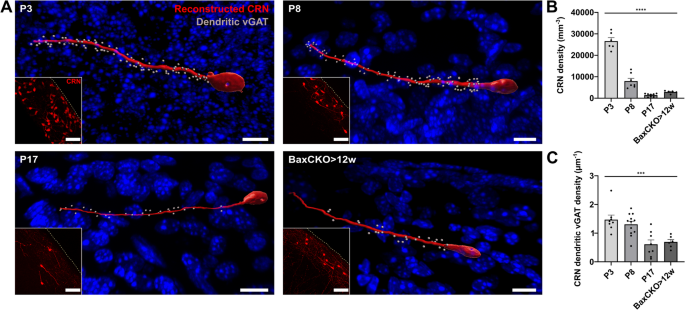
方法细节:利用ΔNp73Cre小鼠与报告小鼠杂交特异性标记CRN,在出生后第3天(P3)、第8天(P8)、第17天(P17)以及通过Bax基因条件敲除抑制CRN凋亡保留CRN存活的成年小鼠皮层样本中,对GABA能突触前标记物囊泡GABA转运体(vGAT)进行免疫组化染色,通过三维重构定量分析CRN树突表面vGAT阳性突触的密度。
结果解读:定量统计显示,CRN密度随发育显著降低,从P3的26.6 ± 1.7 × 10³ mm⁻³(n=6视野,p<0.0001)降低到P17的14.6 ± 2.7 × 10³ mm⁻³(n=8视野,p<0.0001)。CRN树突的vGAT密度在P3为1.5 ± 0.2 μm⁻¹(n=8细胞),P8为1.3 ± 0.1 μm⁻¹(n=12细胞),到P17显著下降至0.6 ± 0.2 μm⁻¹(n=8细胞,p=0.0004);而同期新皮层上层整体vGAT密度随发育逐渐升高,说明在CRN大量丢失前,其树突一直保持较高密度的GABA能输入,随着CRN发育性丢失,GABA能输入密度逐渐降低。对应结果图:
文献未提及具体实验产品,领域常规使用免疫组化试剂、共聚焦显微镜及图像分析软件。
3.2 CRN自发活性及与网络活动的相关性分析
实验目的:验证出生后第一周CRN是否存在自发活性,以及其活性是否与皮层网络活动整合。
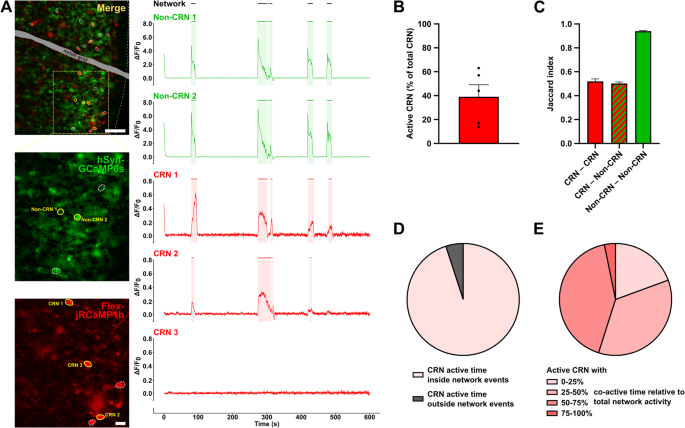
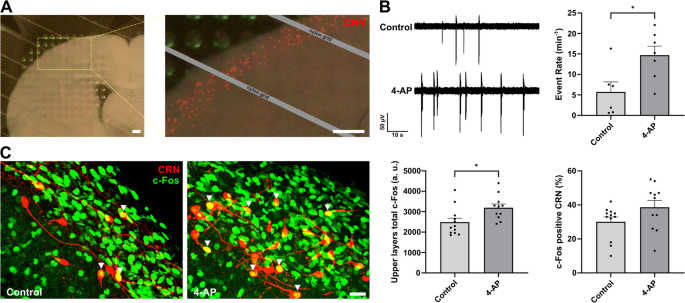
方法细节:在器官型皮层培养(OTCs)中,通过重组腺相关病毒(AAV)转染,在CRN中特异性表达红色钙指示剂jRCaMP1b,在所有神经元中表达绿色钙指示剂GCaMP6s,利用双通道钙成像同时记录CRN和非CRN神经元的钙活动,分析CRN的自发活性比例以及活性的时间同步性。同时在急性脑片上,利用多通道电极阵列(MEA)记录场电位,结合即刻早期基因c-Fos免疫组化,验证离体生理条件下CRN的自发活性。
结果解读:钙成像结果显示,培养第7-8天的OTCs中,约39 ± 10%的CRN存在自发钙活动(n=86个CRN)。活性同步性分析显示,CRN之间以及CRN与非CRN之间的活性重叠Jaccard指数均约为0.5 ± 0.02,而非CRN神经元之间的重叠指数为0.9 ± 0.01(n=148对),提示CRN活性与整体网络活动高度同步。进一步分析显示,95 ± 2%的CRN活性时间与全网络活动重合,仅有不到5%的CRN活性发生在网络活动之外。急性脑片实验中,对照组条件下约30%的CRN为c-Fos阳性,使用4-氨基吡啶提高网络兴奋性后,CRN的c-Fos阳性比例升高至39 ± 4%(n=11-12切片,p=0.1),提示即使存在浓密GABA能输入,CRN活性仍会随网络兴奋性升高而增强,而非被抑制。对应结果图:
文献未提及具体实验产品,领域常规使用钙成像系统、多通道电极阵列及病毒载体。
3.3 CRN氯离子转运体表达谱分析与NKCC1功能验证
实验目的:明确不同发育阶段CRN中NKCC1和钾氯共转运体2(KCC2)两种氯离子转运体的表达特征,验证NKCC1对CRN存活的影响。
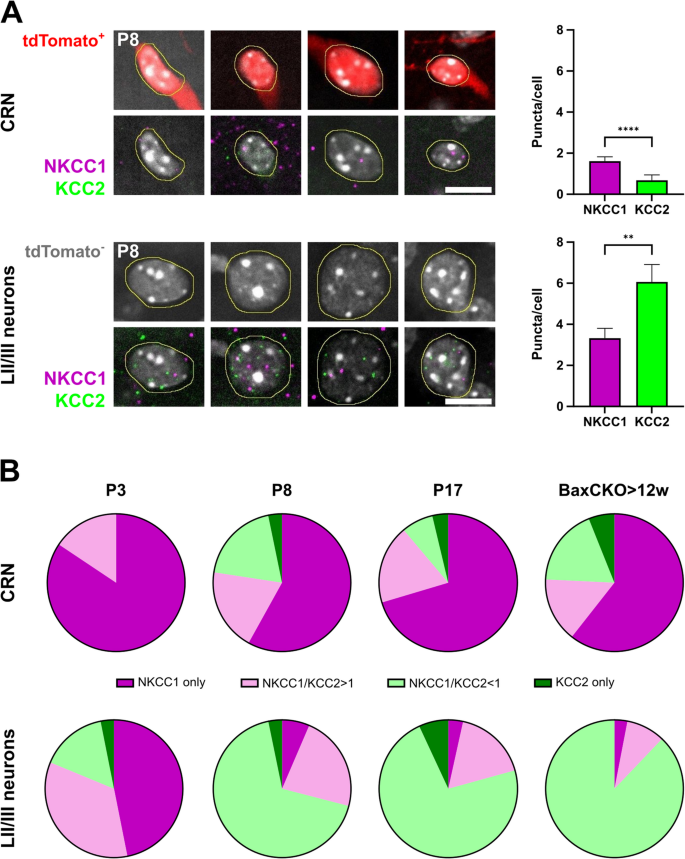
方法细节:利用多重荧光原位杂交(FISH),在P3、P8、P17以及成年保留CRN的小鼠脑片中,分别检测CRN和II/III层神经元中NKCC1和KCC2的mRNA表达,统计不同发育阶段两种转运体的表达优势比例。随后在OTCs中,使用NKCC1特异性抑制剂布美他尼长期处理,追踪CRN密度变化,验证NKCC1活性对CRN存活的影响。
结果解读:FISH结果显示,II/III层神经元在P3之后KCC2表达逐渐升高,P8开始大部分神经元转为KCC2占优的表达谱,而CRN从P3到成年始终维持NKCC1占优的表达谱:P3时100%(32/32)的CRN为NKCC1占优,P8为77%(24/31),P17为89%(24/27),成年存活CRN为76%(25/32),这种表达特征显著区别于II/III层神经元(p<0.0001)。药理学实验显示,从培养第1天开始使用布美他尼处理后,培养第10-12天的CRN密度有高于对照组的趋势(p=0.06),提示阻断NKCC1可以减少CRN丢失,NKCC1活性与CRN死亡相关。对应结果图:
文献未提及具体实验产品,领域常规使用荧光原位杂交试剂盒、共聚焦显微镜。
3.4 光遗传操控CRN活性验证其对网络兴奋性和自身存活的影响
实验目的:明确CRN急性激活对皮层网络兴奋性的影响,以及慢性激活对CRN自身存活的作用。
方法细节:在ΔNp73Cre阳性CRN中特异性表达光敏感通道ChR2(H134R),在培养第7-8天进行急性光遗传刺激,结合MEA记录分析刺激前后网络兴奋性的变化。随后在培养第9-10天开始,进行为期6天的慢性光遗传刺激,纵向追踪CRN密度的变化,对比对照组分析慢性激活对CRN丢失的影响。
结果解读:急性光遗传刺激结果显示,CRN激活后,刺激间隔期的自发网络事件频率升高至基线的180 ± 40%(n=7培养块,p=0.02),事件振幅从83.5 ± 17.4 μV升高至104.7 ± 20.8 μV(p=0.047),每个事件参与电极数从9.9 ± 2.6增加到16.4 ± 2.9(p=0.03),提示CRN激活可以显著提高皮层网络的兴奋性,放大自发网络活动。慢性光遗传刺激结果显示,刺激6天后,刺激组的标准化CRN密度显著低于各对照组(刺激组0.7 ± 0.1,对照组约0.9,p=0.02),证明慢性CRN激活可以加速CRN的丢失。对应结果图:
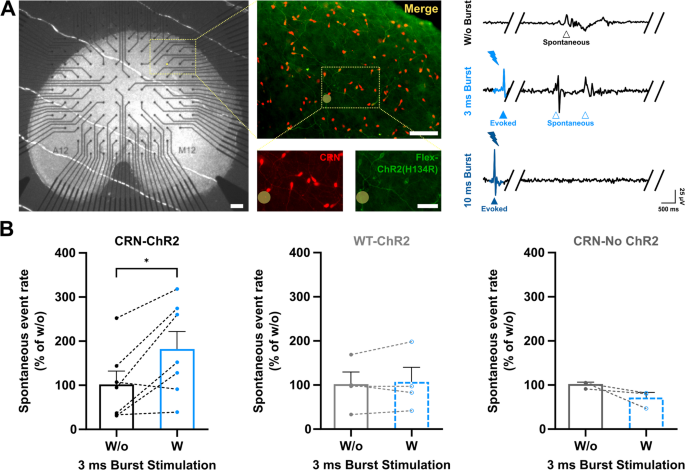
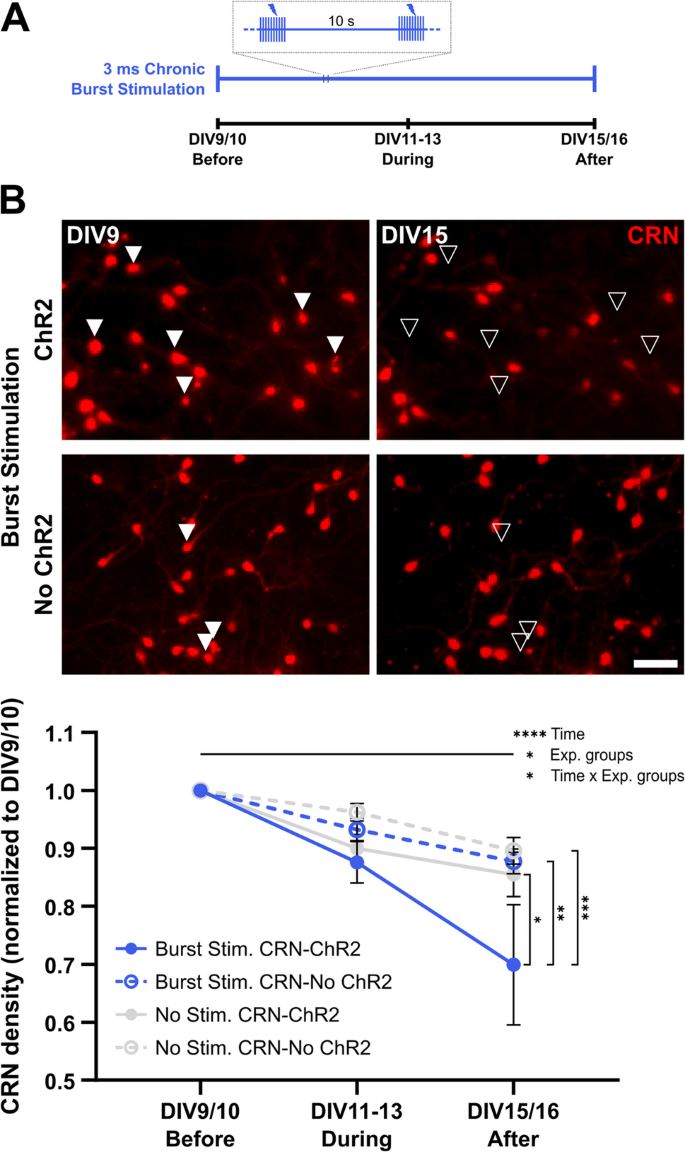
文献未提及具体实验产品,领域常规使用光遗传系统、多通道电生理记录设备。
4. Biomarker研究及发现成果
Biomarker定位
本研究明确的特征生物标志物是钠离子-钾离子-氯离子共转运体1(NKCC1,由Slc12a2基因编码),其筛选逻辑基于发育过程中GABA能反应从兴奋性转为抑制性的经典规律,该转换依赖于氯离子转运体表达谱的改变,本研究通过对不同发育阶段CRN和对照神经元的表达谱分析筛选得到该标志物,随后通过药理学和功能学验证了其功能。
研究过程详述
NKCC1的表达分析样本来自不同发育阶段小鼠新皮层的ΔNp73阳性CRN,采用多重荧光原位杂交技术检测其mRNA表达,以同层面II/III层锥体细胞作为对照,统计不同发育阶段NKCC1相对于KCC2的表达优势比例。后续通过NKCC1特异性抑制剂布美他尼处理器官型皮层培养,纵向追踪CRN密度变化,验证NKCC1活性对CRN存活的影响。研究结果显示,从胚胎发育早期到成年,76%-100%的CRN维持NKCC1表达占优的特征,而同期对照II/III层神经元中仅不到20%维持NKCC1占优(每个时间点检测31-32个CRN,来自3只小鼠,p<0.0001)。药理学实验显示,抑制NKCC1后CRN丢失减少,趋势具有边缘统计学意义(p=0.06)。
核心成果提炼
本研究首次系统证实,NKCC1持续高表达是CRN区别于其他新皮层神经元的稳定分子特征,这种表达特征介导了GABA对CRN的兴奋作用,是CRN能够整合进早期发育网络并保持活性的分子基础,同时NKCC1的持续激活也促进了CRN的发育性丢失,提示NKCC1是调控CRN功能与命运的关键分子标志物,其表达特征与CRN的功能发挥和瞬时特性密切相关。本研究发现为理解CRN在新皮层发育中的作用提供了新的分子靶点,也为神经发育疾病的机制研究提供了新的方向,推测异常的NKCC1表达或CRN存活异常可能与多种神经发育疾病相关,靶向NKCC1的药物可能对这类疾病具有潜在治疗价值。