

Tau蛋白磷酸化会阻碍保护性tau蛋白包膜的功能。
Tau phosphorylation impedes functionality of protective tau envelopes
1. 领域背景与文献
文献英文标题:Tau phosphorylation impedes functionality of protective tau envelopes;
发表期刊:Nature Chemical Biology;影响因子:16.1(2024年);研究领域:神经退行性疾病分子机制(tau蛋白调控)
tau蛋白是神经元中关键的微管相关蛋白,通过与微管结合维持其稳定性,参与轴突运输等重要生理过程。在阿尔茨海默病等神经退行性疾病中,tau蛋白过度磷酸化并形成神经原纤维缠结,是核心病理标志之一。现有研究已明确tau与微管的结合存在两种模式:单个tau分子沿微管快速扩散(高周转、低稳定性),或多个tau分子协同结合形成“包膜”结构(低周转、高稳定性),后者能作为选择性屏障保护微管免受katanin等切割酶的作用。然而,tau磷酸化如何调控协同结合包膜的形成、稳定性及保护功能,其分子机制尚未系统阐明,这一空白限制了对tau病理损伤通路的深入理解。本研究针对这一核心问题,通过体外与细胞实验结合,揭示了磷酸化对tau包膜的精准调控机制,为神经退行性疾病的病理机制提供了新的视角。
2. 文献综述解析
现有研究围绕tau的微管结合模式、磷酸化对tau-微管亲和力的影响及tau包膜的功能展开,但缺乏对磷酸化调控tau包膜形成与功能的系统性研究。
现有研究梳理:tau蛋白的微管结合分为非协同(单个分子扩散)和协同(包膜形成)两种模式,协同结合依赖tau分子间的相互作用,形成的包膜能有效抑制katanin对微管的切割活性;tau磷酸化被广泛报道会降低其与微管的亲和力,促进tau异常聚集,但这些研究多聚焦于单个tau分子的结合行为,未涉及对协同结合包膜的调控作用;katanin作为微管切割酶,在神经元发育和病理过程中调控微管动态平衡,tau包膜的保护作用是维持微管稳定的关键,但磷酸化修饰后的tau包膜是否仍具备该功能尚未明确。
本研究创新价值:首次明确tau磷酸化通过降低tau分子间的协同结合能力,从三个层面调控包膜功能:抑制包膜初始形成、降低包膜内部tau密度与结构稳定性、削弱其对微管的保护功能;建立了tau磷酸化状态与包膜功能的直接因果关联,解释了磷酸化tau导致微管不稳定的新机制,弥补了现有研究在tau协同结合调控机制上的核心空白,为神经退行性疾病的干预靶点开发提供了新方向。
3. 研究思路总结与详细解析
本研究通过体外重组蛋白制备与细胞模型结合,构建了“磷酸化对tau包膜形成的影响→包膜结构完整性变化→细胞内功能验证→包膜微管保护功能分析”的完整逻辑链条,系统解析了tau磷酸化对包膜的调控机制。
3.1 不同磷酸化水平tau样本的制备与验证
实验目的:获得具有明确磷酸化水平差异的tau蛋白样本,为后续功能实验提供标准化材料。
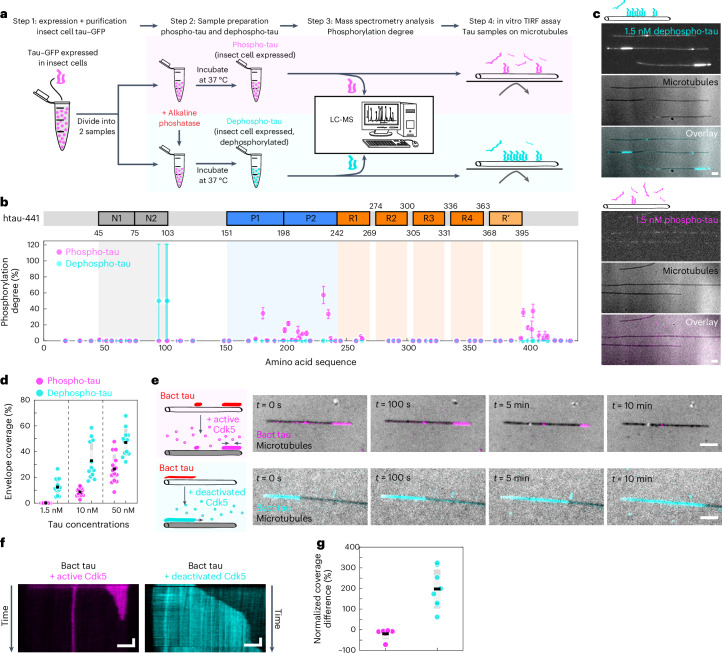
方法细节:通过昆虫细胞表达全长2N4R tau(内源性磷酸化状态,命名为phospho-tau),使用FastAP碱性磷酸酶处理得到去磷酸化tau(dephospho-tau);通过细菌细胞表达tau(低内源性磷酸化水平,命名为Bact-tau),使用Cdk5/p35激酶处理获得高磷酸化tau(Bact-Cdk5-tau)。采用质谱技术检测磷酸化位点及程度,Western blot实验使用总tau抗体(tau5)及磷酸化特异性抗体(AT8、AT180、pS404)验证磷酸化水平差异。
结果解读:质谱分析显示,phospho-tau在tau的脯氨酸富集结构域(P1、P2)及C末端存在多个磷酸化位点,dephospho-tau的整体磷酸化程度降低约85%(n=3,P<0.001);Western blot结果显示,dephospho-tau的pS404信号强度仅为phospho-tau的18%(n=3,P<0.001);Bact-Cdk5-tau的磷酸化程度较Bact-tau升高约3倍(n=3,P<0.001)。
产品关联:实验所用关键产品:FastAP碱性磷酸酶(EF0651, Thermo Fisher)、Cdk5/p35激酶(V3271, Promega)、tau5抗体(Santa Cruz)、AT8磷酸化tau抗体(Thermo Fisher Scientific)、AT180磷酸化tau抗体(Thermo Fisher Scientific)、pS404磷酸化tau抗体(Thermo Fisher Scientific)。
3.2 体外TIRF显微镜观察tau包膜形成与解体
实验目的:明确tau磷酸化对包膜初始形成及已形成包膜稳定性的直接影响。
方法细节:将不同浓度的磷酸化/去磷酸化tau加入紫杉醇稳定的微管表面,使用全内反射荧光(TIRF)显微镜观察包膜形成情况;在已形成的Bact-tau包膜体系中,分别加入活性Cdk5激酶或热灭活Cdk5激酶,动态观察包膜结构变化。
结果解读:低浓度(1.5nM)dephospho-tau即可在微管表面形成微米级连续包膜,而相同浓度的phospho-tau仅以单个分子形式结合微管;当浓度提升至10nM时,两者均能形成包膜,但dephospho-tau的包膜覆盖率(约82%)显著高于phospho-tau(约41%,n=12-14,P<0.001);向已形成的tau包膜体系中加入活性Cdk5后,包膜从边界开始快速解体,15min内包膜覆盖率降低约60%(n=6,P<0.001),而热灭活Cdk5组包膜覆盖率反而升高约25%(n=8,P<0.01)。
产品关联:实验所用关键产品:紫杉醇(17191, Sigma)、TIRF显微镜(Nikon-Ti E)。
3.3 tau包膜完整性与协同结合能力分析
实验目的:探究磷酸化tau参与包膜形成的能力及包膜结构特性的变化。
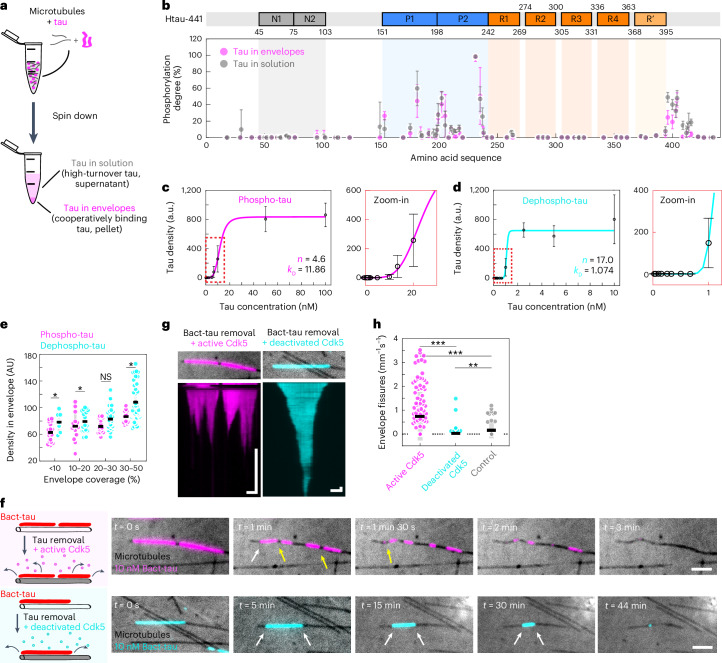
方法细节:将1μM phospho-tau与微管孵育后超速离心,分离包膜结合tau(沉淀组分)与游离tau(上清组分),通过质谱分析两组分的磷酸化模式差异;滴定不同浓度的磷酸化/去磷酸化tau,结合Hill-Langmuir方程计算tau与微管结合的亲和力(解离常数kD)及协同性(Hill系数);定量测量包膜内部tau分子密度,观察包膜解体过程中的裂变事件频率。
结果解读:沉淀组分(包膜结合tau)与上清组分(游离tau)的磷酸化模式无显著差异,说明磷酸化tau仍具备参与包膜形成的能力;Hill系数分析显示,dephospho-tau的协同结合能力更强(Hill系数n=17.0),而phospho-tau的协同性显著降低(n=4.6);解离常数kD显示,dephospho-tau与微管的亲和力(kD=1.074nM)远高于phospho-tau(kD=11.86nM);phospho-tau包膜内部的tau密度比dephospho-tau低约22%(n=12-37,P<0.05);加入活性Cdk5后,phospho-tau包膜解体过程中的裂变事件频率是对照组的3.2倍(n=117-119,P<0.001),说明包膜结构稳定性下降。
产品关联:文献未提及具体实验产品,领域常规使用超速离心机、timsToF Pro质谱仪等。
3.4 细胞内tau包膜形成与周转的验证
实验目的:在细胞生理环境中验证tau磷酸化对包膜形成及稳定性的调控作用。
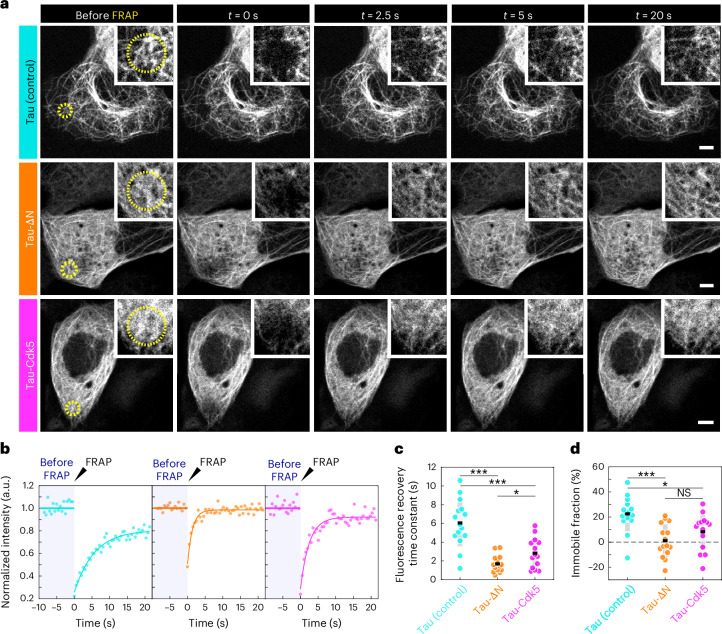
方法细节:在HEK293T细胞中分别过表达tau或tau+Cdk5/p25,制备细胞裂解液与微管孵育,观察包膜形成情况;在U-2 OS细胞中共表达GFP-tau与mScarlet-tubulin,观察细胞周期进程中tau与微管的结合变化;在IMCD-3细胞中分别过表达tau、tau-ΔN(N端截短,无法形成包膜)或tau+Cdk5/p25,通过荧光漂白恢复(FRAP)实验检测tau的周转速率;通过细胞外pH处理(从7.4升至8.4)使tau从微管解离,观察包膜斑块的形成与恢复过程。
结果解读:过表达Cdk5/p25的HEK293T细胞裂解液中,tau包膜覆盖率仅为对照组的11%(n=8,P<0.001);U-2 OS细胞进入有丝分裂期时,tau与微管的Pearson相关系数从0.76降至0.31(n=20-25,P<0.001),说明激酶活性升高导致tau从微管解离;FRAP实验显示,tau-Cdk5组的tau荧光恢复时间常数为2.1min(对照组为5.3min,n=14-15,P<0.001),固定组分比例为15%(对照组为35%,n=14-15,P<0.01),说明磷酸化tau的周转速率更快;pH处理后,对照组细胞中出现明显的tau包膜斑块,tau-ΔN组tau信号均匀解离,tau-Cdk5组的包膜斑块恢复速率比对照组慢约1.2倍(n=25,P<0.05)。
产品关联:实验所用关键产品:Lipofectamine 2000转染试剂(Thermo Scientific)、FRAP显微镜(Nikon CSU-W1)。
3.5 tau包膜的微管保护功能验证
实验目的:明确tau磷酸化对包膜保护微管免受katanin切割功能的影响。
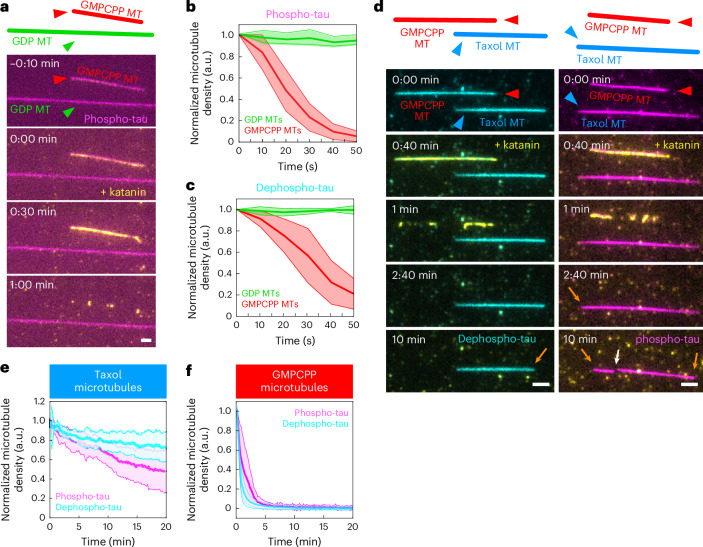
方法细节:体外实验中,将GMPCPP微管(无法形成tau包膜)与GDP/GMPCPP-capped微管(可形成tau包膜)分别与磷酸化/去磷酸化tau孵育,加入katanin后观察微管切割情况;细胞实验中,在IMCD-3细胞中过表达katanin,同时分别过表达tau、tau-ΔN或tau+Cdk5/p25,通过免疫荧光实验检测细胞内微管密度变化。
结果解读:体外实验显示,GMPCPP微管因无法形成tau包膜,被katanin快速切割(10min内微管密度降低约90%),而GDP微管在tau包膜保护下仅降低约15%;phospho-tau包膜的微管保护能力显著下降,katanin处理15min后微管密度降低约45%,而dephospho-tau包膜组仅降低约12%(n=12-19,P<0.01);细胞实验显示,过表达katanin的细胞中,tau组的微管密度与非转染细胞无显著差异,tau-ΔN组微管密度降低约32%(n=131-132,P<0.001),tau-Cdk5组微管密度降低约27%(n=60-72,P<0.001);微管密度与katanin密度的相关性分析显示,tau组相关系数为-0.25,tau-Cdk5组为-0.57,说明磷酸化tau包膜的保护功能显著受损。
产品关联:实验所用关键产品:katanin-GFP(重组表达)、抗β-tubulin抗体(DSHB Hybridoma Product E7)。
4. Biomarker研究及发现成果
本研究中,“磷酸化tau状态”及“tau包膜结构”可作为微管稳定性及神经退行性疾病病理进程的潜在Biomarker,其调控机制为疾病干预提供了新靶点。
Biomarker定位:涉及的Biomarker包括“磷酸化修饰的tau蛋白(尤其是Cdk5磷酸化位点)”及“tau包膜结构”。筛选逻辑:先通过体外重组蛋白筛选不同磷酸化水平tau对包膜形成的影响,再通过细胞内激酶过表达模拟病理磷酸化状态,验证包膜功能变化;验证逻辑:通过质谱与Western blot定量磷酸化水平,TIRF与FRAP实验验证包膜形成与稳定性,细胞免疫荧光验证保护功能。
研究过程详述:Biomarker来源包括体外重组tau蛋白及细胞样本。验证方法:采用质谱技术检测磷酸化位点及程度,Western blot定量磷酸化水平;TIRF显微镜动态观察包膜形成与微管切割情况;FRAP实验检测tau周转速率;细胞免疫荧光检测微管密度变化。特异性与敏感性:Cdk5磷酸化修饰后,tau包膜形成能力降低约89%(n=8,P<0.001);phospho-tau包膜的微管保护能力比dephospho-tau包膜下降约60%(n=12-19,P<0.01);细胞内微管密度与katanin密度的相关性,tau-Cdk5组(-0.57)显著高于tau组(-0.25,P<0.001)。
核心成果提炼:该Biomarker的功能关联为:tau磷酸化通过降低分子间协同性,抑制包膜形成并降低其稳定性,导致微管易被katanin切割,进而引发微管不稳定;创新性在于首次揭示tau包膜是磷酸化tau介导病理损伤的关键介质,建立了“tau磷酸化→包膜功能受损→微管不稳定→神经元损伤”的完整病理通路;统计学结果:所有关键实验均包含至少3次独立重复,数据以mean±s.d.表示,差异显著性以P值标注,如包膜覆盖率差异(P<0.001)、Hill系数差异(P<0.001)、微管密度差异(P<0.001)等,数据可靠性高。