腕足动物基因组揭示了两侧对称动物体型模式形成中BMP信号的演化
Brachiopod genome unveils the evolution of BMP signalling in bilaterian body patterning
1. 领域背景与文献
文献英文标题:Brachiopod genome unveils the evolution of BMP signalling in bilaterian body patterning;
发表期刊:Nature Communications;影响因子:17.6(2025年);研究领域:进化发育生物学、分子生物学
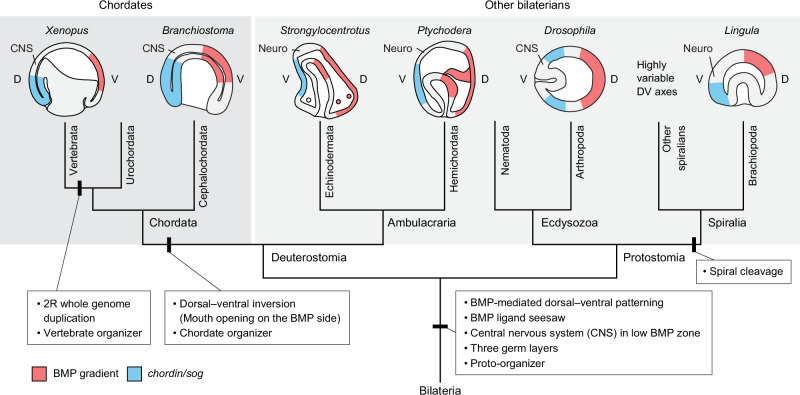
两侧对称动物(Bilateria)的背腹轴模式形成是进化发育生物学的核心研究方向,骨形态发生蛋白(BMP)信号通路是调控该过程的关键分子网络。领域共识:早期研究揭示,原口动物(如果蝇)中BMP信号在背侧激活,抑制腹侧神经发生;后口动物(如脊椎动物)中BMP信号在腹侧激活,神经发生于背侧,这一差异被归因于脊椎动物祖先发生的体轴反转。然而,作为两侧对称动物第三大类群的螺旋动物门(Spiralia),其BMP信号的功能呈现高度多样性:环节动物Capitella teleta中BMP信号影响左右不对称而非背腹轴;软体动物Crepidula fornicata中BMP仅调控头部神经命运;部分软体动物中BMP甚至促进神经发生,与原口、后口动物的功能相反。目前螺旋动物门中腕足动物的BMP通路研究仅为初步观察,缺乏系统解析,导致螺旋动物祖先的BMP功能模式仍不明确。
本研究以腕足动物舌形贝(Lingula anatina)为研究对象,通过染色体水平基因组组装、多组学分析及功能实验,系统解析BMP信号在其背腹轴模式形成和神经发生中的作用,填补螺旋动物门中腕足动物类群的研究空白,为揭示两侧对称动物BMP信号通路的进化保守性与多样性提供关键证据。
2. 文献综述解析
作者对现有研究按两侧对称动物三大类群(原口动物、后口动物、螺旋动物)进行分类评述,系统梳理了BMP信号在不同类群中的功能模式与进化变异。
在原口动物(如节肢动物)和后口动物(如脊椎动物、棘皮动物)中,BMP信号通路的核心功能高度保守:通过形成BMP信号梯度调控背腹轴模式,且BMP信号均抑制神经发生,神经组织形成于BMP信号活性最低的区域。其中,部分物种存在“BMP seesaw”模式,即BMP配体在信号梯度的两端均有表达,通过负反馈机制维持梯度稳定性。
而在螺旋动物门中,现有研究显示BMP功能呈现显著多样性:环节动物Owenia fusiformis中BMP不参与背腹轴模式形成;软体动物Lottia peitaihoensis中BMP促进神经发生,与原口、后口动物的功能相反;部分类群甚至丢失了关键BMP拮抗剂chordin。但现有研究主要集中于软体动物和环节动物,腕足动物作为螺旋动物门的早期分支类群,其BMP通路的功能尚未被系统解析,导致螺旋动物祖先的BMP功能模式存在争议。
本研究的创新价值在于:首次利用染色体水平基因组结合功能实验,解析腕足动物的BMP信号通路,明确螺旋动物祖先具有与原口、后口动物保守的BMP功能(背腹轴模式调控、抑制神经发生),而螺旋动物中其他类群的功能变异是通过发育系统漂移(DSD)产生的,为两侧对称动物BMP信号的进化提供了新的视角。
3. 研究思路总结与详细解析
本研究的核心目标是解析舌形贝BMP信号通路在背腹轴模式形成和神经发生中的功能,揭示其在两侧对称动物中的进化保守性与多样性;核心科学问题是螺旋动物祖先是否具有保守的BMP介导背腹轴模式和抑制神经发生的功能;技术路线遵循“基因组解析→基因家族进化→表达模式分析→功能扰动→转录组验证→跨物种比较”的闭环逻辑。
3.1 染色体水平舌形贝基因组组装
实验目的:获得高质量染色体水平基因组,为后续BMP通路基因分析及进化研究提供基础;
方法细节:采用PacBio HiFi测序技术(405×覆盖度)和Hi-C测序技术(1.71亿对读长),利用Hifiasm软件进行基因组组装,Purge_dups去除冗余序列,通过Hi-C数据辅助scaffolding获得染色体水平组装,最终通过BUSCO评估基因组完整性,利用RNA-seq数据进行基因注释;
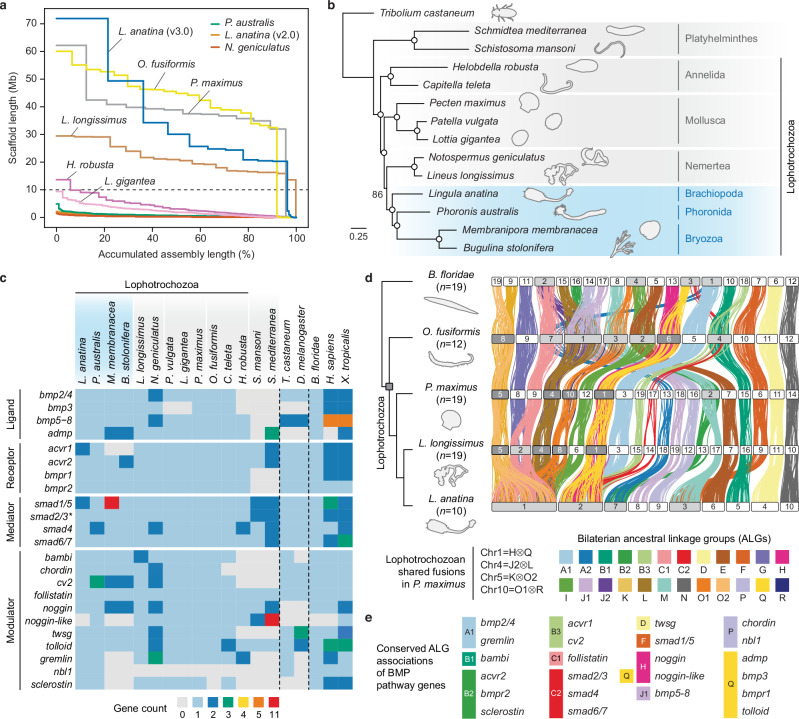
结果解读:组装获得的舌形贝基因组大小为329.3Mb,包含10条染色体,BUSCO完整性达98.1%(Metazoa odb10),显著优于之前的 scaffold 水平组装;系统发育分析显示腕足动物与帚虫、苔藓动物亲缘关系最近,共同构成冠轮动物的一个分支;
实验所用关键产品:PacBio Sequel II测序平台、Illumina NovaSeq 6000测序平台、Qiagen血液和细胞培养DNA midi试剂盒、Agilent 2100 Bioanalyzer。
3.2 螺旋动物BMP通路基因家族进化分析
实验目的:比较不同螺旋动物的BMP通路基因组成,揭示BMP通路的进化变异规律;
方法细节:利用OrthoFinder软件鉴定螺旋动物中BMP通路的同源基因,通过构建基因树验证基因拷贝数的变化(复制或丢失),并对关键基因的功能域进行分析;
结果解读:舌形贝的BMP通路基因组成高度保守,多数基因为单拷贝,仅smad1/5发生复制,丢失了noggin-like基因;而其他螺旋动物类群呈现显著的基因变异:苔藓动物Membranipora membranacea存在大量基因复制(如11个smad1/5拷贝)和丢失(如acvr1、DAN家族基因);帚虫Phoronis australis存在smad4和cv2的复制;部分环节动物丢失了chordin基因;
产品关联:文献未提及具体实验产品,领域常规使用OrthoFinder、IQ-TREE、MAFFT等生物信息学工具。
3.3 BMP通路基因的同线性保守性分析
实验目的:探究BMP通路基因在基因组中的位置是否保守,反映其调控程序的进化稳定性;
方法细节:比较舌形贝、文昌鱼、环节动物Owenia fusiformis、软体动物Pecten maximus、纽形动物Lineus longissimus的基因组同线性,分析BMP通路基因与两侧对称动物祖先连锁群(ALG)的关联,通过卡方检验比较BMP基因与随机基因的ALG保守率;
结果解读:23个BMP通路基因在5个物种中均与同一ALG关联,其保守率显著高于随机选择的基因(卡方检验,P=0.003);即使在基因组重排剧烈的物种(如苔藓动物)中,多数BMP基因仍保持ALG关联;这一结果表明BMP基因的基因组位置保守,反映其调控程序在长期进化中被保留;
产品关联:文献未提及具体实验产品,领域常规使用SyntenyFinder、RIdeogram、JuiceBox等工具。
3.4 舌形贝胚胎发育中BMP信号的时空激活模式
实验目的:解析BMP通路基因在舌形贝胚胎发育中的时空表达模式,明确BMP信号的激活位置;
方法细节:通过RNA-seq时间序列分析BMP通路基因的时序表达;利用原位杂交技术检测BMP配体(bmp2/4、bmp3、bmp5-8、admp)及拮抗剂chordin的空间表达;通过免疫染色检测磷酸化Smad1/5(pSmad1/5,BMP信号激活的标记)的细胞定位;
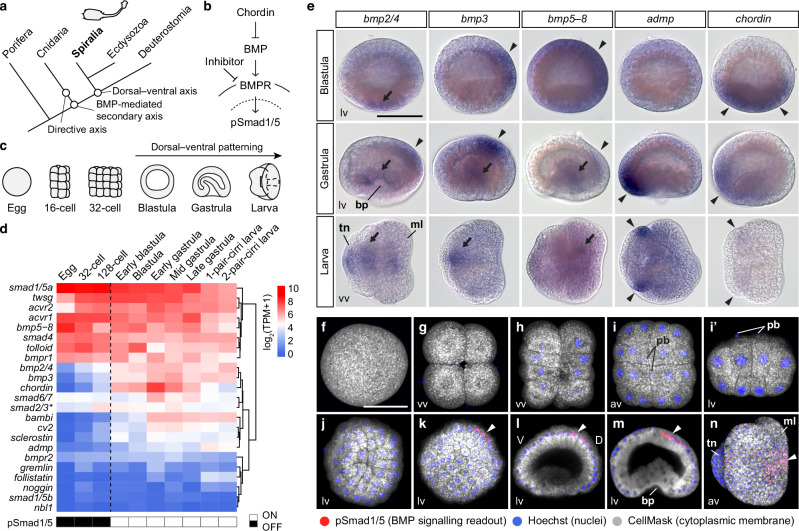
结果解读:时序表达显示smad1/5、bmp5-8为母源表达,bmp2/4、chordin在囊胚期上调;原位杂交显示,囊胚期chordin在植物极内胚层表达,bmp3在背侧外胚层表达;原肠胚期形成“BMP seesaw”模式:背侧高表达bmp2/4、bmp3,腹侧高表达admp和chordin;免疫染色显示pSmad1/5在囊胚期背侧动物极开始激活,持续到原肠胚和幼虫期,表明BMP信号在背侧活性最高;
实验所用关键产品:抗磷酸化Smad1/5抗体(Cell Signalling 9511S)、Hoechst 33342核染料(Invitrogen H1399)、CellMask Deep Red细胞质染料(Invitrogen C10046)、Roche DIG RNA Labelling Mix。
3.5 BMP信号扰动对胚胎发育的功能影响
实验目的:验证BMP信号在舌形贝背腹轴模式形成、细胞增殖及壳发育中的功能;
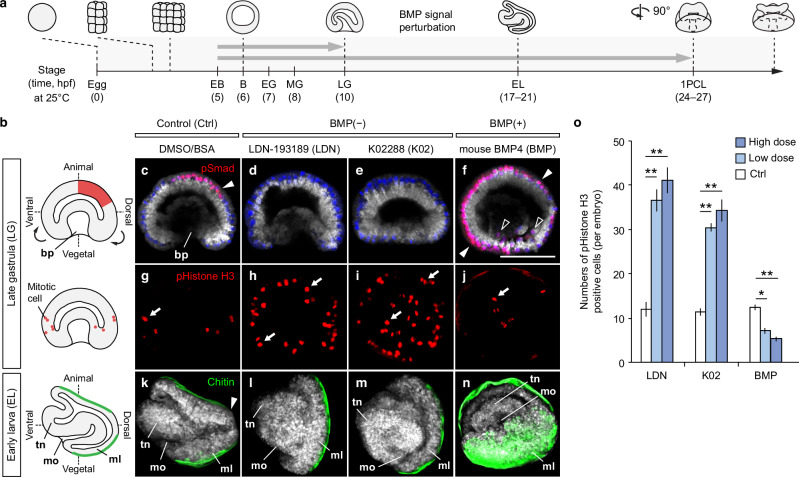
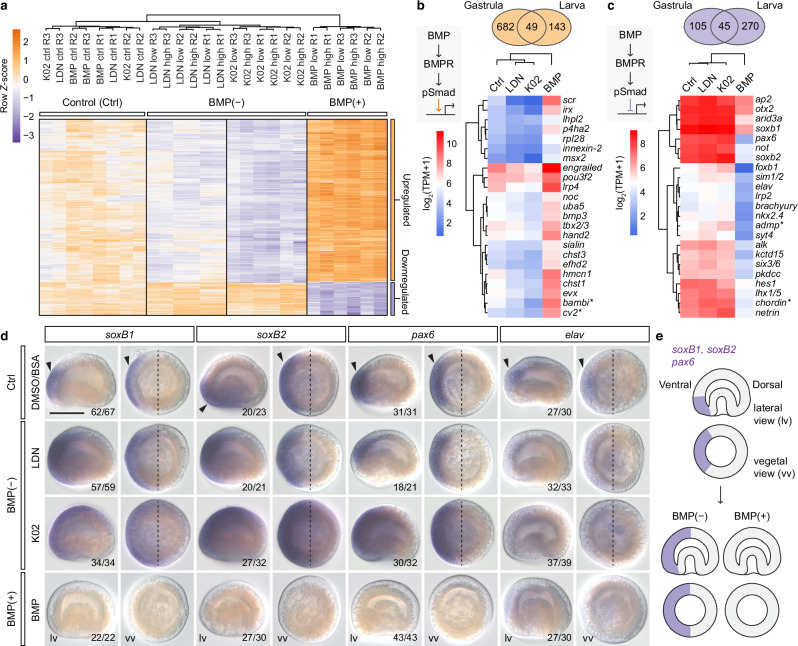
方法细节:使用BMP受体抑制剂LDN-193189、K02288(BMP(-))和重组小鼠BMP4蛋白(BMP(+))处理胚胎,处理窗口为早期囊胚到原肠胚或幼虫期;通过免疫染色检测pSmad1/5的信号变化,检测磷酸化Histone H3(pHistone H3,细胞增殖标记)的细胞数量;利用几丁质结合探针检测胚胎壳的发育情况;
结果解读:BMP(-)处理完全消除pSmad1/5信号,导致原肠胚的原肠缩短,细胞增殖数显著增加(n=4-5,P<0.05),胚胎壳融合为单个结构;BMP(+)处理使pSmad1/5信号扩展至整个胚胎,细胞增殖数显著减少(n=4-5,P<0.05),胚胎壳域向腹侧扩展,包裹触手和口部;
实验所用关键产品:LDN-193189(Stemgent 04-0074)、K02288(Tocris 4986)、重组小鼠BMP4(R&D Systems 5020-BP)、抗磷酸化Histone H3抗体(Millipore 06-570)、NEB几丁质结合探针(P5211S)。
3.6 BMP信号下游调控基因的转录组分析
实验目的:鉴定BMP信号调控的下游基因,明确其对神经发生的调控作用;
方法细节:对BMP扰动后的原肠胚和幼虫进行RNA-seq,进行差异表达分析和GO富集分析;通过原位杂交验证神经相关基因的表达变化;
结果解读:差异表达分析显示,BMP-downregulated基因显著富集“神经系统发育”GO条目,包括elav、soxb1、pax6等经典神经标记基因;原位杂交显示,这些神经基因在对照组胚胎的腹侧表达,BMP(-)处理后表达域扩展至背侧,BMP(+)处理后表达完全消失(elav表达部分保留);
实验所用关键产品:Illumina HiSeq 4000平台、TRIzol试剂、Qiagen RNeasy Micro Kit。
3.7 跨物种比较揭示BMP调控网络的保守性
实验目的:比较舌形贝与爪蟾的BMP调控网络,揭示两侧对称动物中保守的调控逻辑;
方法细节:分析舌形贝中爪蟾背腹轴关键基因的表达变化,通过原位杂交检测同源基因的空间表达;利用转录组年龄指数(TAI)分析BMP信号对基因进化年龄的影响;
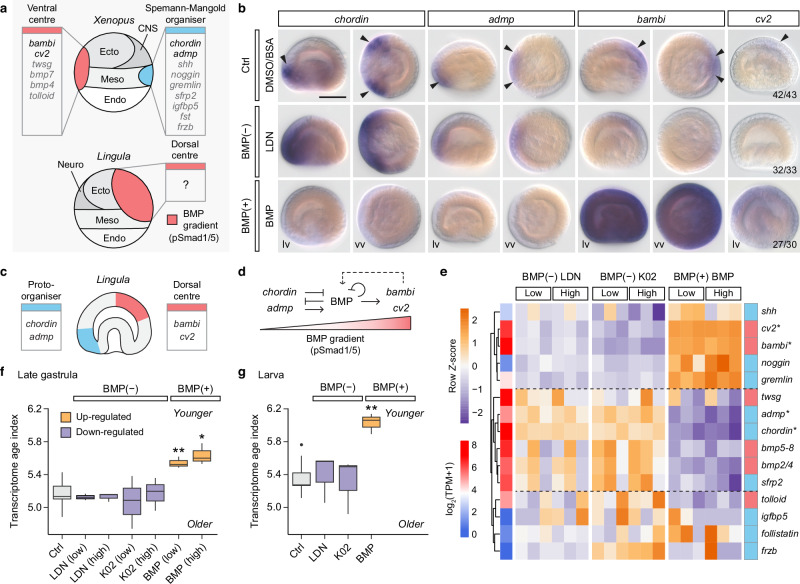
结果解读:舌形贝中chordin、admp(爪蟾组织者基因)在腹侧表达,受BMP信号抑制;bambi、cv2(爪蟾腹侧中心基因)在背侧表达,受BMP信号激活,与爪蟾体轴反转后的模式一致;TAI分析显示,BMP(+)处理使转录组的进化年龄显著降低(P<0.05),表明BMP信号激活上调进化上年轻的基因;
产品关联:文献未提及具体实验产品,领域常规使用BLAST、myTAI等工具。
4. Biomarker研究及发现成果
本文中的Biomarker为BMP信号通路中的关键调控基因,包括拮抗剂chordin、配体bmp2/4、admp、调节剂bambi、cv2等,作为背腹轴模式形成和神经发生的核心调控因子。
Biomarker定位与筛选逻辑
这些Biomarker的筛选遵循“基因组鉴定→表达模式分析→功能验证”的完整逻辑:首先通过基因组分析鉴定BMP通路的同源基因;然后通过原位杂交和RNA-seq分析其时空表达模式,确定与背腹轴相关的基因;最后通过功能扰动实验验证其调控作用,明确其在BMP信号梯度形成和神经发生中的功能。
研究过程详述
chordin作为BMP信号的核心拮抗剂,来源于舌形贝胚胎的腹侧内胚层,通过原位杂交验证其在囊胚期植物极、原肠胚期腹侧的特异性表达;免疫染色显示其表达区域与pSmad1/5的激活区域完全相反;功能扰动实验显示,BMP信号抑制chordin的表达,BMP(-)处理后chordin的表达域显著扩展。
bmp2/4和bmp3作为BMP配体,在胚胎背侧外胚层特异性表达,是背侧BMP信号激活的关键来源;admp作为另一种BMP配体,在腹侧表达,与chordin共同形成“BMP seesaw”模式,维持BMP信号梯度的稳定性。
bambi和cv2作为BMP信号的正反馈调节剂,在背侧BMP信号激活区域表达,受BMP信号上调,进一步增强背侧的BMP信号活性。
特异性与敏感性数据:pSmad1/5的背侧定位在30-50个胚胎中重复验证(n=3独立实验);转录组差异表达分析中,神经相关基因的差异表达FDR<0.05,fold-change>2;细胞增殖实验中,BMP(-)处理后增殖细胞数较对照组增加约2倍(n=4-5,P<0.05)。
核心成果提炼
本研究的核心成果包括:1. 首次在腕足动物中发现“BMP seesaw”模式,证明该模式在螺旋动物中存在,提示两侧对称动物祖先可能已具备该调控机制;2. 明确舌形贝中BMP信号抑制神经基因的表达,这一功能与原口、后口动物保守,表明螺旋动物祖先具有与其他两侧对称动物一致的BMP功能;3. 揭示BMP通路核心基因(如chordin)的基因组位置和调控逻辑在两侧对称动物中高度保守,下游基因的变异是通过发育系统漂移产生的。
统计学结果:细胞增殖实验中,LDN-193189低/高剂量处理后增殖细胞数与对照组的差异P值分别为0.0059/0.0075;K02288低/高剂量处理后P值分别为0.0002/0.0042;重组BMP4低/高剂量处理后P值分别为0.0265/0.0045;转录组年龄指数分析中,BMP(+)处理后原肠胚和幼虫的TAI与对照组差异P值均<0.05。