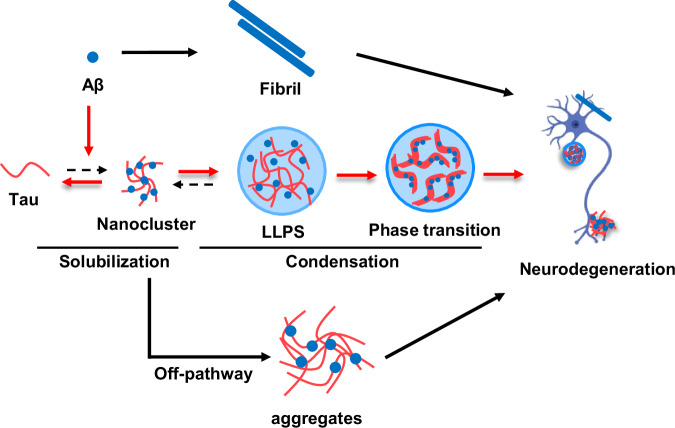
阿尔茨海默病中的Aβ通过早期纳米团簇溶解作用催化Tau蛋白的相分离和聚集。
Alzheimer's Aβ catalyzes Tau phase separation and aggregation via early nanocluster solubilization
1. 领域背景与文献
文献英文标题:Alzheimer’s Aβ catalyzes Tau phase separation and aggregation via early nanocluster solubilization;
发表期刊:Nature Communications;影响因子:17.694;研究领域:神经科学-阿尔茨海默病(AD)
阿尔茨海默病作为全球最常见的神经退行性疾病,其研究历程涵盖多个关键节点:1906年阿尔茨海默医生首次报道临床病例,开启AD研究序幕;1984年科研人员从AD患者脑内分离出β-淀粉样蛋白(Aβ);1991年明确微管相关蛋白Tau与神经原纤维缠结(NFT)的病理关联;2000年后液-液相分离(LLPS)被发现参与神经退行性疾病的病理过程;近年研究热点聚焦于Aβ与Tau的双向调控机制。当前AD研究存在未解决的核心问题:Aβ与Tau在液-液相分离阶段的相互作用分子机制尚不明确,现有研究多聚焦单一分子的相行为,缺乏对两者动态调控过程的系统解析;临床治疗靶点多针对Aβ或Tau单一分子,难以有效阻断疾病进展。针对这一研究空白,本研究旨在解析Aβ40对Tau液-液相分离、相转变及聚集的调控机制,从分子到细胞层面阐明两者的相互作用模式,为AD的早期干预提供新的理论基础与潜在靶点。
2. 文献综述解析
作者对AD领域现有研究的分类维度涵盖分子层面(Aβ、Tau单一分子)、病理过程层面(液-液相分离、聚集)、相互作用层面(单向调控、双向调控),系统梳理了AD病理标志物的研究进展及液-液相分离在疾病中的作用。
现有研究已明确Aβ斑块和NFT是AD的两大核心病理标志物,Aβ的聚集可诱导神经毒性,Tau的异常磷酸化及聚集形成的NFT与认知下降程度密切相关;液-液相分离作为内在无序蛋白(IDPs)的重要生理过程,可参与细胞内无膜细胞器的形成,而异常液-液相分离可导致蛋白的病理性聚集,这一过程在Tau等IDPs的病理转化中发挥关键作用;Aβ与Tau之间存在双向相互作用,Aβ可通过激活激酶诱导Tau的磷酸化,Tau则可影响Aβ的聚集动力学,两者的协同作用推动AD的病理进展。现有研究的技术方法优势在于:细胞模型、动物模型可模拟AD的病理过程,为机制研究提供体内外实验体系;核磁共振(NMR)、分子动力学(MD)模拟等技术可解析蛋白-蛋白相互作用的分子细节;但同时存在局限性:多数研究聚焦单一分子的液-液相分离或聚集过程,缺乏对Aβ与Tau在液-液相分离阶段相互作用的动态解析;部分研究使用的Aβ亚型为聚集性更强的Aβ42,对AD患者脑内含量更高的Aβ40的研究相对较少;缺乏在模拟细胞拥挤环境下对两者相互作用的系统研究。本研究的创新价值在于:首次系统解析了Aβ40对Tau液-液相分离、相转变及聚集的完整调控过程,揭示了Aβ40先溶解Tau纳米簇再促进其液-液相分离的双阶段作用模式;结合NMR、MD模拟、细胞实验等多技术手段,从分子、生物物理到细胞层面全面阐明了Aβ40与Tau的相互作用机制;弥补了现有研究对Aβ40调控Tau相行为的空白,为AD的早期干预提供了新的理论基础。
3. 研究思路总结与详细解析
本研究的整体研究目标是阐明Aβ40调控Tau液-液相分离及聚集的分子机制,核心科学问题是Aβ40如何通过与Tau的相互作用影响其相行为和病理性聚集,技术路线遵循“假设-实验验证-分子解析-功能验证”的闭环逻辑:先验证Aβ40的液-液相分离能力,再研究其对Tau液-液相分离的影响,接着解析相转变和聚集过程,然后用NMR和MD模拟解析分子机制,最后通过细胞实验验证毒性效应。
3.1 Aβ40的液-液相分离能力验证
实验目的:明确Aβ40在体外实验条件下是否能发生液-液相分离(LLPS)。方法细节:首先利用catGRANULE算法基于蛋白一级序列预测Aβ40的液-液相分离倾向;随后在不同浓度PEG8000(10%、15%)、不同孵育时间(0h、12h)的条件下,进行浊度测量、TAMRA标记Aβ40的荧光显微镜观察,以及荧光漂白恢复(FRAP)实验检测聚集物的流动性。结果解读:catGRANULE算法预测Aβ40的液-液相分离倾向得分为0.248,表明其发生相分离的可能性较低;浊度测量显示各实验条件下均无显著的吸光度增加;荧光显微镜观察到Aβ40形成的是固体样聚集物而非液滴;FRAP实验显示Aβ40聚集物的荧光几乎不恢复,证实其为非动态的固体样结构。综合以上结果,Aβ40在本实验条件下不发生液-液相分离。产品关联:文献未提及具体实验产品,领域常规使用荧光显微镜、微板读板仪、FRAP实验系统等仪器设备。
3.2 Aβ40对Tau液-液相分离的调控
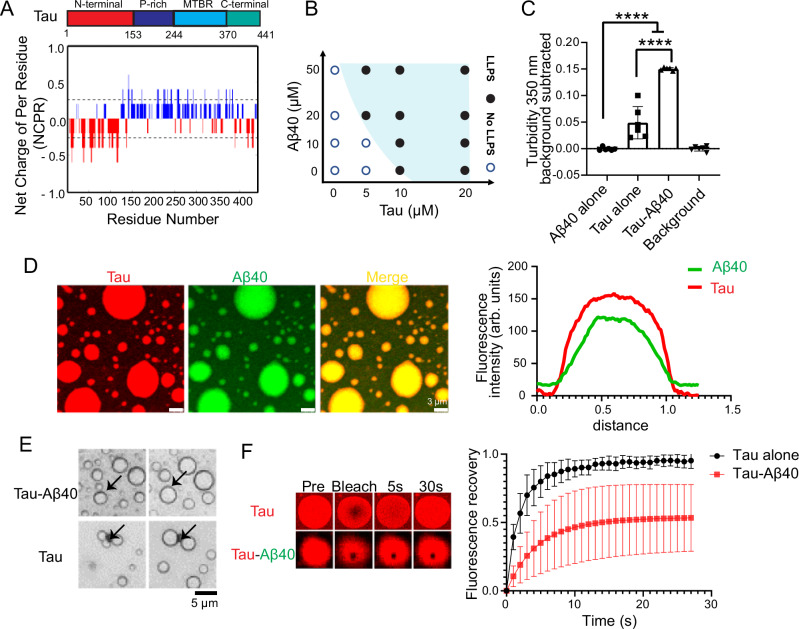
实验目的:研究Aβ40对Tau液-液相分离的调控作用及机制。方法细节:通过蛋白结晶机器人 dispenser 和 imager 构建Tau在不同Aβ40浓度下的相图;测量10μM Tau在1:1摩尔比Aβ40存在下的浊度变化;利用Alexa-647标记Tau、TAMRA标记Aβ40,通过荧光显微镜观察两者的共定位;进行FRAP实验检测Tau液滴的流动性变化。结果解读:相图显示与Tau单独存在相比,Aβ40的存在降低了Tau发生相分离的临界浓度;浊度测量显示Aβ40存在时Tau的吸光度较单独Tau增加3倍(n=6,P<0.0001),证实Aβ40促进Tau液-液相分离;荧光显微镜观察到Aβ40与Tau共定位在液滴中,说明Aβ40被招募到Tau凝聚物中;FRAP实验显示新鲜形成的Tau液滴荧光可完全恢复,而Aβ40存在时Tau的荧光恢复率降至约50%,表明Aβ40降低了Tau液滴的分子扩散速率,使其向凝胶样或固体样状态转变。产品关联:使用了Alexa Fluor™ 647、TAMRA荧光标记染料,领域常规使用此类荧光试剂进行蛋白示踪。
3.3 Aβ40加速Tau相转变
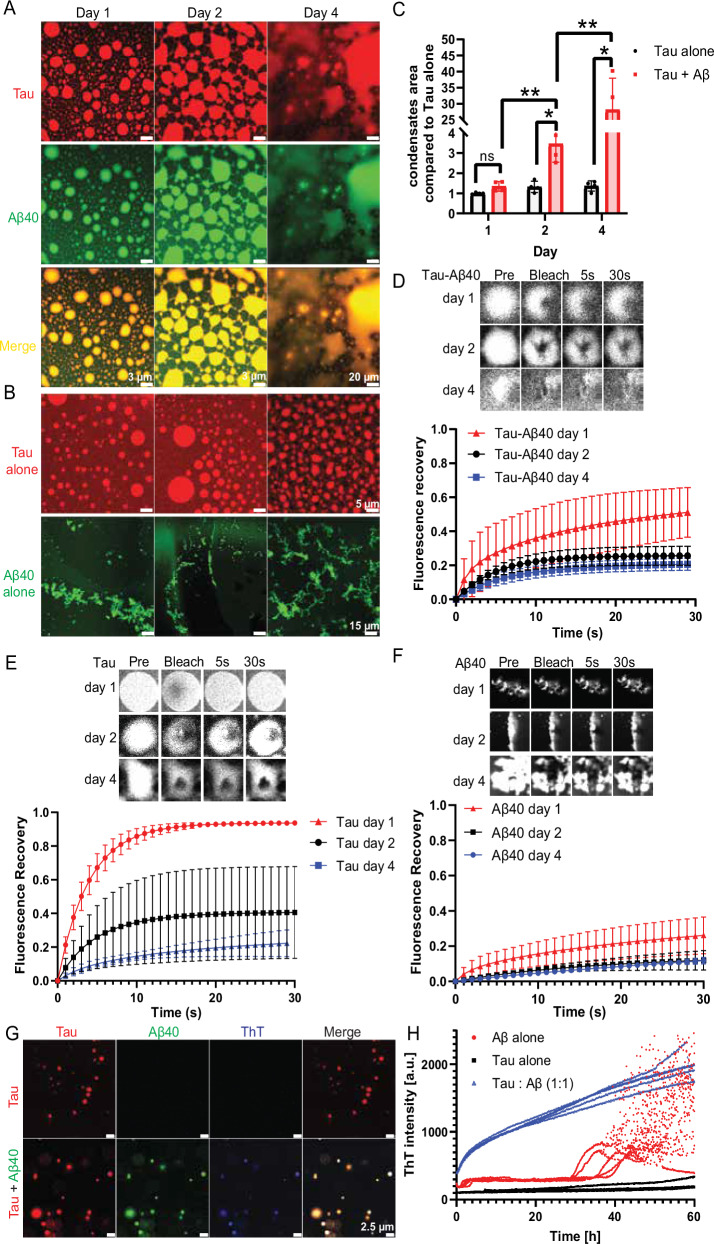
实验目的:解析Aβ40对Tau液滴相转变(液态向固态转变)的影响。方法细节:对10μM Tau在有无10μM Aβ40存在下的凝聚物进行长期延时荧光成像,观察不同时间点(1天、2天、4天)的形态变化;在各时间点进行FRAP实验检测凝聚物的流动性;通过Thioflavin T(ThT)染色检测淀粉样聚集的形成。结果解读:延时成像显示,Aβ40存在时Tau液滴在第2天即转变为星状网络结构,第4天形成不规则的刚性结构;而Tau单独存在时在第2天仍保持球形液滴,第4天才转变为网络结构;FRAP实验显示Aβ40存在时Tau凝聚物的荧光恢复率随时间降低更显著,说明其流动性持续下降;ThT染色显示Aβ40与Tau共孵育的样品出现强ThT阳性信号,而Tau单独样品无信号,证实Aβ40加速Tau向淀粉样聚集态转变。产品关联:使用了Thioflavin T染料,领域常规使用该染料特异性检测淀粉样蛋白的β-折叠结构。
3.4 Aβ40促进Tau体外聚集
实验目的:验证Aβ40对Tau体外聚集动力学的影响。方法细节:在无辅助因子(如肝素)的条件下,将15μM Tau与15μM Aβ40共孵育,在37℃振荡条件下通过ThT荧光监测聚集动力学。结果解读:聚集动力学曲线显示,Tau与Aβ40共孵育时无聚集延迟期,ThT荧光强度迅速升高;而Tau单独孵育时荧光强度无显著变化,说明Aβ40在无辅助因子的条件下仍能有效促进Tau的聚集,且Tau的相分离态可作为聚集的前体。产品关联:文献未提及具体实验产品,领域常规使用酶标仪进行荧光动力学检测。
3.5 Tau与Aβ40相互作用的分子解析
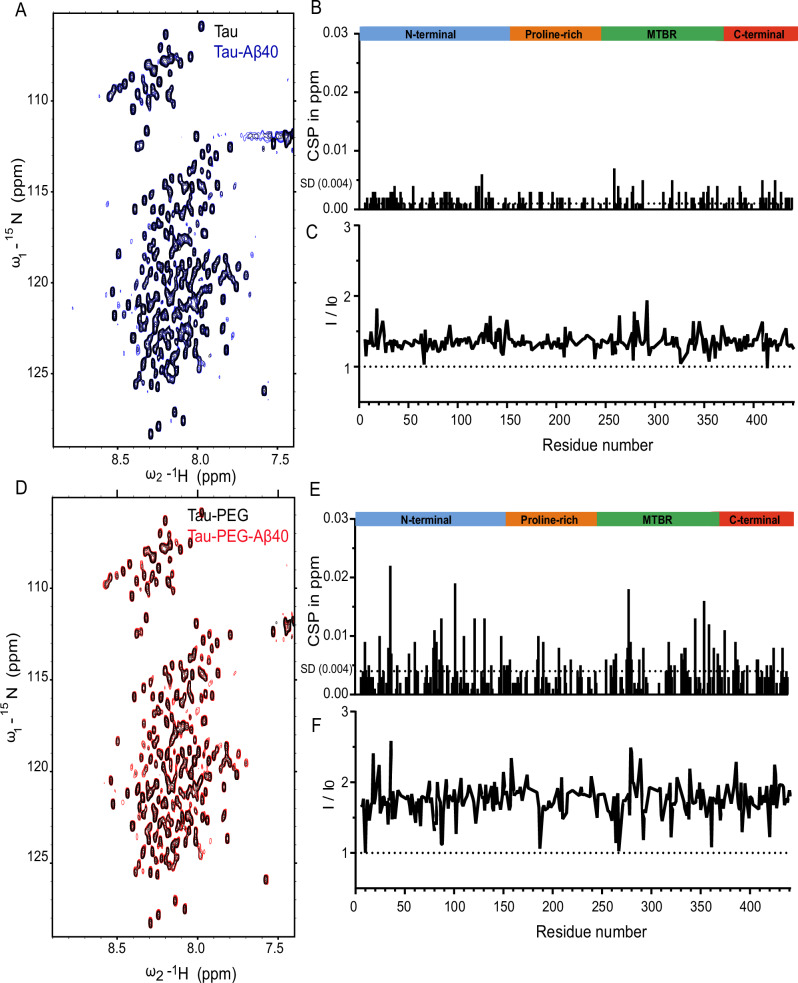
实验目的:从分子层面解析Aβ40与Tau的相互作用模式及对Tau结构的影响。方法细节:利用2D 1H-15N异核单量子相干(HSQC)NMR光谱,分析100μM 15N标记Tau在有无Aβ40存在下的交叉峰强度及化学位移扰动(CSP);通过质谱光度法分析Tau纳米簇在Aβ40存在下的大小变化。结果解读:在无PEG条件下,Aβ40的加入使Tau的交叉峰强度增加30%-40%,说明Aβ40溶解了原本NMR不可见的Tau纳米簇;质谱光度法显示Tau单独存在时形成123kDa、182kDa的纳米簇,而Aβ40存在时Tau的高聚体丰度显著降低;在有PEG的相分离条件下,Aβ40的加入使Tau的交叉峰强度增加约50%,且在PHF6*(275-280位残基)、R4结构域(340-370位残基)及N端区域出现显著的CSP,说明在相分离态下Aβ40与Tau的相互作用增强。产品关联:使用了700MHz Bruker NMR谱仪,领域常规使用高场NMR进行蛋白结构与相互作用解析。
3.6 MD模拟解析Aβ40增强Tau液-液相分离的机制
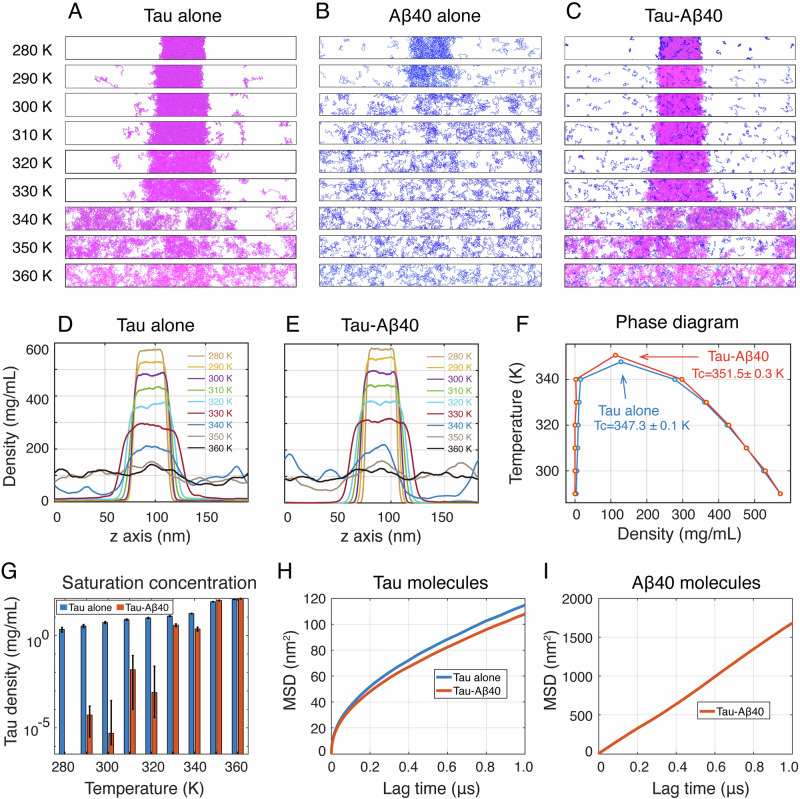
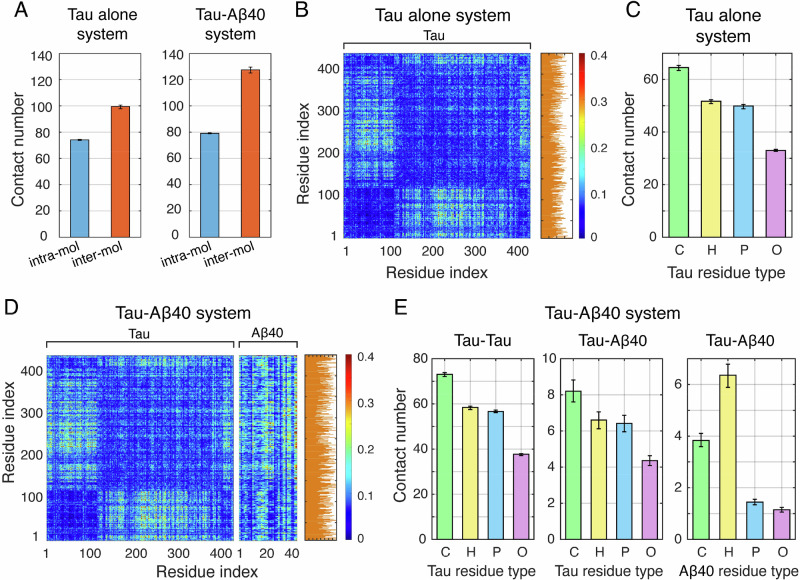
实验目的:通过分子动力学(MD)模拟解析Aβ40增强Tau液-液相分离的分子机制。方法细节:构建Tau单独、Aβ40单独、Tau-Aβ40混合三个系统,进行粗粒度MD模拟,分析不同温度下的相分离能力、密相密度、分子间相互作用等。结果解读:模拟显示Tau单独系统在280-330K范围内可发生相分离,340K以上相分离消失;Aβ40单独系统仅在<300K时发生相分离;Tau-Aβ40混合系统可共相分离,且密相密度高于Tau单独系统,临界温度(UCST)为351.5K,高于Tau单独系统的347.3K,说明Aβ40增强了Tau的相分离倾向;分子间相互作用分析显示,Aβ40通过其疏水残基(15-22位、30-40位)与Tau的带电残基相互作用,增强了Tau-Tau之间的分子间接触,尤其是静电相互作用。产品关联:使用了HOOMD-Blue MD模拟软件,领域常规使用该软件进行粗粒度蛋白模拟。
3.7 Aβ40对Tau诱导毒性的影响
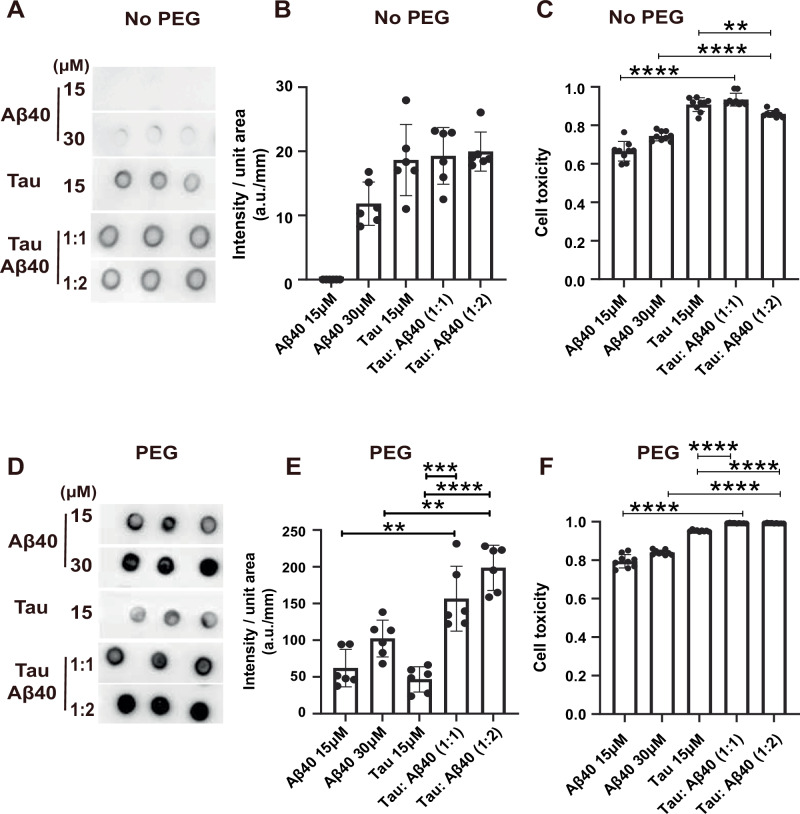
实验目的:研究Aβ40对Tau细胞毒性的调控作用。方法细节:用A11抗体(特异性识别毒性β-折叠聚集物)进行dot blot检测不同比例Tau-Aβ40聚集物的毒性;利用SH-SY5Y神经母细胞瘤细胞进行活力实验,检测不同样品的细胞毒性。结果解读:在无PEG条件下,Aβ40的加入使Tau聚集物的A11信号略有降低,细胞活力略有升高(Tau 15μM vs Tau:Aβ40 1:2,P=0.0023),说明Aβ40可部分溶解Tau的毒性聚集物;在有PEG的细胞拥挤模拟条件下,Tau-Aβ40共凝聚物的A11信号是Tau单独的3倍(n=6,P<0.0001),细胞活力显著降低,说明Aβ40促进形成的Tau相分离态具有更高的细胞毒性。产品关联:使用了CellTiter-Glo® Luminescent Cell Viability Assay Kit,领域常规使用该试剂盒检测细胞活力。
4. Biomarker研究及发现成果
本研究涉及的Biomarker包括Tau蛋白的相分离态、病理性聚集态,以及Aβ40与Tau的共凝聚物,其筛选与验证遵循“分子解析-生物物理验证-功能验证”的完整逻辑链条。
Tau的相分离态是AD早期病理过程的潜在Biomarker,Aβ40与Tau的共凝聚物是AD进展期的毒性Biomarker;筛选逻辑是先通过NMR、质谱光度法筛选Tau纳米簇在Aβ40存在下的变化,再通过ThT染色、dot blot验证聚集态和毒性,最后通过细胞实验验证功能。研究过程详述:Biomarker的来源为重组表达的Tau蛋白和Aβ40蛋白;验证方法包括:NMR光谱检测Tau的结构变化,质谱光度法分析纳米簇大小,ThT染色检测淀粉样聚集,A11抗体dot blot检测毒性聚集物,SH-SY5Y细胞活力实验检测毒性;特异性与敏感性:ThT染色对淀粉样β-折叠结构具有高特异性,A11抗体对毒性寡聚体的敏感性较高,细胞活力实验可定量反映毒性效应;核心成果:发现Tau的相分离态可作为AD早期病理转化的关键Biomarker,Aβ40可通过调控Tau的相分离影响其毒性;创新性在于首次揭示了Aβ40对Tau相分离态的双阶段调控机制,为AD的早期诊断和干预提供了新的Biomarker;统计学结果显示,多个实验的样本量n≥3,P值均<0.05,具有统计学显著性。