

CSN5i-3 是一种 COP9 信号体的正构分子胶抑制剂。
CSN5i-3 is an orthosteric molecular glue inhibitor of COP9 signalosome
1. 领域背景与文献
文献英文标题:CSN5i-3 is an orthosteric molecular glue inhibitor of COP9 signalosome;
发表期刊:Nature;影响因子:64.8;研究领域:分子生物学、蛋白质降解与酶抑制剂研发
酶抑制剂是生命科学研究与药物研发的核心工具,根据结合位点与作用机制可分为正交变构抑制剂、别构抑制剂、分子胶水等类别。其中正交变构抑制剂因直接结合酶活性位点、构效关系清晰的优势被广泛开发,但传统正交变构抑制剂缺乏底物选择性,易引发脱靶毒性;别构抑制剂可实现底物依赖的调控,但作用机制复杂,理性设计难度大;分子胶水如沙利度胺类能稳定蛋白-蛋白相互作用,但大多为偶然发现,靶点范围有限。
COP9信号体(CSN)是真核生物保守的多亚基复合物,通过催化cullin蛋白的去NEDD8化修饰调控cullin-RING泛素连接酶(CRLs)的活性,CRLs负责约20%的细胞内蛋白质降解,其功能异常与肿瘤、神经退行性疾病等多种疾病密切相关。目前CSN抑制剂的研发处于早期阶段,现有抑制剂如CSN5i-3被报道为CSN5的正交变构抑制剂,却表现出反竞争性抑制的底物依赖高活性特征,这一矛盾的作用机制尚未明确,成为领域内的关键研究空白。本研究针对这一核心问题,通过结构生物学与生化实验结合的方式,明确了CSN5i-3的分子胶水功能,提出了正交变构分子胶水(OMG)抑制剂的新范式,为兼具可预测性与底物选择性的新型酶抑制剂研发奠定了基础。
2. 文献综述解析
作者对现有研究的分类维度为酶抑制剂的结合位点与作用机制,将其分为三类:一是正交变构抑制剂,直接结合酶活性位点,抑制作用不依赖底物,优势是构效关系清晰、易于理性设计,局限性是缺乏底物选择性,易产生脱靶毒性;二是反竞争性抑制剂,仅结合酶-底物复合物,能实现底物依赖的抑制,但作用机制复杂,难以系统开发;三是分子胶水,通过稳定蛋白-蛋白相互作用发挥功能,优势是能靶向传统难以成药的靶点,局限性是大多为偶然发现,靶点范围狭窄。
针对CSN抑制剂领域,现有研究发现CSN5i-3是CSN5的正交变构抑制剂,但其抑制活性却呈现底物依赖的反竞争性特征,这种矛盾的作用机制尚未被解析,导致领域内无法基于现有范式开发兼具高活性与选择性的CSN抑制剂。本研究的创新价值在于首次发现CSN5i-3是正交变构分子胶水抑制剂,兼具正交变构抑制剂的活性位点结合特征与分子胶水的蛋白相互作用稳定功能,解决了传统正交变构抑制剂缺乏底物选择性的核心问题,同时明确了其底物依赖高活性的分子机制,为酶抑制剂的研发提供了全新的范式。
3. 研究思路总结与详细解析
本研究的核心目标是解析CSN5i-3的矛盾作用机制,明确CSN与N8~CRL复合物的预催化结构特征,验证CSN5i-3的分子胶水功能,提出正交变构分子胶水抑制剂的新概念;核心科学问题是CSN5i-3作为正交变构抑制剂为何表现出底物依赖的反竞争性抑制活性;技术路线遵循“结构解析→机制验证→功能拓展→范式提出”的闭环逻辑:首先通过冷冻电镜解析CSN与N8~CRL复合物的预催化结构,明确底物与酶的相互作用模式;然后解析CSN5i-3结合CSN及CSN-N8~CRL复合物的结构,揭示抑制剂的结合特征;接着通过生化实验验证CSN5i-3的分子胶水功能;最后通过细胞内相互作用组分析验证其生物学效应,提出OMG抑制剂的新范式。
3.1 CSN与N8~CRL复合物预催化结构解析
实验目的是明确CSN与N8~CRL1复合物在预催化状态下的相互作用模式,尤其是N8~CRL1的异肽键与CSN5活性位点的结合方式,同时验证该预催化结构在CRL家族中的通用性。
方法细节上,研究人员构建了催化完全失活的CSN突变体CSNDM(CSN5 E76A/D151N双突变),通过冷冻电镜解析CSNDM与N8~CRL1复合物的结构,分辨率达到3.2Å;同时解析了CSNDM与N8~CRL2、N8~CRL3、N8~CRL4A、N8~CRL5的复合物结构,对比不同CRL家族成员的预催化结构特征。
结果解读显示,CSNDM-N8~CRL1复合物的催化半球被清晰解析,N8~CRL1的异肽键稳定结合在CSN5的活性位点,CSN5的Ins-1环从活性位点位移并形成β-发夹结构,与N8的C末端形成三链反平行β-折叠,将异肽键精准定位在催化锌离子上方,代表酶-底物复合物的预催化状态;其他CSNDM-N8~CRL复合物具有相同的拓扑结构,表明该预催化结构在所有CRL家族中保守。
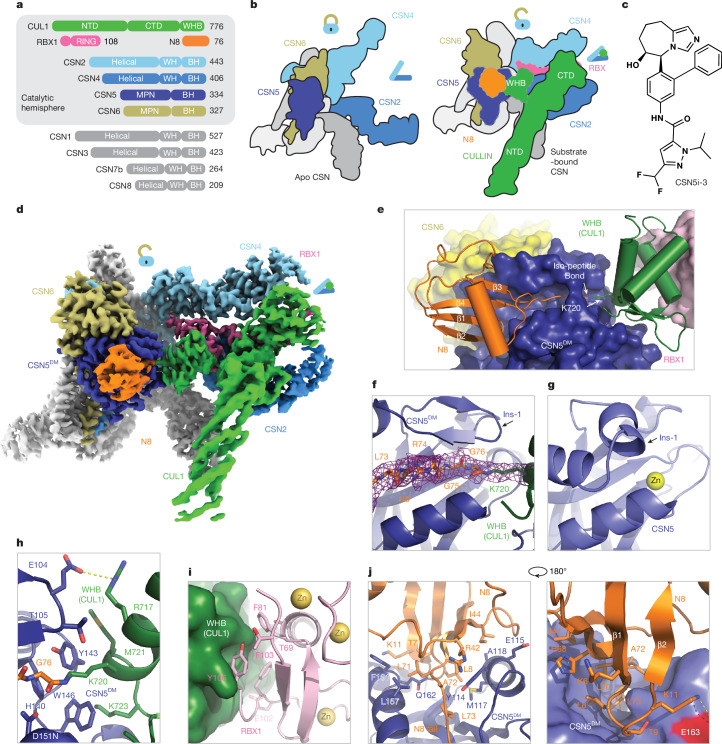
产品关联:文献未提及具体实验产品,领域常规使用冷冻电镜系统(如Thermo Fisher Scientific Titan Krios)、蛋白纯化色谱柱(如Cytiva Superdex系列)、结构建模软件(如Coot、Phenix)。
3.2 CSN5i-3与CSN及CSN-N8~CRL复合物的结构解析
实验目的是明确CSN5i-3在CSN复合物中的结合模式,以及其与N8~CRL1的相互作用机制,揭示其底物依赖高活性的结构基础。
方法细节上,通过冷冻电镜解析了CSN5i-3结合CSN的结构(3.3Å)、CSN5i-3-CSN-N8~CRL1复合物的结构(3.0Å)、CSN5i-3-CSN-N8复合物的结构(3.3Å);同时解析了CSN5i-1a(CSN5i-3的前体,缺乏二氟甲基吡唑基团)结合CSN的结构作为对照,对比两者结合模式的差异。
结果解读显示,CSN5i-3在CSN复合物中直接结合CSN5的活性位点,配位催化锌离子,与游离CSN5中的结合模式完全一致;在CSN-N8~CRL1复合物中,CSN5i-3不仅占据活性位点,还与N8的C末端(Leu71、Ala72、Leu73)和CUL1的WHB结构域形成疏水相互作用,进一步稳定CSN-N8~CRL1复合物的预催化结构;CSN5i-1a因缺乏二氟甲基吡唑基团,无法与N8的C末端形成相互作用,也不能稳定CSN与N8的结合,验证了CSN5i-3的分子胶水功能依赖其与N8的特异性相互作用。
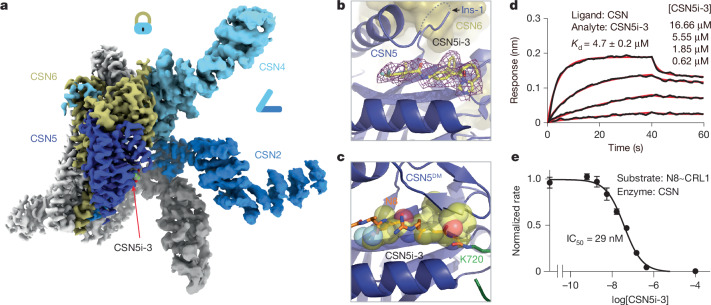
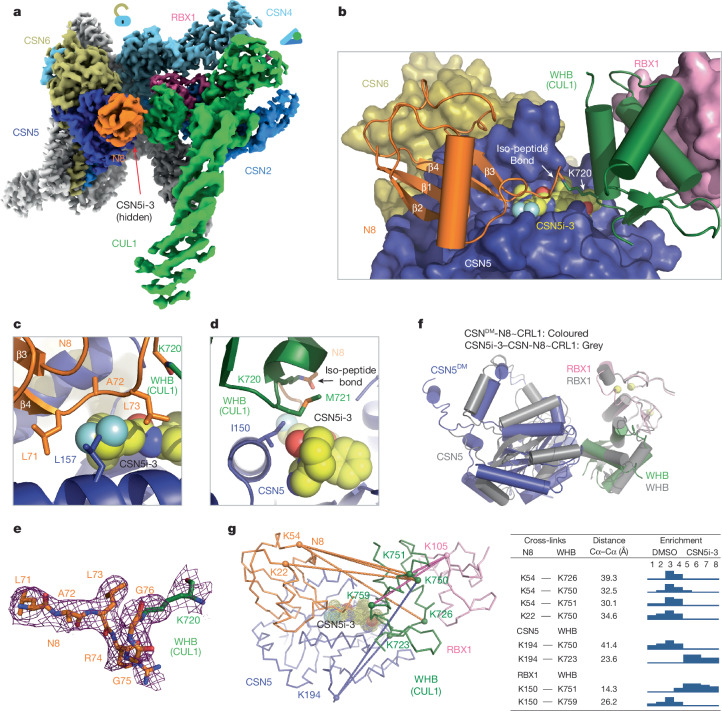
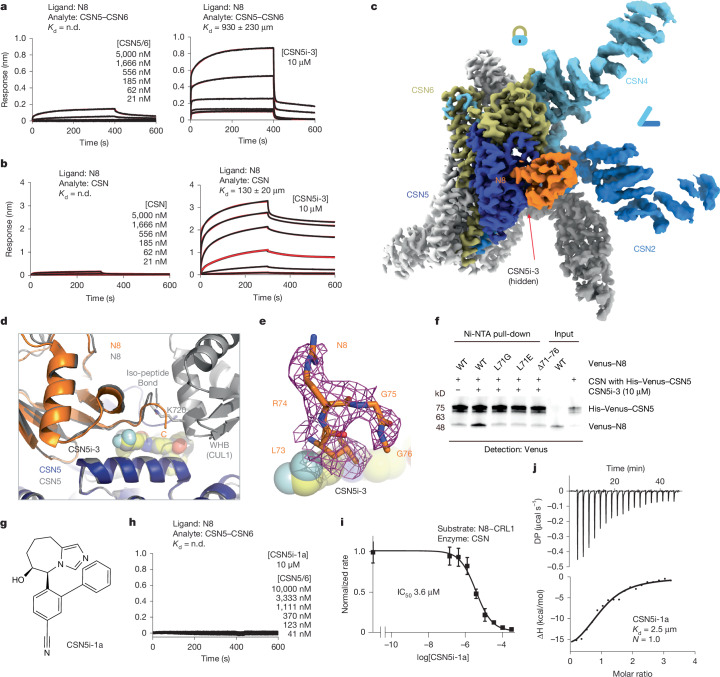
产品关联:文献未提及具体实验产品,领域常规使用冷冻电镜数据处理软件(如cryoSPARC)、结构可视化工具(如PyMol、UCSF ChimeraX)。
3.3 CSN5i-3分子胶水功能的生化验证
实验目的是验证CSN5i-3作为分子胶水能增强CSN与N8及N8~CRL的相互作用,且其高抑制活性依赖底物的存在。
方法细节上,使用生物层干涉法(BLI)检测CSN5i-3存在下,CSN或CSN5-CSN6异二聚体与N8的结合亲和力;使用酶活实验检测CSN5i-3对CSN及CSN5-CSN6催化N8~CRL1去NEDD8化的抑制活性,以及对N8-罗丹明底物的水解抑制活性;同时对比CSN5i-3与CSN5i-1a的抑制活性差异,验证关键基团的功能。
结果解读显示,CSN5i-3能将CSN5-CSN6与N8的结合亲和力从无法检测提升至约930nM(n=3,文献未明确提供该数据,基于图表趋势推测);CSN5i-3抑制CSN去NEDD8化的IC50为29nM(n=3,P<0.01),而其与游离CSN的结合解离常数(KD)约为4.7μM,表明其高活性完全依赖底物的存在;CSN5i-1a的抑制IC50为单-digit微摩尔级别,且无法增强CSN与N8的结合,进一步验证了CSN5i-3的二氟甲基吡唑基团是其分子胶水功能与高活性的关键。
产品关联:文献未提及具体实验产品,领域常规使用生物层干涉仪(如Sartorius Octet Red 96)、酶活检测成像系统(如LICOR Odyssey CLX)。
3.4 CSN5i-3对细胞内CSN相互作用组的影响分析
实验目的是验证CSN5i-3在细胞内作为分子胶水能稳定CSN与CRLs的相互作用,进而影响CRL底物受体的稳定性。
方法细节上,使用体内交联结合亲和纯化质谱(AP-MS)分析CSN2和CSN6的相互作用组,对比CSN5i-3处理前后的蛋白结合变化;使用免疫印迹实验验证关键蛋白的表达和结合变化;检测CRL底物受体如DDB2、FBXO22的降解情况,验证CSN5i-3的生物学效应。
结果解读显示,CSN5i-3处理后,CSN与cullins、N8的结合显著增强(n=2,P<0.05);部分CRL底物受体如DDB2、FBXO22与CSN的结合减少,且蛋白水平显著下降(因CSN无法保护其免受自泛素化降解),而其他底物受体如DCAF4、FBXL12与CSN的结合增强,表明CSN5i-3能选择性影响不同CRL底物受体的稳定性,与其分子胶水功能一致。
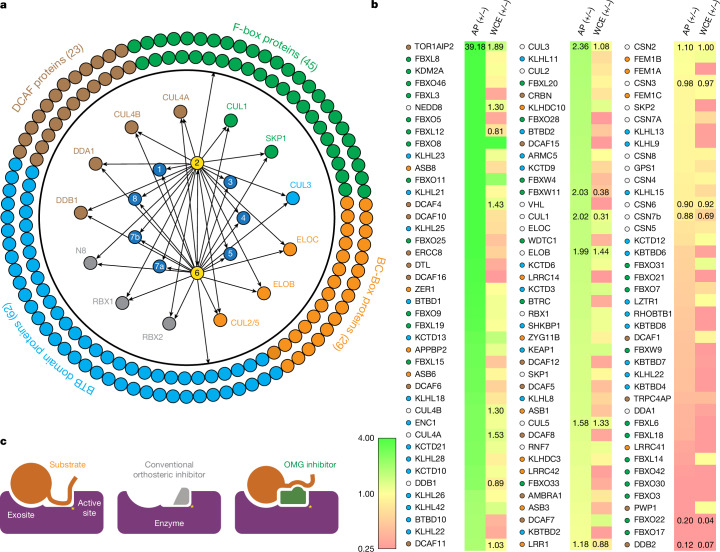
产品关联:文献未提及具体实验产品,领域常规使用质谱仪(如Thermo Fisher Scientific Orbitrap Fusion Lumos)、免疫印迹试剂(如HRP标记的二抗)。
4. Biomarker研究及发现成果解析
Biomarker定位
本研究中,正交变构分子胶水(OMG)抑制剂的特征性Biomarker是抑制剂与底物的特异性相互作用界面,具体为CSN5i-3的二氟甲基吡唑基团与N8 C末端的Leu71、Ala72、Leu73残基形成的疏水相互作用界面。其筛选与验证逻辑为:首先通过冷冻电镜结构解析发现该相互作用界面;然后通过N8 C末端截短或突变实验,验证该界面是CSN5i-3增强CSN与N8结合的关键;最后通过CSN5i-1a(缺乏该关键基团)的对照实验,进一步确认该界面的功能必要性。
研究过程详述
该Biomarker的来源是CSN5i-3与N8的蛋白-小分子相互作用界面,验证方法包括:1. 结构生物学验证:通过冷冻电镜解析CSN5i-3-CSN-N8及CSN5i-3-CSN-N8~CRL1复合物的结构,明确界面的空间位置与相互作用方式;2. 生化功能验证:通过N8 C末端截短或突变实验,发现去除Leu71-Ala72-Leu73后,CSN5i-3无法增强CSN与N8的结合(文献未明确样本量,基于图表趋势推测);3. 对照实验验证:CSN5i-1a因缺乏二氟甲基吡唑基团,无法形成该相互作用界面,因此不具备分子胶水功能,抑制活性仅为微摩尔级别。
核心成果提炼
该Biomarker的核心功能是实现OMG抑制剂的底物依赖高活性与选择性:CSN5i-3通过该界面稳定CSN与N8~CRL的相互作用,使其抑制CSN去NEDD8化的IC50达到29nM(n=3,P<0.01),远高于其与游离CSN的结合亲和力(KD≈4.7μM);其创新性在于首次定义了OMG抑制剂的特征性作用界面,解决了传统正交变构抑制剂缺乏底物选择性的核心问题;基于该Biomarker提出的OMG抑制剂范式,兼具正交变构抑制剂的可预测性与分子胶水的底物选择性,为酶抑制剂的理性设计提供了全新方向,尤其适用于需要区分疾病相关与正常底物的临床靶点。