

细胞器特异性硫化氢代谢调控氧化还原稳态,从而调节植物自噬和镉胁迫耐受性。
Organelle-specific hydrogen sulfide metabolism governs redox homeostasis to regulate plant autophagy and cadmium stress resilience
1. 领域背景与文献
文献英文标题:Organelle-specific hydrogen sulfide metabolism governs redox homeostasis to regulate plant autophagy and cadmium stress resilience。
发表期刊:未公开;影响因子:未公开;研究领域:植物生理学,硫化氢信号转导与非生物胁迫响应。
硫化氢早期被认为是代谢副产物或环境毒物,近二十年的研究转变了该认知,将其确定为与一氧化氮、一氧化碳并列的重要气体信号分子,可调控生物体多种细胞信号过程。领域共识:在植物中,硫化氢参与调控从种子萌发、根系结构建成、气孔运动到病原抗性、非生物胁迫应答等多个生理过程,其信号功能主要通过蛋白质过硫化修饰实现,该翻译后修饰将蛋白质半胱氨酸巯基转换为过硫化基团,进而调控靶蛋白的活性、稳定性与亚细胞定位。
现有研究已经证实硫化氢对自噬发挥负调控作用,正常生长条件下,高浓度硫化氢可抑制自噬过度激活,细胞质中l-半胱氨酸脱巯基酶DES1来源的硫化氢功能已经得到较为清晰的解析,但是,叶绿体、线粒体等细胞器特异性的硫化氢池对自噬的全局调控作用目前仍不明确。硫化氢信号与活性氧尤其是过氧化氢信号存在密切交叉对话,过氧化氢诱导半胱氨酸发生亚磺酰化,后续硫化氢介导过硫化修饰形成保护性氧化还原转换,可避免蛋白质过度氧化损伤。镉等重金属胁迫会诱导活性氧爆发并激活自噬,已有研究发现植物镉胁迫下会诱导内源硫化氢产生,外源补充硫化氢可提高镉抗性,但不同细胞器特异性硫化氢浓度如何调控自噬机器、缓解氧化损伤的分子机制仍缺乏系统解析,填补该研究空白可为植物抗逆遗传改良提供新的理论依据。
2. 文献综述解析
作者对现有研究的梳理围绕硫化氢信号的亚细胞区室化功能展开,首先肯定了现有研究对硫化氢气体信号分子身份的确定,明确了硫化氢过硫化修饰的分子机制,证实了细胞质硫化氢对自噬的负调控作用,也认可了外源硫化氢提高植物镉抗性的结论,指出现有研究技术手段如外源供体处理可明确硫化氢的整体功能,但存在明显局限性。现有研究默认硫化氢通过自由扩散实现信号传递,忽略了植物细胞内存在区室化离散硫化氢池的现实,没有关注不同细胞器硫化氢代谢的特异性功能,其次,虽然已经明确硫化氢和过氧化氢信号存在交叉,但是镉胁迫下,不同细胞器硫化氢代谢如何协调蛋白质亚磺酰化和过硫化修饰的动态转换,缺乏系统的遗传实验证据,此外,不同亚细胞来源硫化氢对镉诱导自噬的特异性调控规律也没有得到解析,这些未解决的问题构成了本研究的核心创新方向。本研究的创新价值在于,首次利用覆盖不同细胞器硫化氢生成与消耗环节的一系列缺失突变体,系统解析了细胞器特异性硫化氢代谢在氧化还原稳态维持、自噬调控和镉胁迫抗性中的作用,明确了气体信号分子空间分区调控的逻辑,填补了该领域的研究空白,为植物抗逆育种提供了新的思路。
3. 研究思路总结与详细解析
本研究的整体研究目标是解析细胞器特异性硫化氢代谢如何调控镉胁迫下的自噬与氧化还原转换,核心科学问题是区室化硫化氢池如何协调氧化还原信号与自噬应答,最终提高植物镉胁迫抗性。技术路线遵循遗传材料表征→基础表型分析→胁迫应答解析→机制验证的逻辑闭环:首先对靶向不同细胞器硫化氢代谢的缺失突变体进行基础生理生化表型表征,随后分析正常生长条件下不同突变体的自噬活性,接着分析镉胁迫下不同突变体的核心代谢物含量变化,进一步检测镉胁迫下蛋白质过硫化和亚磺酰化修饰的动态变化,最后解析不同突变体镉胁迫下的自噬应答模式,明确不同细胞器硫化氢代谢的功能。
3.1 拟南芥硫化氢代谢突变体的生理与生化表征
实验目的:明确不同细胞器硫化氢代谢基因突变后,植物基础生长和核心代谢物含量的变化特征。
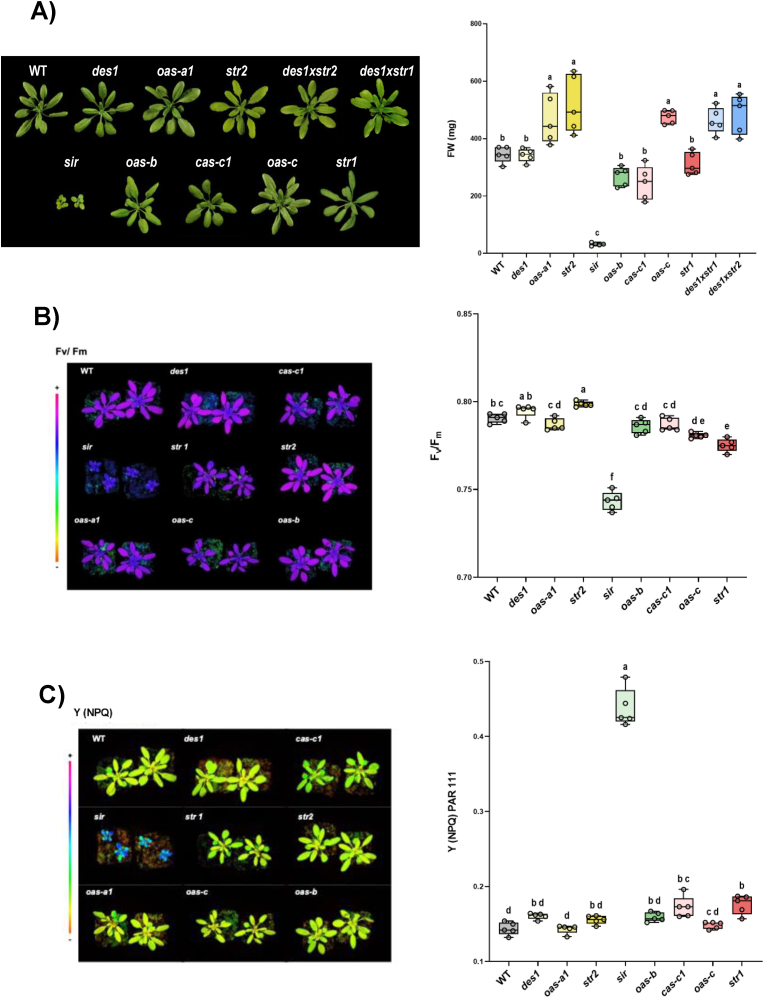
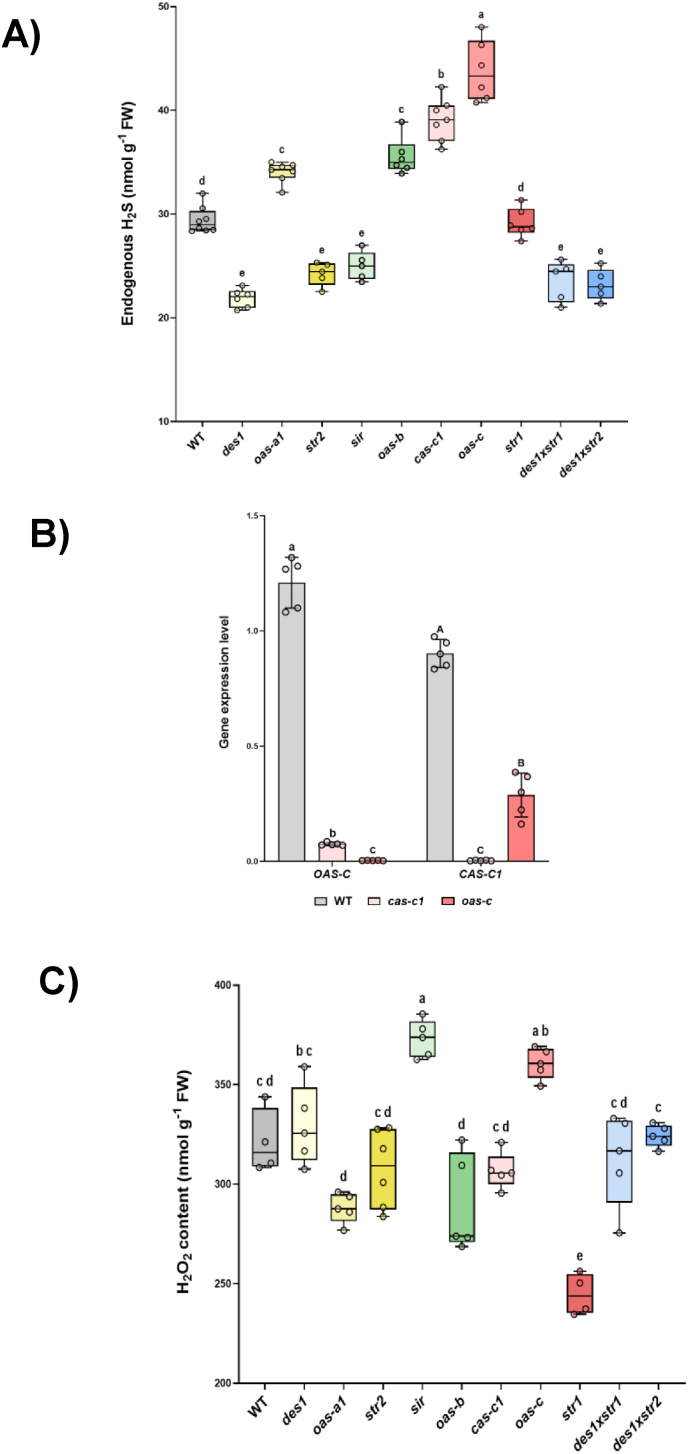
方法细节:以拟南芥哥伦比亚生态型野生型为对照,选取的突变体包括靶向硫化氢生成的细胞质des1、叶绿体sir、线粒体cas-c1、线粒体str1、细胞质str2以及对应的双突变体,和靶向硫化氢消耗的细胞质oas-a1、叶绿体oas-b、线粒体oas-c。所有材料在土壤正常条件下生长25天,依次进行表型观察、鲜重统计,利用叶绿素荧光成像分析光合性能,超高效液相色谱串联质谱测定内源硫化氢含量,安普红法测定过氧化氢含量,实时荧光定量聚合酶链反应分析目标基因表达。
结果解读:表型与光合分析显示,只有sir突变体植株显著变小,鲜重降低,最大光化学效率显著降低(n=5,P<0.05),非光化学淬灭显著升高,说明叶绿体亚硫酸盐还原酶缺失会严重影响植物生长和光合性能。硫化氢含量测定结果显示,des1、sir、str2以及des1xstr1、des1xstr2双突变体硫化氢含量显著低于野生型(n>5,P<0.05),oas-a1、oas-b、oas-c以及cas-c1突变体硫化氢含量显著高于野生型,进一步分析发现cas-c1突变体中OAS-C基因表达显著下调,解释了其硫化氢积累的表型,证实线粒体硫化氢水平受到合成与消耗的动态平衡调控。过氧化氢含量测定发现,仅sir突变体和oas-c突变体过氧化氢含量显著升高,str1突变体过氧化氢含量显著低于野生型,说明过氧化氢积累并不完全由硫化氢代谢紊乱的亚细胞位置决定,而是细胞整体代谢应答的综合结果。
产品关联:文献未提及具体实验产品,领域常规使用植物分子生物学相关试剂与仪器。
3.2 正常生理条件下硫化氢代谢突变体的自噬活性分析
实验目的:明确不同细胞器硫化氢代谢紊乱对基础自噬活性的影响规律。
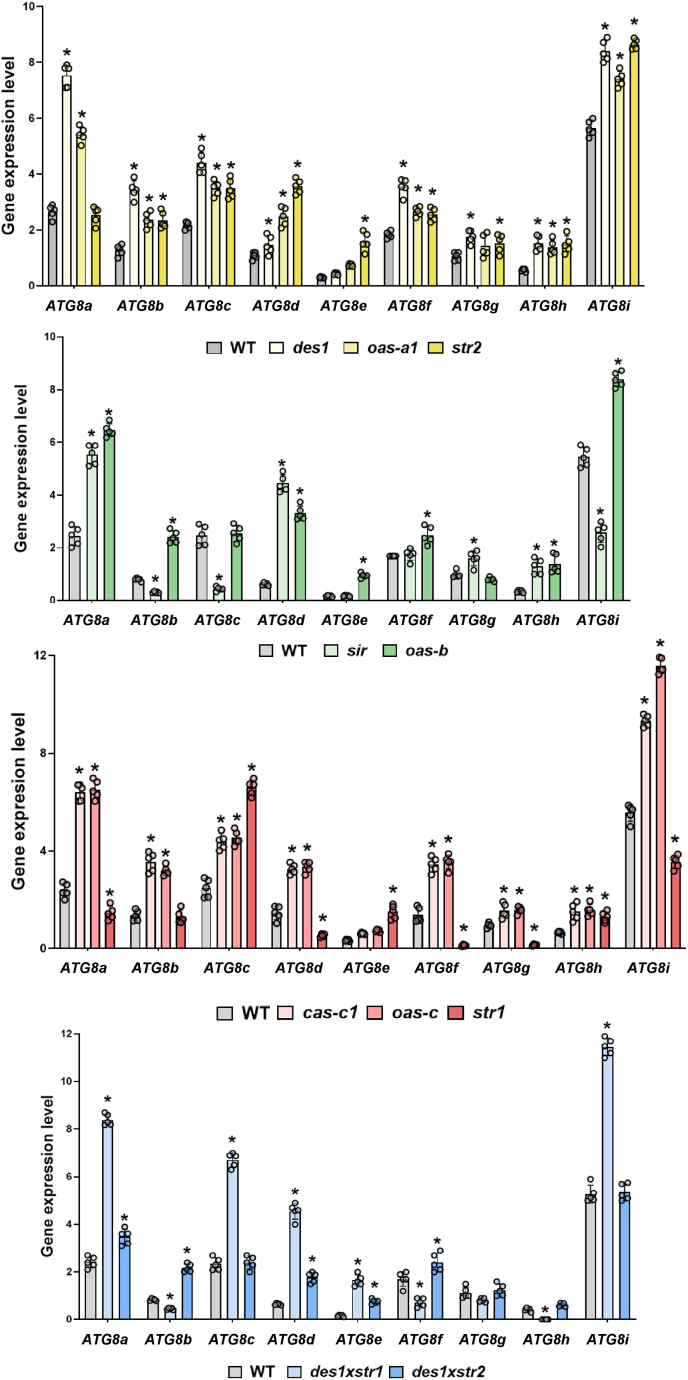
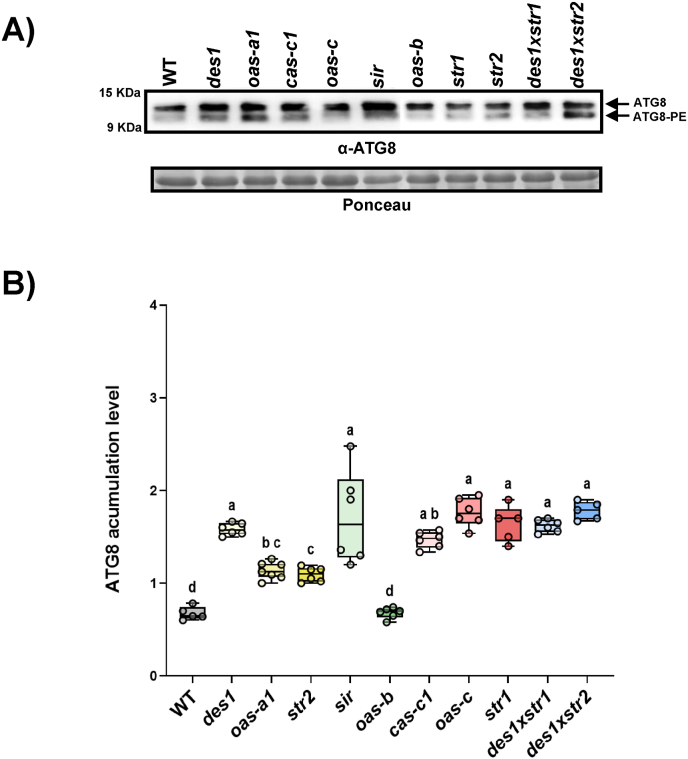
方法细节:对正常生长25天的野生型和各突变体,采用实时逆转录聚合酶链反应检测9个ATG8基因的转录水平,采用免疫印迹技术检测非脂化和脂化ATG8蛋白的积累水平。
结果解读:转录水平分析显示,大多数硫化氢突变体中ATG8家族基因转录水平显著高于野生型(n>5,P<0.05),说明无论硫化氢缺乏还是过量,只要硫化氢浓度偏离正常生理阈值,都会激活细胞自噬。部分突变体存在例外,sir突变体部分ATG8基因转录下调,str1突变体多个ATG8基因转录下调,该现象可能和细胞器功能紊乱后对自噬的特异性抑制有关。蛋白水平结果和转录水平基本一致,大多数突变体ATG8蛋白积累显著高于野生型(n≥5,P<0.05);叶绿体硫化氢缺乏的sir突变体ATG8积累升高,而叶绿体硫化氢积累的oas-b突变体ATG8水平和野生型接近,说明叶绿体自噬调控可能发生在转录后水平,对硫化氢缺乏更敏感。
产品关联:实验所用关键产品:Agrisera的ATG8抗体,文献未标注货号。
3.3 镉胁迫下硫化氢代谢突变体的生理应答分析
实验目的:明确不同细胞器硫化氢代谢在镉胁迫应答中的功能。
方法细节:首先对野生型进行镉处理时间梯度实验,确定处理3天为最佳研究时间点,随后对野生型和各突变体进行200μM氯化镉处理3天,依次检测相关基因表达、硫化氢含量和过氧化氢含量。
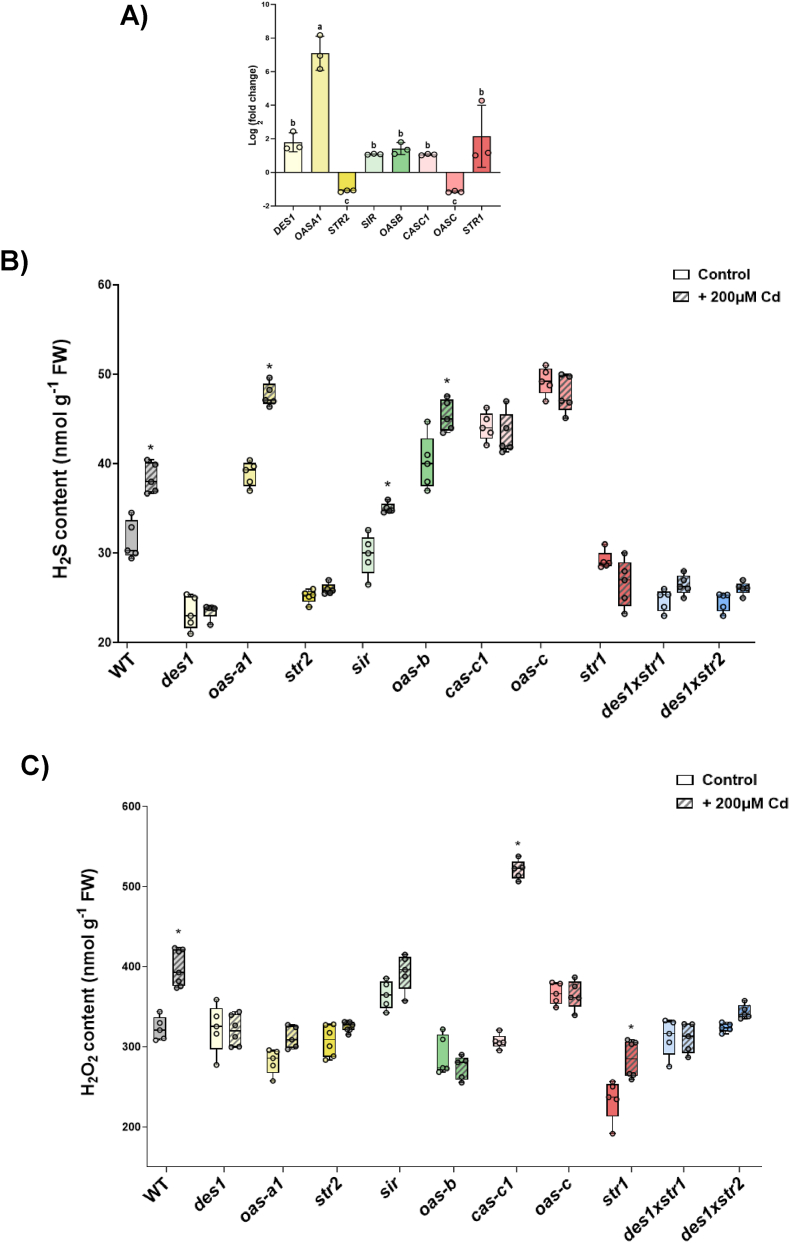
结果解读:基因表达分析显示,镉处理3天后,只有细胞质OAS-A1基因表达显著升高(n=3,P<0.05),说明植物镉胁迫下优先诱导细胞质半胱氨酸合成,满足植物螯合肽和谷胱甘肽合成对半胱氨酸的需求,实现镉的螯合解毒。硫化氢含量测定显示,野生型镉处理后硫化氢含量显著升高(n=5,P<0.05),大部分突变体硫化氢含量没有显著变化,仅oas-a1、oas-b和sir突变体镉处理后硫化氢含量显著升高,说明细胞硫化氢水平依赖于合成和消耗的动态平衡,细胞质和叶绿体是镉胁迫下硫化氢合成的主要活性位点。过氧化氢含量测定显示,野生型镉处理后过氧化氢含量显著升高(n=5,P<0.05),而des1和str2突变体无法有效诱导过氧化氢积累,说明细胞质硫化氢生成是镉胁迫下活性氧信号激活所必需的。线粒体突变体中,cas-c1突变体镉处理后过氧化氢大量积累,而str1突变体过氧化氢升高幅度较小,cas-c1的过氧化氢积累是氰化物积累抑制线粒体呼吸链、增加电子泄漏导致,但其光合等生理表型和野生型没有差异,推测替代氧化酶途径激活补偿了呼吸链功能。
产品关联:文献未提及具体实验产品,领域常规使用抗氧化检测相关试剂。
3.4 镉胁迫下蛋白质过硫化与亚磺酰化的交叉对话分析
实验目的:验证镉胁迫下硫化氢和过氧化氢通过调控蛋白质过硫化与亚磺酰化发挥保护作用的机制。
方法细节:利用二甲酮转换法检测总蛋白质过硫化水平,利用DCP-Bio1标记结合荧光检测总蛋白质亚磺酰化水平,对比野生型和各突变体镉处理前后的修饰水平变化。
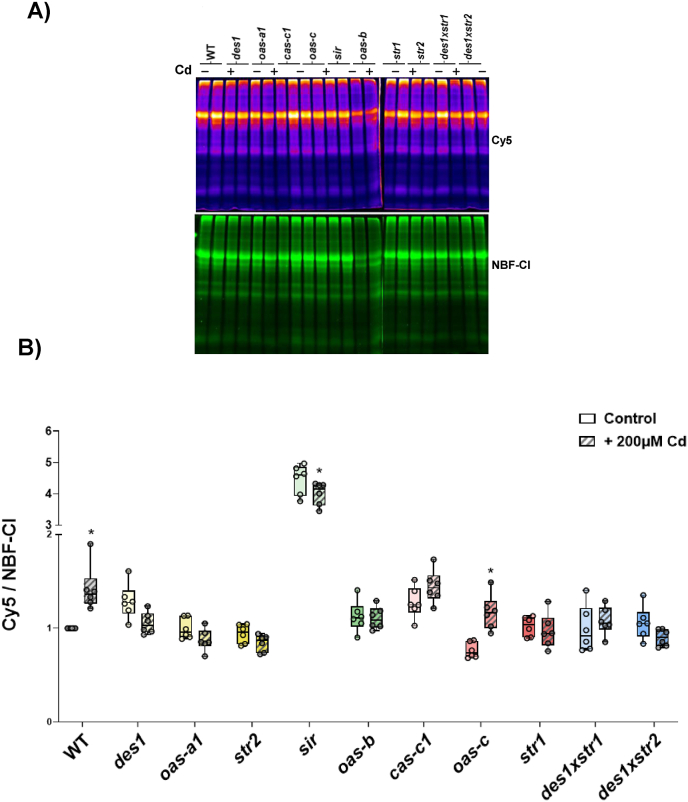
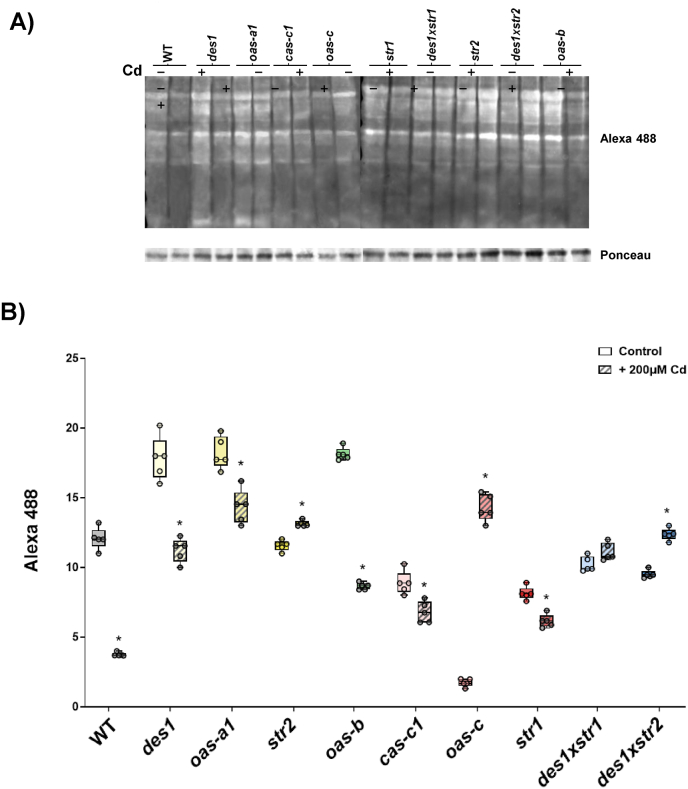
结果解读:正常条件下,只有sir突变体总过硫化水平显著升高,其他突变体和野生型没有显著差异,总过硫化水平和总硫化氢含量没有明显相关性。镉处理后,野生型总过硫化水平显著升高(n=6,P<0.05),大部分突变体过硫化水平没有显著变化,仅sir突变体略有降低,oas-c突变体略有升高,说明只有完整的亚细胞硫化氢合成网络才能支持镉诱导的过硫化升高。亚磺酰化检测显示,正常条件下不同突变体亚磺酰化水平变异较大,des1、oas-a1、oas-b突变体亚磺酰化水平显著升高,线粒体cas-c1、str1、oas-c突变体亚磺酰化水平显著降低。镉处理后,野生型亚磺酰化水平显著降低(n=5,P<0.05),不同突变体响应模式不同,des1、oas-a1、oas-b、cas-c1、str1亚磺酰化水平降低,str2、oas-c、des1xstr2亚磺酰化水平升高。整体来看,野生型镉胁迫下活性氧积累诱导半胱氨酸亚磺酰化,随后硫化氢介导过硫化修饰,降低亚磺酰化水平,避免蛋白质过度氧化,这种保护性转换依赖完整的亚细胞硫化氢代谢网络。
产品关联:文献未提及具体实验产品,领域常规使用蛋白质翻译后修饰检测相关试剂。
3.5 镉胁迫下硫化氢代谢突变体的自噬应答分析
实验目的:明确不同细胞器硫化氢代谢对镉诱导自噬的调控作用。
方法细节:对镉处理3天的野生型和各突变体,提取总蛋白,免疫印迹检测ATG8蛋白的积累,量化对比处理前后的差异。
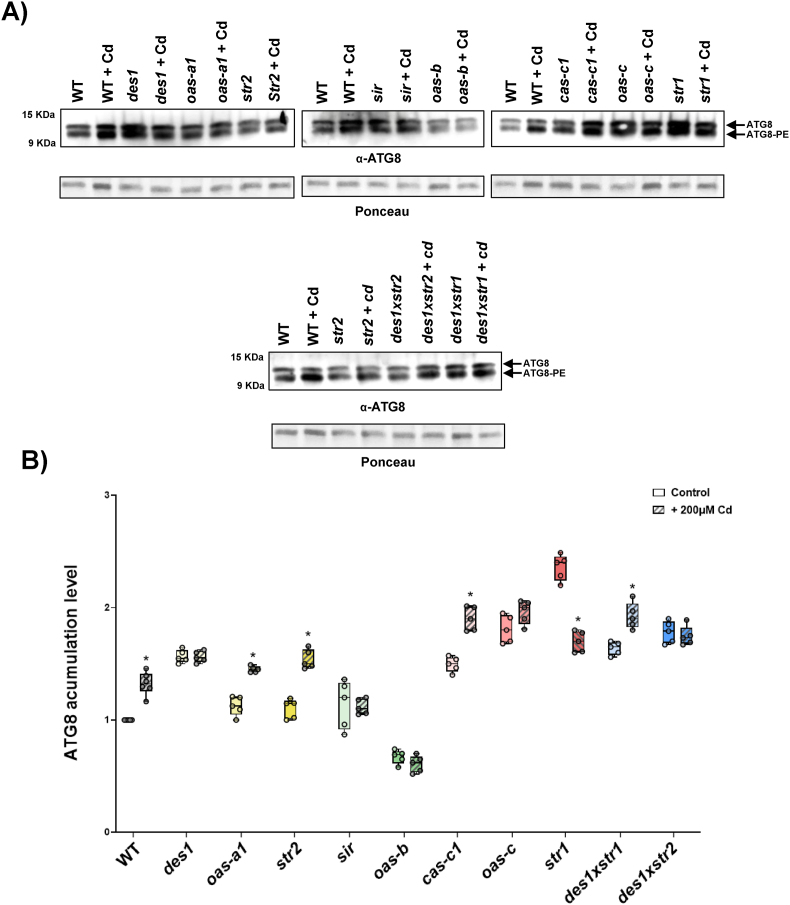
结果解读:野生型镉处理后ATG8积累显著升高(n=5,P<0.05),自噬应答模式由突变基因的亚细胞定位决定,和突变影响硫化氢生成还是消耗无关。细胞质突变体中,des1突变体正常条件下自噬已经处于高激活状态,镉处理无法进一步诱导自噬,而oas-a1和str2突变体自噬诱导模式和野生型一致。线粒体突变体中,cas-c1突变体ATG8表达显著升高,和其过氧化氢大量爆发的表型一致,而str1突变体镉处理后ATG8水平降低,具体机制还需要进一步研究。叶绿体突变体sir和oas-b的ATG8水平在镉处理后没有显著变化,说明叶绿体不是镉诱导自噬的主要调控位点,调控核心发生在细胞质和线粒体。
产品关联:实验所用关键产品:Agrisera的ATG8抗体,文献未标注货号。
4. Biomarker 研究及发现成果
本研究中用于指示自噬激活的生物标志物为自噬相关蛋白ATG8,包含非脂化ATG8与脂化ATG8-磷脂酰乙醇胺两种形式,筛选验证逻辑为:首先在转录水平分析ATG8家族基因在不同硫化氢代谢突变体中的表达差异,随后通过免疫印迹检测蛋白积累与脂化水平,分别在正常生理条件和镉胁迫条件下验证不同硫化氢代谢状态对自噬的调控作用。
该生物标志物的来源为拟南芥叶片总蛋白,验证方法为实时逆转录聚合酶链反应检测转录水平,免疫印迹结合聚丙烯酰胺凝胶电泳分离不同形式的ATG8蛋白,利用ATG8特异性抗体实现特异性检测。验证结果显示,正常条件下,大多数硫化氢代谢突变体中ATG8蛋白水平显著高于野生型(n≥5,P<0.05),镉胁迫下野生型ATG8水平显著升高(n=5,P<0.05),des1突变体基础ATG8水平已经升高,镉处理后无进一步显著变化。
核心成果提炼:ATG8作为自噬激活的经典标志物,本研究利用它明确了细胞器特异性硫化氢代谢对自噬的负调控作用,证实细胞质硫化氢是镉胁迫下自噬激活的主要调控因子,硫化氢稳态失衡无论硫化氢缺乏还是过量都会导致基础自噬激活(n>5,P<0.05),镉胁迫下自噬应答模式由硫化氢代谢紊乱的亚细胞位置决定,叶绿体不参与镉诱导自噬的主要调控。本研究首次系统明确了区室化硫化氢代谢对自噬的调控规律,证实不同细胞器硫化氢代谢的空间协调是维持氧化还原稳态和自噬平衡、提高镉胁迫抗性的核心,为培育抗镉胁迫作物提供了新的靶点,对保障重金属污染农田的作物生产安全具有重要理论价值。