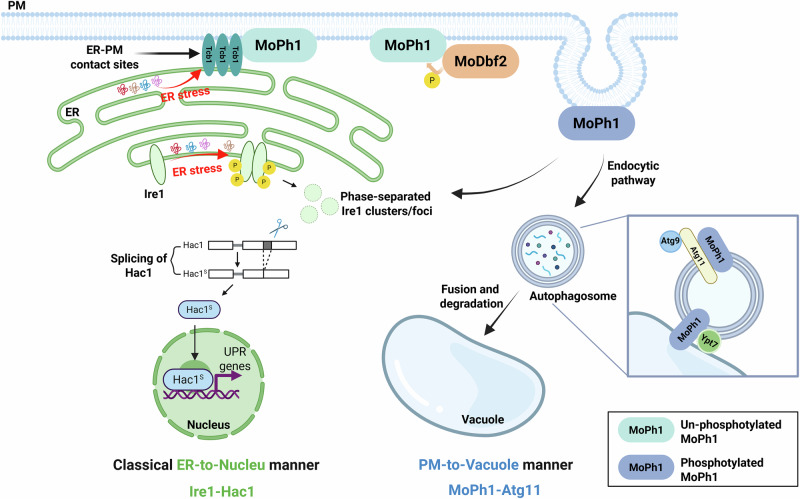
稻瘟病菌 MoPh1 感知内质网应激,并通过质膜到液泡的途径促进适应性反应。
Magnaporthe oryzae MoPh1 perceives ER stress and promotes adaptive responses via a plasma membrane-to-vacuole pathway
1. 领域背景与文献
文献英文标题:Magnaporthe oryzae MoPh1 perceives ER stress and promotes adaptive responses via a plasma membrane-to-vacuole pathway;
发表期刊:Nature Communications;影响因子:17.6(2023年);研究领域:真菌分子生物学、植物病理学(稻瘟病)、内质网应激与自噬调控
内质网是真核细胞中负责脂质和蛋白质生物合成的重要细胞器,当蛋白折叠负荷过载或细胞代谢发生扰动时会引发内质网应激,进而激活未折叠蛋白反应(UPR)以恢复细胞稳态。经典内质网应激响应通路以内质网膜传感器Ire1为核心,通过寡聚化、自磷酸化剪切Hac1 mRNA,调控下游UPR靶基因表达,该通路在哺乳动物、植物、真菌中高度保守。但目前研究多聚焦于内质网膜自身的应激感知,质膜作为细胞对外界信号感知的核心位点,其在内部应激(如内质网应激)感知与响应中的作用尚未被充分揭示。
稻瘟病菌(Magnaporthe oryzae)是引起水稻稻瘟病的毁灭性病原真菌,其致病性依赖于附着胞的形成,而附着胞的发育需要质膜蛋白感知水稻表面的疏水信号、蜡质等外界刺激,已鉴定的MoPth11、MoSho1等质膜蛋白可通过激活cAMP和MAPK通路调控附着胞形成与致病性,但这些蛋白在内部应激响应中的功能仍属空白。前期研究发现稻瘟病菌中自噬相关激酶MoAtg1可通过磷酸化MoMkk1激活细胞壁完整性通路以应对内质网应激,但该机制无法完全解释菌株在Ire1缺失后的应激存活能力,提示存在未被发现的非经典内质网应激响应通路。本研究针对质膜在内部应激感知中的缺失环节,鉴定了质膜定位的内质网应激传感器MoPh1,解析其介导的质膜-液泡通路,为生物系统内部应激感知提供新视角。
2. 文献综述解析
作者对领域内现有研究按“经典内质网应激通路、质膜蛋白与病原真菌致病性、自噬与应激响应”三个维度进行分类评述。经典内质网应激通路的研究显示,不同物种中Ire1介导的UPR通路是应对内质网应激的核心机制,其优势在于通路保守性强、调控网络清晰,可快速恢复内质网稳态,但局限性在于仅关注内质网膜自身的应激感知,忽略了质膜等其他亚细胞结构的参与;质膜蛋白在病原真菌中的研究多聚焦于外界信号感知,已明确稻瘟病菌中多个质膜蛋白可调控附着胞形成与致病性,但这些蛋白在内部应激响应中的功能尚未被报道,缺乏质膜与内部应激关联的机制研究;自噬与内质网应激的关联研究中,已证实自噬可参与内质网应激缓解,但质膜蛋白如何调控自噬应对内质网应激的分子机制仍属空白。
通过对比现有研究的未解决问题,本研究的创新价值凸显:首次鉴定到质膜定位的内质网应激传感器MoPh1,突破了经典通路仅关注内质网膜传感器的局限;揭示了一条独立于Ire1通路的质膜-液泡应激响应通路,通过调控自噬缓解内质网应激,完善了生物系统内部应激响应的网络;发现该通路在植物中可能保守,为跨物种应激感知机制研究提供参考;同时为稻瘟病的防治提供了潜在的药物靶点,具有重要的应用价值。
3. 研究思路总结与详细解析
本研究的整体框架为:首先验证内质网应激对稻瘟病菌生存与致病性的必要性→通过定量膜蛋白质组学筛选响应内质网应激的质膜蛋白→鉴定MoPh1的应激响应与致病性功能→解析MoPh1的亚细胞定位动态变化→阐明MoPh1调控自噬的分子机制→解析MoPh1感知应激的信号传递路径(ER-PM接触位点、磷酸化修饰)→明确MoPh1通路与经典Ire1通路的独立性及交互作用→验证该通路在植物中的保守性,形成“功能验证-机制解析-跨物种保守性”的完整研究闭环。
3.1 内质网应激对稻瘟病菌生存与致病性的必要性验证
实验目的:明确内质网应激响应在稻瘟病菌生长、附着胞发育及致病性中的核心作用。
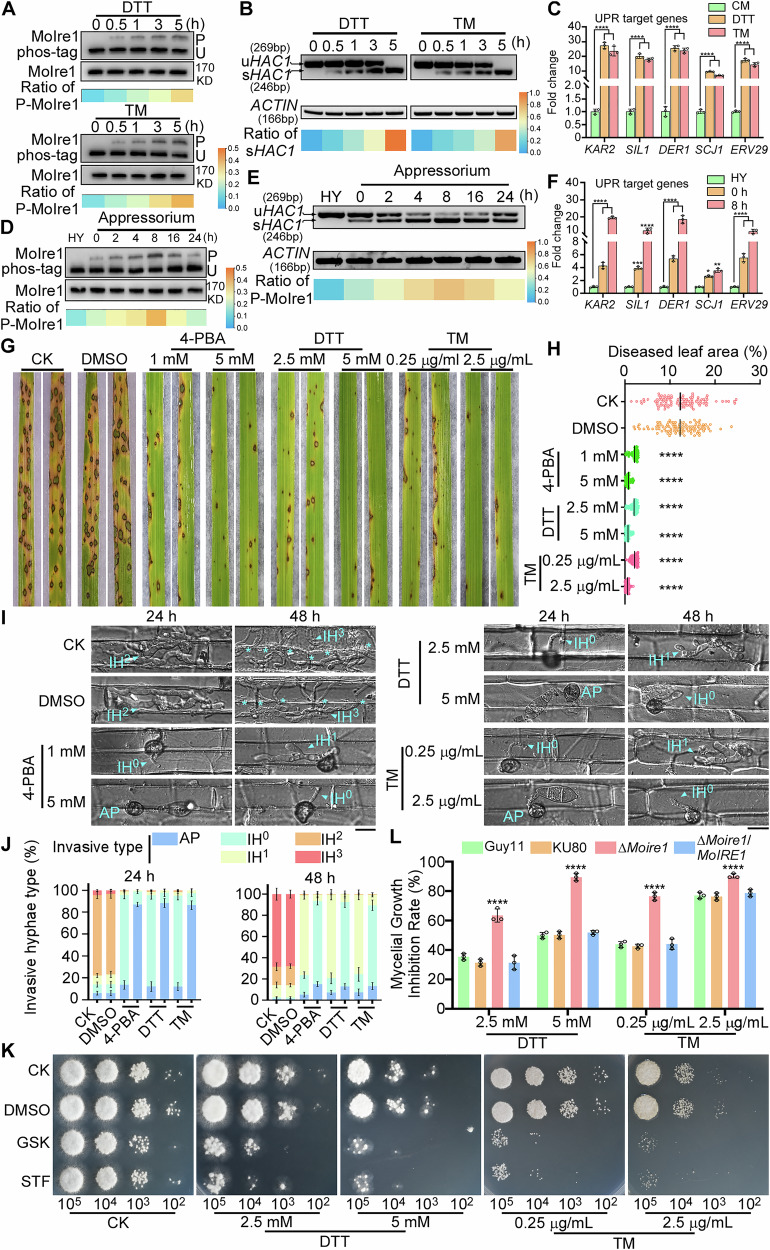
方法细节:采用内质网应激诱导剂二硫苏糖醇(DTT)、衣霉素(TM)处理稻瘟病菌菌丝,检测Ire1磷酸化水平、Hac1剪切比例及UPR靶基因表达;检测附着胞形成不同时间点(0-24h)的内质网应激水平;用应激抑制剂4-苯基丁酸(4-PBA)、诱导剂DTT/TM处理分生孢子,观察孢子萌发、附着胞形成、膨压变化,并通过水稻叶片和叶鞘接种实验检测致病性;用Ire1激酶/RNase双抑制剂GSK2850163、RNase抑制剂STF-083010处理野生型菌株,构建ΔMoire1突变体,检测菌株的应激生存能力与致病性。
结果解读:DTT/TM处理显著提高Ire1磷酸化水平、Hac1剪切比例及UPR靶基因表达(n=9,P<0.05,图1A-C);附着胞形成过程中内质网应激水平呈波动趋势,在8h达到峰值后逐渐下降(n=9,P<0.05,图1D-F);DTT/TM/4-PBA处理均延迟孢子萌发与附着胞形成,降低附着胞膨压,导致水稻叶片病斑面积减少(n=100,P<0.01,图1G-H),叶鞘侵入菌丝扩展受限(n=10,P<0.05,图1I-J);Ire1抑制剂处理与ΔMoire1突变体均显著降低菌株应激生存能力与致病性,但ΔMoire1突变体仍能在应激条件下存活,提示存在非经典内质网应激响应通路(n=3,P<0.01,图1K-L)。
产品关联:实验所用关键产品:DTT、TM、4-PBA、GSK2850163、STF-083010;免疫印迹所用抗体:抗GFP抗体(TransGen Biotech,HT801)、抗FLAG抗体(TransGen Biotech,HT201)等。
3.2 响应内质网应激的质膜蛋白MoPh1的鉴定
实验目的:筛选并鉴定参与内质网应激响应的稻瘟病菌质膜蛋白。
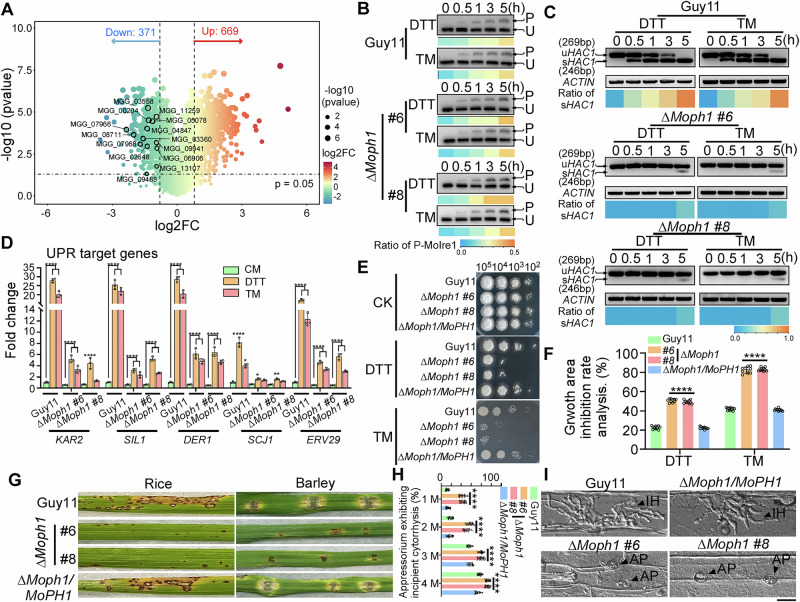
方法细节:采用定量膜蛋白质组学分析,比较内质网应激(DTT+TM共处理)与非应激条件下的膜蛋白表达差异,筛选含质膜相关结构域、基因表达上调且膜蛋白含量下降的候选蛋白;通过荧光蛋白标记验证候选蛋白的亚细胞定位;构建ΔMoph1突变体与回补菌株,检测其内质网应激响应(Ire1磷酸化、Hac1剪切、UPR靶基因表达)、应激生存能力、致病性及附着胞功能。
结果解读:筛选到含pleckstrin同源(PH)结构域的蛋白MoPh1,非应激条件下定位于质膜,内质网应激下发生明显的定位变化;ΔMoph1突变体的Hac1剪切比例与UPR靶基因表达显著降低,但Ire1磷酸化水平不受影响(n=9,P<0.05,图2B-D);突变体在应激条件下的生存能力显著下降(n=10,P<0.01,图2E-F),致病性严重减弱,附着胞膨压降低,侵入菌丝无法扩展至相邻细胞(图2G-I)。
产品关联:文献未提及具体蛋白质组学相关产品,领域常规使用Orbitrap系列质谱仪、膜蛋白提取试剂盒等。
3.3 MoPh1响应内质网应激的亚细胞定位动态变化分析
实验目的:解析MoPh1在不同内质网应激条件下的亚细胞定位规律及调控机制。
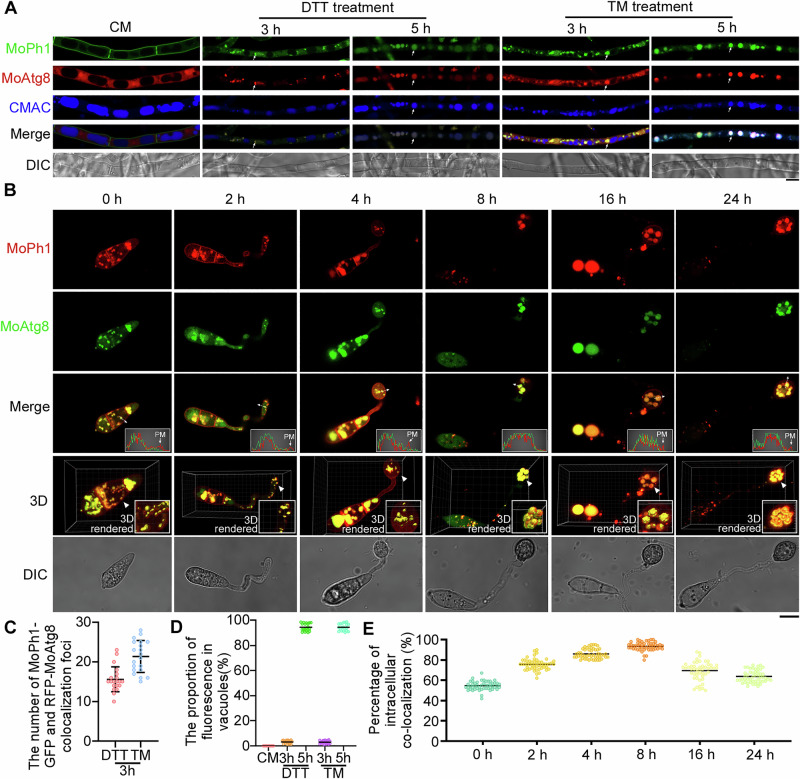
方法细节:观察MoPh1-GFP在非应激、短期(0.5h、1h)、长期(2h、5h)内质网应激下的定位变化;用内吞抑制剂latrunculin B处理菌株,观察MoPh1的内吞过程;检测附着胞形成过程中MoPh1与自噬标记物MoAtg8的共定位情况。
结果解读:非应激条件下MoPh1稳定定位于质膜;短期内质网应激下部分MoPh1形成胞内点状聚集,该过程可被latrunculin B抑制,提示依赖内吞作用进入胞内;长期应激下MoPh1与自噬体标记物MoAtg8、液泡染料CMAC共定位(n=20,P<0.05,图3A-D);附着胞形成过程中MoPh1部分保留在质膜,与MoAtg8的共定位比例随应激水平波动,在8h达到峰值(n=50,P<0.01,图3B、E)。
产品关联:实验所用关键产品:latrunculin B、CMAC、FM4-64。
3.4 MoPh1通过调控自噬参与内质网应激响应的机制解析
实验目的:明确MoPh1调控自噬的方式及关键互作蛋白。
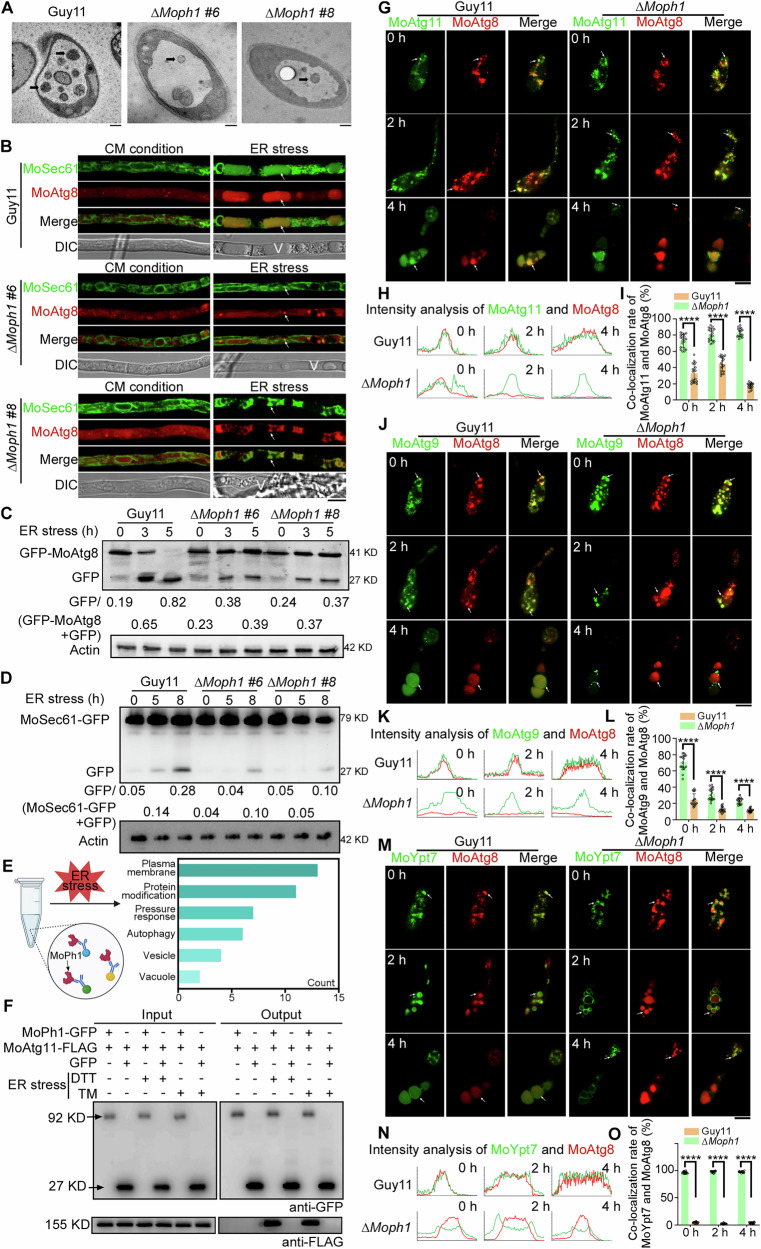
方法细节:用透射电镜观察野生型与ΔMoph1突变体在应激下的自噬体数量;通过荧光标记检测非选择性自噬(MoAtg8标记)与选择性自噬(MoSec61标记,即ERphagy)的强度;以MoPh1为诱饵,通过免疫共沉淀(Co-IP)结合质谱筛选互作蛋白;通过BiFC、Co-IP验证MoPh1与MoAtg11、MoAtg9、MoYpt7的互作;检测ΔMoph1突变体中这些蛋白的定位与互作变化。
结果解读:ΔMoph1突变体中自噬体数量显著减少(图4A);非选择性自噬与选择性自噬在野生型菌株中被内质网应激诱导,而在突变体中受显著抑制(图4B-D);MoPh1与自噬支架蛋白MoAtg11、自噬体-液泡融合相关蛋白MoYpt7直接互作;ΔMoph1突变体中MoAtg11无法定位于自噬体,MoAtg9形成异常聚集,MoYpt7的液泡定位受干扰(n=20,P<0.05,图4F-O)。
产品关联:实验所用关键产品:透射电镜、抗GFP琼脂糖珠(Chromo Tek,gta-20)、Orbitrap Astral质谱仪。
3.5 MoPh1感知内质网应激的信号传递机制解析
实验目的:解析MoPh1感知内质网应激信号的路径及磷酸化修饰对其功能的调控。
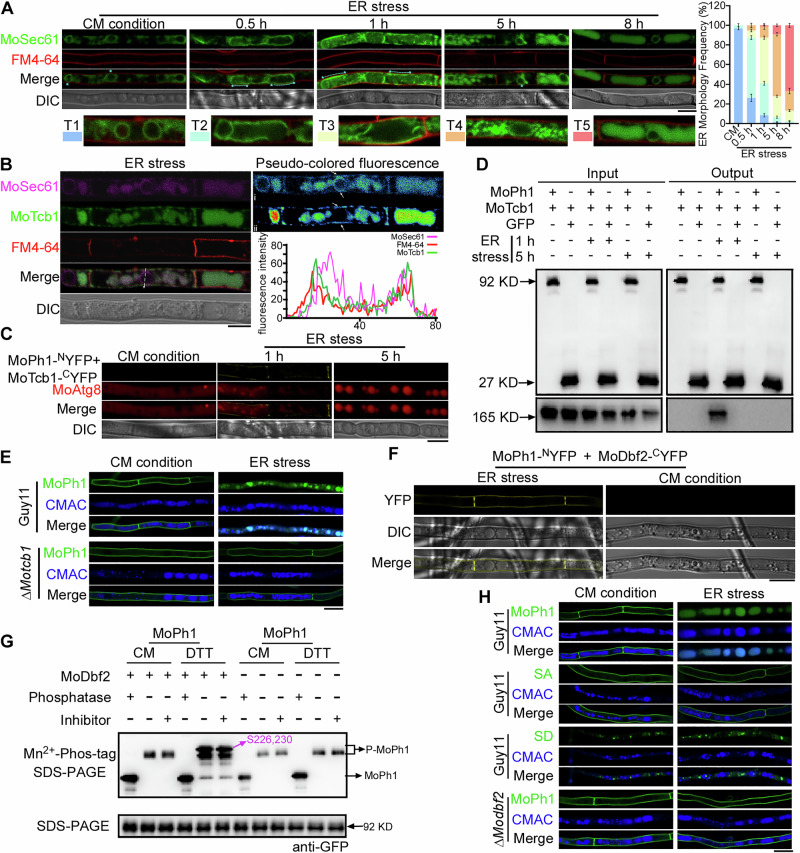
方法细节:通过荧光标记观察内质网应激下内质网-质膜(ER-PM)接触位点的变化;通过BiFC、Co-IP验证MoPh1与ER-PM接触位点调控蛋白MoTcb1的互作;构建ΔMotcb1突变体,检测MoPh1的定位变化;通过质谱鉴定MoPh1的磷酸化位点,通过Phos-tag凝胶、体外激酶实验验证蛋白激酶MoDbf2对MoPh1的磷酸化;构建ΔModbf2突变体与MoPh1磷酸化位点突变体(S226/230A、S226/230D),检测MoPh1的定位与功能。
结果解读:内质网应激下ER与PM的接触位点显著增加,短期应激时接触频率最高(n=5,P<0.05,图5A);MoTcb1定位于ER-PM接触位点,与MoPh1在短期应激下特异性互作;ΔMotcb1突变体中MoPh1无法从质膜解离(图5B-E);MoPh1的S226与S230位点在应激下被MoDbf2特异性磷酸化;ΔModbf2突变体与MoPh1S226/230A突变体中MoPh1无法从质膜解离,MoPh1S226/230D突变体可自发内吞但无法定位于液泡,致病性无法完全恢复(图5F-H);MoTcb1与MoPh1的互作是MoPh1磷酸化的前提,提示信号传递路径为“ER-PM接触位点传递信号→MoPh1被MoDbf2磷酸化→从质膜解离”。
产品关联:实验所用关键产品:Phos-tag凝胶、AlphaFold3模型。
3.6 MoPh1通路与经典Ire1通路的关系解析
实验目的:明确MoPh1介导的质膜-液泡通路与经典Ire1通路的独立性及交互作用。
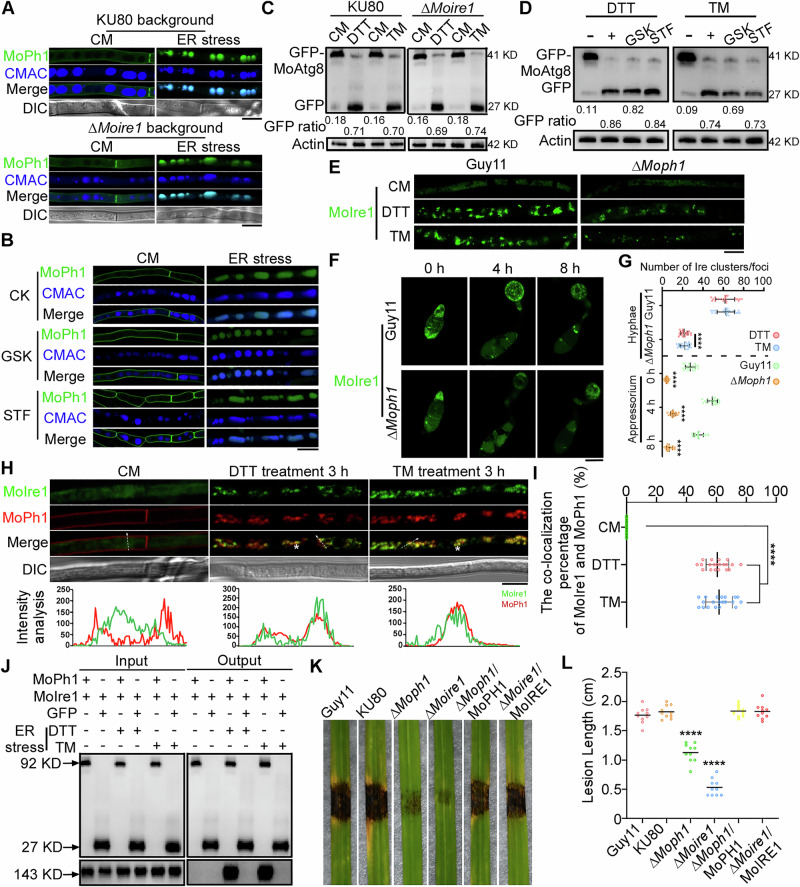
方法细节:用Ire1抑制剂处理或构建ΔMoire1突变体,检测MoPh1的定位变化、自噬活性及MoTcb1与MoPh1的互作;观察ΔMoph1突变体中MoIre1的相分离液滴形成情况;通过BiFC、Co-IP验证MoPh1与MoIre1的互作;检测ΔMoire1突变体的致病性。
结果解读:抑制Ire1活性或缺失MoIRE1不影响MoPh1的定位变化、自噬活性及MoTcb1与MoPh1的互作(图6A-D),提示MoPh1通路独立于经典Ire1通路;ΔMoph1突变体中MoIre1的相分离液泡数量显著减少(n=20,P<0.01,图6E-G);MoPh1与MoIre1在应激下特异性互作,互作结构域为Ire1的内在无序区(与相分离相关),提示MoPh1可通过促进Ire1相分离增强经典通路活性;ΔMoire1突变体致病性严重减弱,病斑长度显著缩短(n=10,P<0.01,图6K-L)。
产品关联:实验所用关键产品:GSK2850163、STF-083010。
3.7 MoPh1通路的跨物种保守性验证
实验目的:验证MoPh1介导的内质网应激响应通路在真菌与植物中的保守性。
方法细节:分析稻瘟病菌中19个含PH结构域的蛋白的定位与应激响应;通过生物信息学分析拟南芥中MoPh1与MoTcb1的同源蛋白;用分裂荧光素酶实验验证拟南芥同源蛋白的互作;检测拟南芥同源蛋白的定位变化与应激耐受性。
结果解读:稻瘟病菌中仅MoPh1在应激下发生质膜到液泡的定位变化;拟南芥中存在2个MoPh1同源蛋白AtPH1、AtPH2,26个MoTcb1同源蛋白;AtPH2可与AtSYT1、AtAGD12互作,AtPH1可与AtSYT1互作;AtPH1、AtPH2在应激下从质膜转移到胞内,缺失后植物对内质网应激的耐受性显著降低。
产品关联:实验所用关键产品:分裂荧光素酶实验系统、AlphaFold3模型。
4. Biomarker研究及发现成果
Biomarker定位与筛选逻辑
本研究鉴定的MoPh1是首个被报道的质膜定位内质网应激传感器,属于含PH结构域的蛋白。其筛选逻辑为:通过定量膜蛋白质组学分析内质网应激下差异表达的膜蛋白,筛选出含质膜相关结构域、基因表达上调但膜蛋白含量下降的候选蛋白;结合亚细胞定位验证与突变体功能分析,最终确定MoPh1为内质网应激响应的核心Biomarker。
研究过程与特性验证
MoPh1来源于稻瘟病菌质膜,通过亚细胞定位观察、突变体功能验证、互作蛋白鉴定、磷酸化分析等多种方法进行验证:非应激条件下稳定定位于质膜,内质网应激下通过内吞作用进入胞内,靶向自噬体与液泡;其感知应激信号依赖于ER-PM接触位点调控蛋白MoTcb1,被MoDbf2在S226、S230位点磷酸化后从质膜解离;在稻瘟病菌的PH结构域蛋白中,仅MoPh1具有内质网应激响应的特异性,短期应激下即可发生定位变化,响应速度快。
核心成果与应用价值
MoPh1作为内质网应激传感器,可通过质膜-液泡通路调控自噬的起始与融合,同时通过促进Ire1相分离增强经典UPR通路活性,双重机制缓解内质网应激,增强真菌适应性与致病性;ΔMoph1突变体的致病性显著降低,病斑面积减少约40%(n=100,P<0.01),附着胞膨压下降约35%(n=20,P<0.05);该通路在拟南芥中存在同源机制,提示其在生物系统中具有一定保守性。MoPh1不仅为内质网应激感知提供了新的非经典通路模型,也为稻瘟病的防治提供了潜在的药物靶点,具有重要的理论与应用价值。