

利用合成转录回路感知和重编程表面受体激活
Sensing and Reprogramming Surface Receptor Activation With Synthetic Transcriptional Circuits
1. 领域背景与文献
文献英文标题:Sensing and Reprogramming Surface Receptor Activation With Synthetic Transcriptional Circuits;
发表期刊:未公开;影响因子:未公开;研究领域:合成生物学与细胞信号转导(膜近端受体信号感知与治疗性重编程)
细胞表面受体是介导胞外信号向胞内传递的关键枢纽,其激活后的膜近端蛋白相互作用与信号级联调控细胞增殖、分化、存活等核心生理功能,异常激活与肿瘤、神经退行性疾病等多种重大疾病的发生发展密切相关。领域共识:传统的信号感知技术如荧光蛋白基生物传感器虽能实时监测信号,但普遍存在信号背景比低的局限;现有合成转录电路可将细胞信号转化为可调控的转录输出,部分实现异常信号的治疗性重编程,但多针对胞质信号分子,缺乏对膜近端信号的空间选择性,易受信号扩散、通路交叉干扰影响,灵敏度与特异性不足,无法精准捕捉膜受体激活的瞬时、局部信号。这一技术空白限制了对膜近端生化信号网络的解析,也阻碍了将异常受体激活定向重编程为治疗功能的转化应用,因此开发通用的膜近端信号感知与重编程工具具有重要的学术价值与临床意义。
2. 文献综述解析
作者将现有膜受体信号感知技术分为三类,分别为荧光蛋白基生物传感器、相分离可视化技术、合成转录电路,通过对比各类技术的优势与局限,明确当前领域的核心空白。
荧光蛋白基生物传感器通过蛋白构象变化或片段互补实现信号感知,应用场景广泛,但信号背景比有限,难以区分低丰度的膜近端信号;相分离可视化技术利用多价蛋白相互作用形成的相分离结构提升信号背景比,但仅适用于特定的多价相互作用信号,通用性不足;现有合成转录电路可将信号事件转化为转录输出,部分实现异常信号的治疗性重编程,如RASER电路可检测ErbB激活并触发效应分子释放,但这类电路多靶向胞质信号分子,存在膜近端活性信息缺失、信号扩散导致灵敏度低、通路交叉干扰导致选择性差等问题。
作者指出,当前缺乏通用的合成遗传电路策略来感知并重编程膜近端受体激活信号,这一空白直接限制了对膜近端生化信号的精准解析以及异常受体激活的定制化治疗干预,而本研究开发的合成受体信号诱导转录(RESIT)电路正是针对这一空白,实现了膜近端信号的高灵敏度、高特异性感知与定制化转录重编程,为领域提供了全新的技术范式。
3. 研究思路总结与详细解析
本研究以“开发通用膜近端信号感知与重编程合成转录电路”为核心目标,围绕“如何将膜近端蛋白相互作用转化为可调控的转录输出”这一科学问题,构建了“假设提出-系统优化-多场景验证-治疗转化”的完整研究闭环。研究首先提出膜锚定的拆分转录因子(TF)域可通过邻近相互作用实现蛋白酶互补与TF释放,进而启动定制化转录程序的假设,基于此设计RESIT系统,通过模块化优化验证其通用性与灵敏度,随后将其应用于Ca²⁺内流、RTK激活、Ras激活等多种膜受体信号场景,最终实现异常RTK激活向凋亡诱导、蛋白降解、T细胞激活等治疗功能的重编程。
3.1 RESIT系统的设计与模块化优化
实验目的是构建可特异性感知膜近端受体激活的合成转录电路,验证其模块化组件的通用性与可扩展性。方法细节:设计包含N端膜锚定域、烟草蚀纹病毒蛋白酶(TEVp)切割位点、截断的DNA结合域(DBD)、拆分TEVp片段及相互作用域的两个膜定位合成转录模块,以FK506结合蛋白(FKBP)与FKBP-雷帕霉素结合域突变体(FRBT2098L)的AP21967诱导相互作用为模型系统,优化Gal4的截断变体、膜锚定域组合(PH域与N-豆蔻酰化肽)、质粒转染比例,同时测试不同拆分病毒蛋白酶(李痘病毒蛋白酶PPVp、大豆花叶病毒蛋白酶SbMVp)和不同DBD(截断TetR、GCN4)的适配性。结果解读:最优截断Gal4变体tGal4(65)在AP21967诱导下,iRFP670报告基因的信号背景比达103倍(n=3,P<0.0001),膜锚定设计的信号背景比显著高于胞质定位版本;基于PPVp与SbMVp的RESIT系统信号背景比分别达105倍与51倍(n=3,P<0.0001),tTetR(196)与tGCN4(274)的信号背景比分别达31倍与16倍(n=3,P<0.0001),且不同DBD仅激活其同源报告基因,证明系统具有高度模块化通用性与正交性。
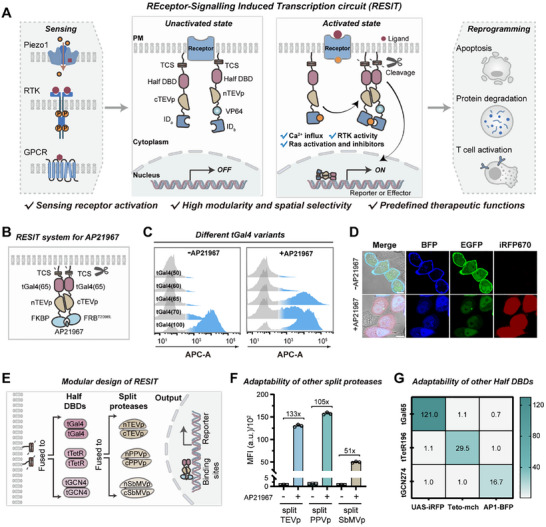
文献未提及具体实验产品,领域常规使用流式细胞仪(BD Biosciences FACS Celesta)、Western blot相关一抗与二抗、Lipofectamine系列转染试剂等。
3.2 RESIT系统感知Ca²⁺内流信号的验证
实验目的是验证RESIT系统对膜近端Ca²⁺内流信号的感知能力,覆盖PIEZO1激活、GPCR激活及T细胞激活等多种生理与病理相关场景。方法细节:将RESIT系统的相互作用域替换为钙调蛋白(CaM)与CaM结合肽M13,在HeLa、HEK293T、MCF-7等细胞系中,分别测试Yoda1(PIEZO1激活剂)、组胺(H1R激活剂)、离子霉素诱导的Ca²⁺内流信号;在Jurkat T细胞中,通过慢病毒转导RESIT系统,与不同HER2表达水平的靶细胞共培养,在双特异性T细胞衔接子(BiTE)介导下测试T细胞激活伴随的Ca²⁺内流信号。结果解读:Yoda1诱导下,PIEZO1阳性HeLa细胞的iRFP信号显著提升(n=3,P<0.0001),而PIEZO1阴性HEK293T细胞仅在转染PIEZO1质粒后产生信号;组胺诱导H1R转染的MCF-7细胞产生特异性信号,且信号依赖于胞外Ca²⁺(n=3,P<0.0001);Jurkat T细胞与HER2高表达SKOV3细胞共培养时,Gluc报告基因活性显著升高(n=3,P<0.0001),且信号强度与靶细胞HER2表达水平正相关,同时T细胞激活标记物CD69的阳性率显著提升,证明系统可特异性感知T细胞激活的Ca²⁺内流信号,且具备时间整合性,可捕捉30秒的瞬时Ca²⁺内流。
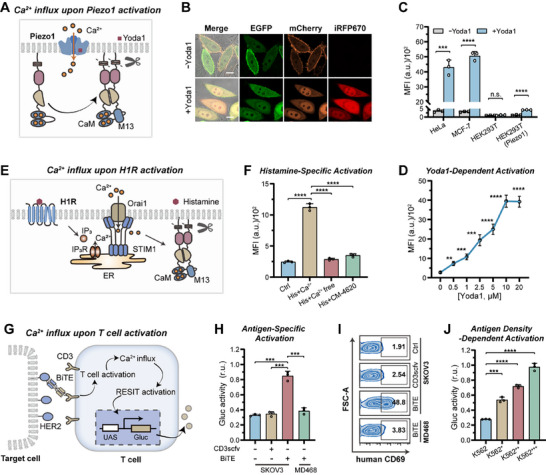
文献未提及具体实验产品,领域常规使用钙离子载体、GPCR特异性激活剂、流式抗体(APC标记抗CD69)、ELISA试剂盒(IL2)等。
3.3 RESIT系统感知RTK与Ras激活信号的验证
实验目的是验证RESIT系统对致癌受体酪氨酸激酶(RTK,以EGFR为模型)及下游Ras激活信号的感知能力,并评估其在Ras突变体功能鉴定与抑制剂筛选中的应用价值。方法细节:针对EGFR激活,设计包含VAV1的Src同源2(SH2)域(用于招募至激活的EGFR)、NPXY磷酸化底物、SHC1的磷酸酪氨酸结合(PTB)域的RESIT模块,测试表皮生长因子(EGF)诱导的信号激活,在HEK293T、MCF-7、HeLa、SKOV3、A549等细胞系中检测内源性RTK活性;针对Ras激活,将RESIT系统的相互作用域替换为Ras与Raf1的Ras结合域(RBD),测试EGF诱导的Ras激活信号,构建不同Ras突变体(G12C、G12D、G13D、Q61L、S17N)的RESIT模块,验证其组成型活性,并测试MRTX1133、RMC-7977两种Ras抑制剂的响应效果。结果解读:EGF诱导下,HeLa细胞的iRFP信号背景比达6倍(n=3,P<0.0001),膜锚定版本的信号强度显著高于胞质定位版本;不同细胞系的信号强度与内源性EGFR激活水平正相关,EGFR抑制剂拉帕替尼处理后信号完全被抑制(n=3,P<0.0001);Ras突变体G12C、G12D、G13D、Q61L的RESIT模块呈现组成型激活信号,而S17N突变体无信号,与文献报道的致癌活性一致;MRTX1133特异性抑制G12D突变体的信号(n=3,P<0.0001),而RMC-7977广谱抑制所有活性突变体的信号,证明系统可用于Ras突变体功能鉴定与抑制剂筛选。
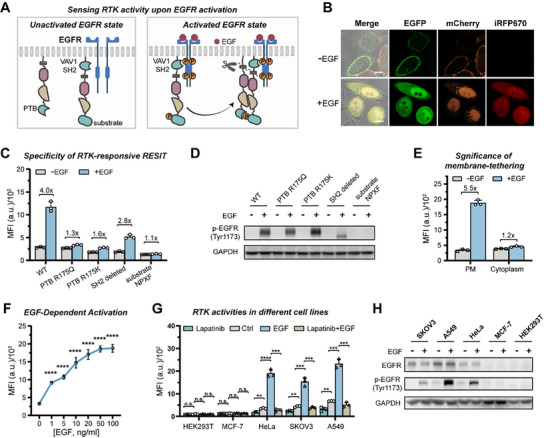
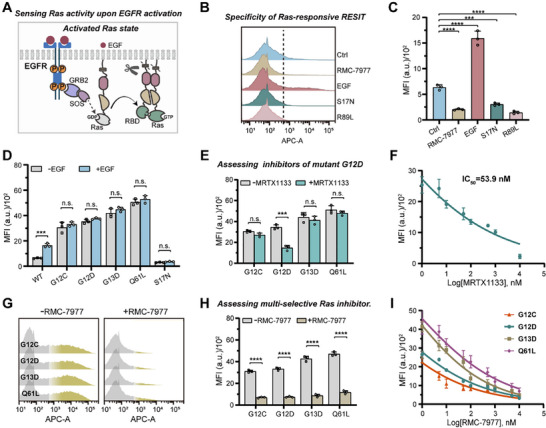
文献未提及具体实验产品,领域常规使用RTK抑制剂、Ras特异性抑制剂、Western blot抗体(抗EGFR、抗磷酸化EGFR)等。
3.4 RESIT系统的治疗性重编程应用
实验目的是将RESIT系统重编程为针对异常RTK激活细胞的定制化治疗工具,实现细胞特异性的凋亡诱导、靶蛋白降解与T细胞激活。方法细节:将RESIT系统的报告基因替换为凋亡诱导蛋白Bax、溶酶体靶向嵌合体(LYTAC,包含EGFR靶向纳米抗体与IGF2R结合肽Endotag2)、BiTE(包含EGFR纳米抗体与CD3单链可变片段),在不同RTK活性的细胞系中测试治疗功能的特异性与有效性。结果解读:在高RTK活性的A549、SKOV3细胞中,Bax诱导的凋亡率分别为27.7%、18.6%(n=3,P<0.0001),中等RTK活性的HeLa细胞凋亡率为12.3%,低RTK活性的MCF-7细胞凋亡率仅为2.09%,凋亡率与细胞RTK活性正相关;LYTAC介导的EGFR降解在A549细胞中达70%,SKOV3细胞中达65%(n=3,P<0.0001),且仅在高RTK活性细胞中产生显著降解;HeLa细胞分泌的BiTE可特异性激活Jurkat T细胞,CD69阳性率显著提升(n=3,P<0.0001),IL2分泌水平显著升高,证明系统可实现细胞特异性的治疗功能重编程。
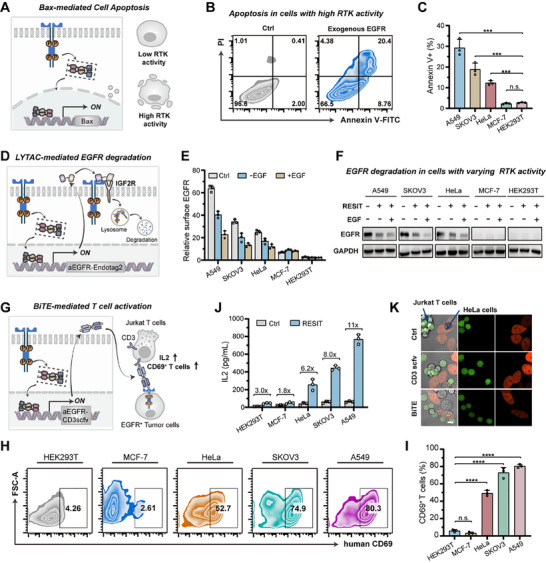
文献未提及具体实验产品,领域常规使用凋亡检测试剂盒(Annexin V-FITC/PI)、Western blot抗体(抗EGFR)、ELISA试剂盒(IL2)等。
4. Biomarker研究及发现成果解析
本研究涉及三类关键Biomarker,分别为Ca²⁺内流(PIEZO1激活、T细胞激活的功能Biomarker)、磷酸化NPXY(RTK激活的直接Biomarker)、活性Ras(致癌突变体的功能Biomarker),通过RESIT系统实现了这些Biomarker的转录水平定量感知与功能验证。
Ca²⁺内流作为功能Biomarker,筛选逻辑为“模型系统验证-细胞系特异性验证-临床相关场景(T细胞激活)验证”;磷酸化NPXY作为RTK激活的直接Biomarker,筛选逻辑为“底物设计-磷酸化特异性验证-信号关联验证”;活性Ras作为致癌Biomarker,筛选逻辑为“突变体构建-组成型活性验证-抑制剂响应验证”。
Ca²⁺内流通过CaM与M13的相互作用被RESIT系统感知,验证方法为流式细胞术检测iRFP或Gluc报告基因信号,特异性表现为仅在PIEZO1阳性细胞或T细胞激活时产生信号,灵敏度可捕捉30秒的瞬时Ca²⁺内流,信号强度与Ca²⁺浓度(0.25-4 mM)呈剂量依赖关系(n=3,P<0.0001);磷酸化NPXY通过VAV1 SH2域招募至激活的EGFR,由PTB域识别,验证方法为Western blot检测磷酸化水平,信号强度与EGFR激活水平正相关(n=3,P<0.0001);活性Ras通过与Raf1 RBD的相互作用被感知,验证方法为流式细胞术检测iRFP信号,不同Ras突变体的信号强度与文献报道的致癌活性一致,MRTX1133对G12D突变体的特异性抑制表现为信号显著降低(n=3,P<0.0001),RMC-7977对所有活性突变体均有抑制效果。
Ca²⁺内流感知模块可作为T细胞激活的定量Biomarker,其信号强度与靶细胞HER2表达水平正相关(n=3,P<0.0001),为T细胞免疫治疗的疗效监测提供新工具;磷酸化NPXY可作为RTK激活的通用报告底物,实现不同细胞系RTK活性的定量检测,为RTK靶向药物的筛选提供新平台;活性Ras感知模块可作为Ras突变体功能鉴定及抑制剂筛选的工具,首次实现基于转录输出的Ras突变体活性实时检测,解决了传统Ras活性检测方法操作复杂、无法实时监测的局限。此外,三类Biomarker的感知均依赖于RESIT系统的膜锚定设计,相比胞质定位系统具有更高的特异性与灵敏度,为膜近端Biomarker的研究提供了全新的技术框架。