

铜凋亡和二硫键凋亡汇合,通过Cadict诱导的PD-L1转化增强PD-L1检查点疗法。
Cuproptosis and Disulfidptosis Converge to Empower PD-L1 Checkpoint Therapy via Cadict-Induced PD-L1 Translation
1. 领域背景与文献
发表期刊:文献未明确提供;影响因子:文献未明确提供;研究领域:肿瘤免疫治疗、细胞死亡调控、纳米医学
免疫检查点治疗是肿瘤治疗领域的革命性突破,以PD-1/PD-L1为靶点的疗法已获批用于多种恶性肿瘤,但仍有大量患者存在原发或获得性耐药,尤其是低PD-L1表达的肿瘤对治疗响应不佳,这是当前领域未解决的核心问题。细胞死亡调控是肿瘤治疗的重要方向,铜死亡(cuproptosis)作为2022年发现的新型细胞死亡方式,通过铜离子依赖的脂酰化蛋白聚集诱导细胞死亡,同时能上调肿瘤细胞PD-L1表达,为联合免疫治疗提供了潜力;二硫键死亡(disulfidptosis)是近年定义的由二硫键应激和NADPH耗竭触发的细胞死亡,其在肿瘤微环境中的免疫调控作用尚未明确。纳米医学为肿瘤靶向治疗提供了工具,目前已有纳米药物能诱导单一细胞死亡方式并联合免疫治疗,但单一细胞死亡途径易导致耐药,且同时诱导铜死亡与二硫键死亡的纳米策略尚未见报道,两种死亡方式联合对PD-L1的调控机制也未被揭示。因此,开发能同时诱导铜死亡与二硫键死亡的靶向纳米药物,明确其对PD-L1的调控机制,是克服免疫检查点治疗耐药的关键方向。
2. 文献综述解析
作者对领域内现有研究按细胞死亡类型、纳米药物应用场景、PD-L1调控机制三个维度进行分类评述,系统梳理了免疫检查点治疗耐药、细胞死亡途径的免疫调控、纳米药物联合治疗的研究现状,明确了当前研究的局限性与空白。
现有研究显示,PD-1/PD-L1疗法的耐药机制包括肿瘤细胞PD-L1表达下调、肿瘤微环境免疫抑制等;铜死亡能通过HIF-1α、NF-κB等通路上调PD-L1,基于铜死亡的纳米药物联合抗PD-L1治疗能增强抗肿瘤效果,但单一铜死亡诱导易出现耐药;二硫键死亡作为新型细胞死亡方式,其触发的二硫键积累能导致细胞骨架崩溃,但该途径对肿瘤微环境的重塑作用、与免疫治疗的协同效应尚未深入研究。纳米药物领域,目前已开发出能联合两种细胞死亡方式的载体,如铁死亡与焦亡、铁死亡与二硫键死亡的组合,但尚未有同时诱导铜死亡与二硫键死亡的纳米平台,且两种死亡方式联合对PD-L1的调控机制仍属空白,无法为低PD-L1肿瘤的免疫治疗提供新的靶点与策略。
通过对比现有研究的未解决问题,本研究的创新价值凸显:首次构建了能同时诱导铜死亡与二硫键死亡的EGFR靶向纳米药物Cadict,实现了两种死亡途径的协同激活;首次揭示了铜死亡与二硫键死亡联合通过整合应激反应(ISR)通路、Eif5b依赖的翻译机制上调PD-L1,而非经典的IFN-γ信号通路;首次验证了Cadict联合抗PD-L1疗法能在低PD-L1表达的肿瘤模型中克服耐药,诱导持久的免疫记忆,为免疫检查点治疗的拓展提供了新的范式。
3. 研究思路总结与详细解析
本研究的整体框架为“预实验验证联合细胞死亡的协同效应→纳米药物合成与表征→细胞与体内验证双死亡诱导效果→机制解析PD-L1上调通路→体内验证联合治疗的协同疗效与免疫记忆”,核心科学问题是铜死亡与二硫键死亡联合如何调控PD-L1表达,以及如何通过纳米药物实现靶向递送以增强免疫治疗效果,技术路线形成了“假设-验证-机制-转化”的完整闭环。
3.1 铜死亡与二硫键死亡联合的预实验验证
实验目的:验证铜死亡与二硫键死亡联合是否能协同增强肿瘤细胞毒性,上调PD-L1表达,并提升抗PD-L1治疗的疗效。
方法细节:采用小鼠结直肠癌细胞系CT26(微卫星稳定,MSS)和MC38(微卫星高度不稳定,MSI-H),分别用铜死亡诱导剂CuCl2-Elesclomol(Cu-ES)和二硫键死亡诱导剂BAY-876单独或联合处理,通过细胞活力检测、克隆形成实验评估细胞毒性;用蛋白质免疫印迹(Western blot)检测PD-L1表达;体内构建CT26和MC38皮下荷瘤小鼠模型,分为对照组、Cu-ES+BAY-876组、抗PD-L1组、Cu-ES+BAY-876+抗PD-L1组,每3天给药一次,检测肿瘤生长、免疫细胞浸润情况。
结果解读:体外实验显示,联合处理显著降低细胞活力,克隆形成率较单药组显著降低(n=3,P<0.0001),PD-L1表达较对照组上调3.8倍(n=3,P<0.001),且该上调能被铜死亡抑制剂TTM或二硫键死亡抑制剂TCEP逆转;体内实验中,Cu-ES+BAY-876+抗PD-L1组肿瘤体积较对照组缩小约70%(n=5,P<0.0001),肿瘤组织中CD8+T细胞浸润比例增加约2.5倍(n=3,P<0.01),髓源性抑制细胞(MDSCs)比例降低约40%(n=3,P<0.01),表明联合两种死亡方式能增强抗PD-L1的疗效。
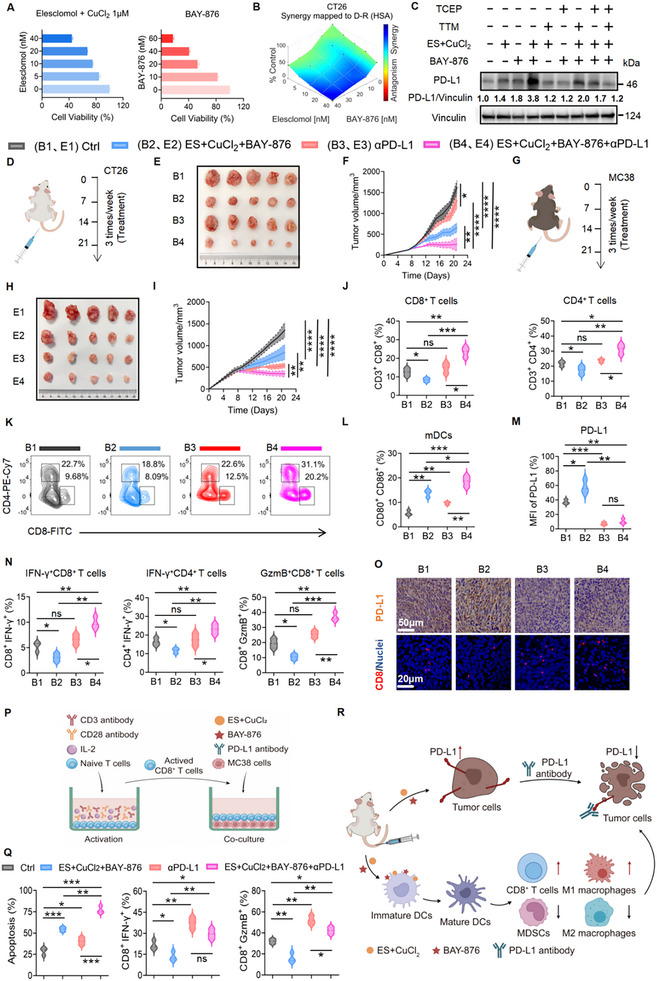
产品关联:实验所用关键产品:Elesclomol(Selleck #STA-4783)、BAY-876(Selleck #S8452)、Tetrathiomolybdate(TTM,Sigma #323446)、Tris(2-chloroethyl) phosphate(TCEP,Beyotime #ST045)。
3.2 Cadict纳米药物的合成与表征
实验目的:构建能同时递送铜离子、半胱氨酸和葡萄糖氧化酶(GOx)的EGFR靶向纳米药物,实现肿瘤部位的靶向富集与细胞内药物释放。
方法细节:采用配位自组装法合成Cadict:将铜离子溶液与GOx溶液混合,滴加半胱氨酸溶液,最后加入DSPE-PEG-GE11(EGFR靶向肽),室温搅拌4小时后超滤浓缩;用动态光散射(DLS)检测粒径、多分散性指数(PDI)、zeta电位,X射线衍射(XRD)、X射线光电子能谱(XPS)表征晶体结构与铜价态,透射电子显微镜(TEM)观察形态;用ICG标记Cadict,通过体内成像检测肿瘤靶向性,电感耦合等离子体质谱(ICP-MS)检测细胞内铜积累量。
结果解读:合成的Cadict粒径为11.7nm,PDI为0.294,zeta电位为+21.4mV,在PBS中可稳定存在6天;XRD结果显示半胱氨酸与CuS的特征峰共存,XPS显示63.5%的铜为Cu+,具有更强的铜死亡诱导活性;体内成像显示,Cadict在肿瘤部位的荧光强度是游离ICG组的3倍(n=3,P<0.0001),12小时达到峰值;细胞内铜积累量较对照组增加14.3倍(n=3,P<0.001),表明Cadict能有效靶向肿瘤并释放铜离子。
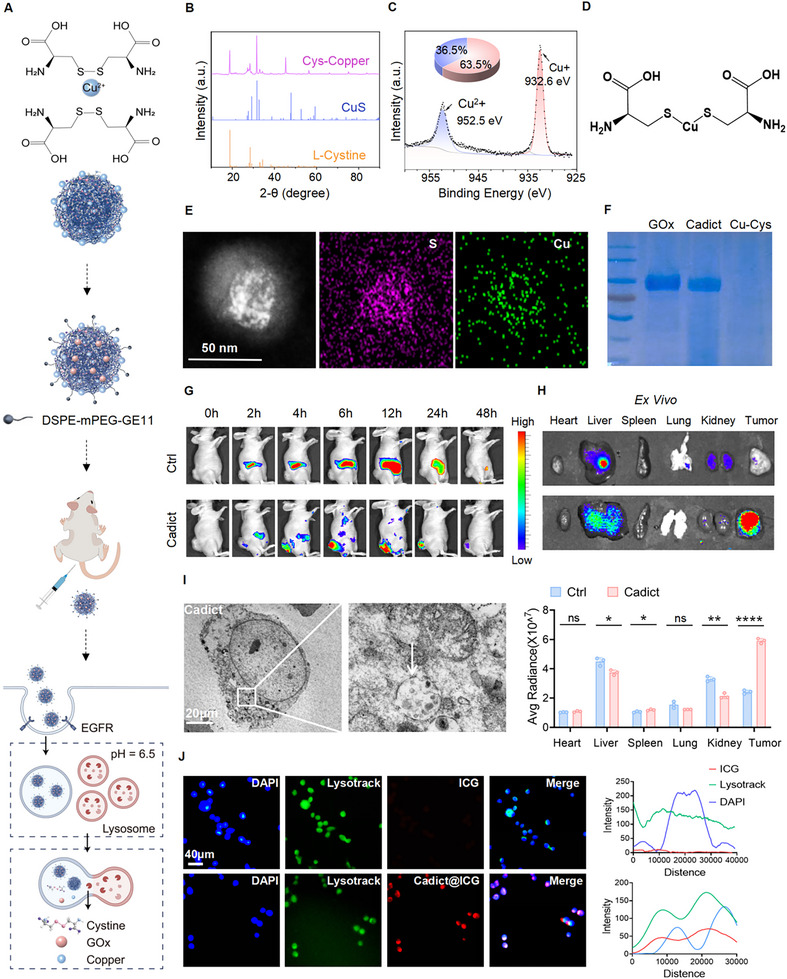
产品关联:实验所用关键产品:DSPE-PEG-GE11(MeloPEG #909204-1)、葡萄糖氧化酶(GOx,Sigma #G7141)、CuCl2(Sigma #203149)、半胱氨酸(Sigma #779539)。
3.3 Cadict诱导铜死亡与二硫键死亡的细胞与体内验证
实验目的:验证Cadict能特异性诱导肿瘤细胞发生铜死亡与二硫键死亡,且具有良好的生物相容性与体内抗肿瘤效果。
方法细节:采用MC38结直肠癌细胞和正常结肠上皮细胞NCM460,检测不同浓度Cadict处理后的细胞活力;用多种细胞死亡抑制剂(如铁死亡抑制剂Fer-1、凋亡抑制剂BOC-D-FMK、铜死亡抑制剂TTM、二硫键死亡抑制剂TCEP等)处理细胞,验证Cadict诱导的死亡途径;检测细胞内谷胱甘肽(GSH)水平、活性氧(ROS)水平、线粒体形态;体内构建MC38荷瘤小鼠模型,分为对照组、GOx组、CuCl2组、半胱氨酸组、Cu-半胱氨酸组、Cadict组,每3天给药一次,检测肿瘤生长、免疫细胞浸润、组织毒性。
结果解读:Cadict对MC38细胞呈剂量和时间依赖性毒性,4µm浓度下72小时细胞活力为0(n=3,P<0.0001),对NCM460细胞的毒性可忽略;TTM或TCEP单独处理能部分恢复细胞活力,联合处理则完全恢复(n=3,P<0.0001),表明Cadict同时诱导两种死亡途径;Cadict处理后细胞内GSH水平降低70%(n=3,P<0.001),ROS水平增加4倍(n=3,P<0.0001),线粒体出现皱缩、嵴断裂等铜死亡特征,同时F-肌动蛋白出现收缩等二硫键死亡特征;体内5mg/kg剂量下,Cadict组肿瘤体积较对照组缩小约80%(n=6,P<0.0001),血清肝肾功能指标无异常,主要器官组织无病理损伤,显示良好的生物相容性。
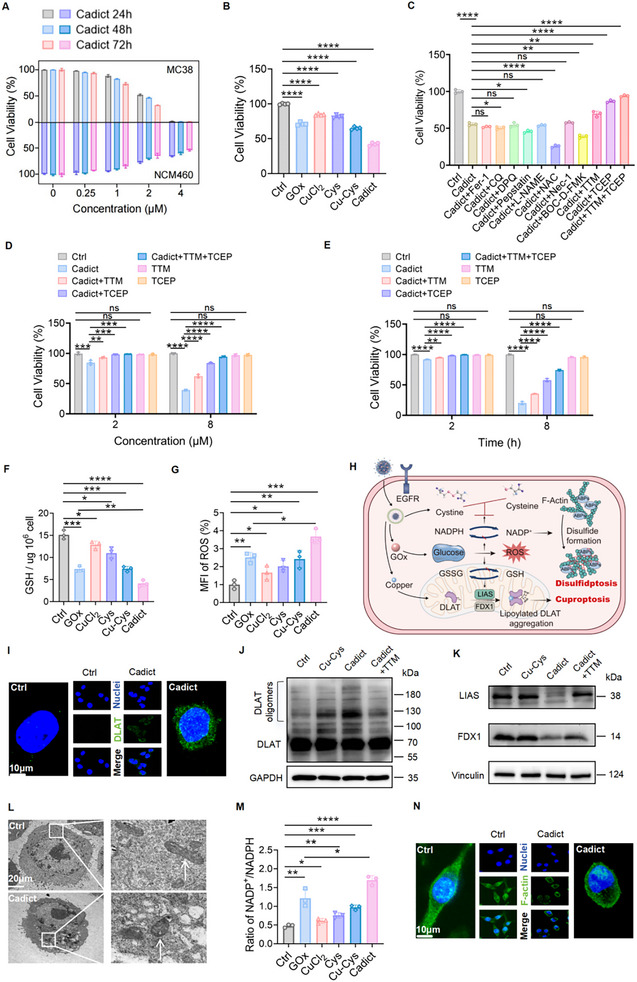
产品关联:实验所用关键产品:Ferrostatin-1(Selleck #S7243)、BOC-D-FMK(MedChem Express #HY-13229)、TTM(Sigma #323446)、TCEP(Beyotime #ST045)。
3.4 Cadict上调PD-L1的机制研究
实验目的:揭示Cadict诱导肿瘤细胞PD-L1上调的分子机制,明确其调控通路。
方法细节:用Western blot、流式细胞术检测Cadict及其单一组分处理后PD-L1的表达水平;用qRT-PCR检测PD-L1 mRNA水平,RNA测序(RNA-seq)分析差异表达通路;用放线菌素D检测PD-L1 mRNA稳定性,环己酰亚胺检测PD-L1蛋白稳定性;用ISRIB抑制整合应激反应(ISR)通路,检测PD-L1表达变化;用siRNA敲低Eif2a、Eif2b、Eif5a、Eif5b等翻译因子,明确关键调控因子;用Ruxolitinib抑制IFN-γ信号,检测PD-L1表达变化。
结果解读:Cadict处理后PD-L1蛋白水平显著上调,而mRNA水平无明显变化(n=3,P>0.05),表明为转录后调控;RNA-seq显示Cadict处理后细胞内核糖体蛋白、翻译因子通路富集,ISR通路激活;ISRIB处理能完全逆转Cadict诱导的PD-L1上调(n=3,P<0.0001);siRNA敲低Eif5b后,Cadict诱导的PD-L1上调被显著抑制(n=3,P<0.001),而敲低其他因子无明显影响;Ruxolitinib处理不影响Cadict对PD-L1的上调,表明该过程独立于IFN-γ信号。
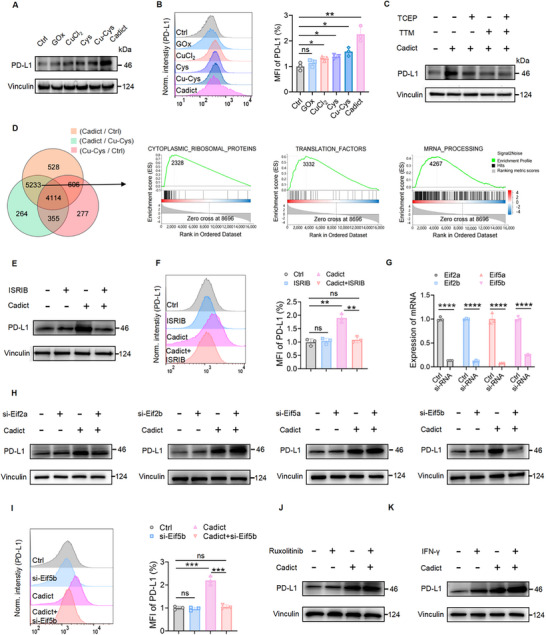
产品关联:实验所用关键产品:ISRIB(Selleck #S0706)、Ruxolitinib(Selleck #S1378)、siRNA(Sigma #SIC002)。
3.5 Cadict联合抗PD-L1的体内疗效与免疫记忆验证
实验目的:验证Cadict联合抗PD-L1疗法的协同抗肿瘤效果,以及是否能诱导持久的免疫记忆。
方法细节:构建MC38和4T1(三阴性乳腺癌,低PD-L1表达)荷瘤小鼠模型,分为对照组、低剂量抗PD-L1组、高剂量抗PD-L1组、Cadict组、Cadict+低剂量抗PD-L1组、Cadict+高剂量抗PD-L1组,每3天给药一次,检测肿瘤生长、免疫细胞浸润;构建肿瘤 rechallenge模型,在原发肿瘤切除后,对侧注射相同肿瘤细胞,检测肿瘤生长与记忆T细胞比例。
结果解读:MC38模型中,Cadict+高剂量抗PD-L1组肿瘤体积较对照组缩小约90%(n=5,P<0.0001),20%小鼠肿瘤完全清除;4T1模型中,抗PD-L1单药几乎无效果,而Cadict+抗PD-L1组肿瘤体积较对照组缩小约75%(n=5,P<0.0001),克服了免疫冷肿瘤的耐药;rechallenge实验中,Cadict+抗PD-L1组40%小鼠无肿瘤生长,脾脏中央记忆T细胞(Tcm,CD44+CD62L+)比例较对照组增加约3倍(n=3,P<0.001),肿瘤组织中效应记忆T细胞(Tem,CD44+CD62L-)比例增加约2.5倍(n=3,P<0.01),表明诱导了持久的免疫记忆。
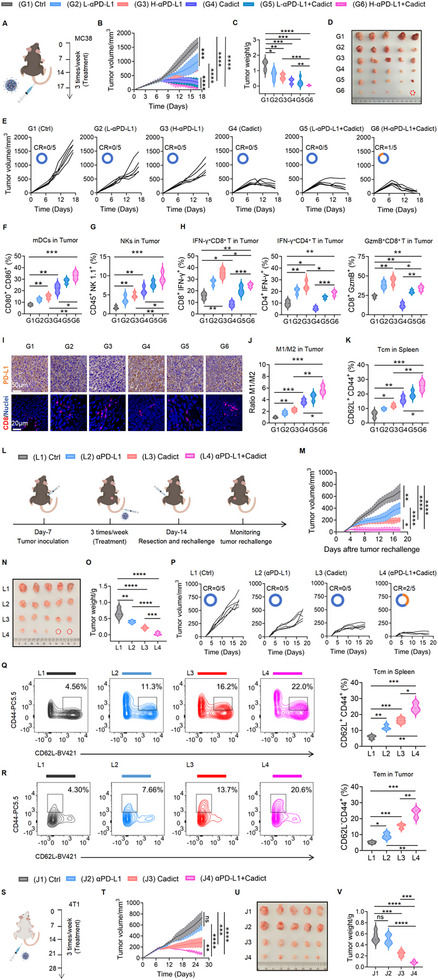
产品关联:文献未提及抗PD-L1抗体的具体品牌,领域常规使用同靶点单抗如阿替利珠单抗、帕博利珠单抗等。
4. Biomarker研究及发现成果解析
本研究的核心Biomarker为肿瘤细胞表面的PD-L1,其筛选与验证逻辑为“细胞实验验证Cadict能上调PD-L1→抑制剂验证依赖铜死亡与二硫键死亡→机制解析明确翻译调控通路→体内验证上调的PD-L1能增强抗PD-L1疗效”,形成了完整的从细胞到体内的验证链条。
Biomarker研究过程详述:PD-L1的来源为肿瘤细胞表面蛋白,验证方法包括Western blot、流式细胞术、免疫组化(IHC);细胞实验中,Cadict处理后MC38细胞表面PD-L1表达上调约3.8倍(n=3,P<0.001),该上调能被TTM或TCEP逆转,表明依赖铜死亡与二硫键死亡;体内实验中,Cadict处理的肿瘤组织PD-L1免疫组化H-score较对照组增加约2倍(n=3,P<0.01);机制研究明确,PD-L1的上调不依赖于IFN-γ信号,而是通过ISR通路、Eif5b依赖的翻译机制实现,该调控方式为PD-L1的表达调控提供了新的非经典通路。
核心成果提炼:PD-L1作为Cadict治疗响应的Biomarker,其上调能显著增强肿瘤细胞对抗PD-L1治疗的敏感性,在低PD-L1表达的4T1模型中,联合治疗的肿瘤生长抑制率较单药Cadict组提升约30%(n=5,P<0.01);本研究的创新性在于首次发现铜死亡与二硫键死亡联合能通过翻译调控上调PD-L1,而非经典的转录调控,为PD-L1的Biomarker应用提供了新的场景;统计学结果显示,Cadict诱导的PD-L1上调倍数为3.8倍(n=3,P<0.001),联合治疗后肿瘤组织中CD8+T细胞浸润比例增加约2.5倍(n=3,P<0.01),记忆T细胞比例增加约3倍(n=3,P<0.001),充分验证了该Biomarker的临床转化潜力。