

一个动态门户:揭示扩展的人类TOM复合物相互作用组及其调控复杂性
A dynamic gateway: Uncovering the expanded human TOM complex interactome and its regulatory complexity
1. 领域背景与文献
发表期刊:Science Advances;影响因子:未公开;研究领域:线粒体生物学,人类线粒体外膜转位酶复合物相互作用组与调控机制研究。
领域共识:目前对线粒体外膜转位酶(translocase of the outer mitochondrial membrane, TOM复合物)的机制研究大部分来源于酿酒酵母,酵母中TOM复合物的核心结构由形成β-桶孔道的Tom40,以及周围的Tom5、Tom6、Tom7、Tom22、Tom20、Tom70等亚基组成,其组装和调控机制已有较清晰的阐释。冷冻电镜结构证实从真菌到哺乳动物,TOM复合物核心结构保守,部分酵母的调控通路在人类中也保守,比如人源泛素特异性蛋白酶USP30对应酵母Ubp16,人源ATP酶家族AAA结构域蛋白ATAD1对应酵母Msp1,都参与TOM复合物相关的蛋白质质量控制。
TOM复合物是核编码线粒体蛋白进入线粒体的通用入口,对维持线粒体生物发生和细胞稳态至关重要。虽然核心结构保守,但人类线粒体蛋白质组的规模远大于酵母,整体细胞蛋白质组也更为复杂,理论上人类TOM复合物存在更广泛的调控相互作用。当前研究的核心空白是,很少有人类特异性的TOM相互作用因子被系统鉴定,尤其是参与质量控制的瞬时、低亲和力相互作用,传统亲和纯化方法容易丢失这类相互作用,导致人类TOM复合物的调控网络一直不完整,这也成为人类线粒体蛋白质稳态研究的关键盲区。
本研究的初衷就是结合交联技术与定量蛋白质组学,构建高置信度的人类TOM复合物相互作用组,捕获传统方法遗漏的瞬时调控相互作用,明确人类特异性的TOM调控因子,填补领域研究空白,为人类线粒体蛋白输入调控研究提供完整的公共数据集资源。
2. 文献综述解析
作者对现有研究的梳理分类维度为进化地位(酵母研究vs人类研究)和相互作用特性(组成型核心相互作用vs瞬时调控性相互作用),逻辑清晰地展现了当前领域的研究进展与局限性。现有酵母研究已经明确了TOM复合物的核心亚基组成、组装机制,建立了成熟的遗传与生化研究体系,证实TOM复合物是线粒体蛋白输入的核心节点,还发掘了多个参与TOM调控的质量控制通路,比如mitoTAD、mitoCPR等,这些研究为人类TOM复合物研究提供了进化保守的参考框架,酵母研究的技术体系也为人类研究提供了方法学参考。
现有研究的局限性十分明确:绝大多数机制研究都基于酵母模型,针对人类TOM复合物相互作用网络的系统性研究非常少,已有的研究仅鉴定了少量人类特异性的调控因子如膜相关RING-CH型指蛋白5(MARH5),但更广泛的相互作用网络,包括瞬时相互作用、辅助功能蛋白都没有得到系统性解析。传统的亲和纯化方法依赖非共价结合的维持,无法捕获低亲和力、瞬时的相互作用,导致很多调控因子被遗漏,无法完整阐释人类TOM复合物的调控复杂性。
本研究的创新价值十分明确:首次结合免疫亲和纯化、膜通透性可富集交联剂和定量质谱,系统构建了高置信度的人类TOM复合物相互作用组,该方法不仅保留了对组成型核心相互作用的鉴定,还通过交联稳定了瞬时弱相互作用,实现了对更广泛调控网络的捕获。研究不仅验证了进化保守的TOM相互作用,还首次鉴定了多个人类特异性的TOM相互作用因子,其中首次发现FK506结合蛋白8(FKBP8)作为调控因子维持TOM复合物稳定性,填补了人类TOM调控网络研究的关键空白,产出的完整相互作用组数据集也为领域后续研究提供了重要的公共资源。
3. 研究思路总结与详细解析
本研究的整体研究框架:研究目标为系统解析人类TOM复合物的相互作用组,发掘未被报道的人类特异性调控因子;核心科学问题是人类TOM复合物是否存在酵母中没有的特异性调控相互作用,新的相互作用因子如何调控TOM复合物功能;技术路线为“构建标签标记的功能型TOM复合物→分组处理(交联/非交联)→亲和纯化联合定量质谱→生物信息学分析筛选→候选新调控因子功能验证”,形成了完整的研究闭环。
3.1 TOM22-FLAG标记TOM复合物的构建与纯化验证
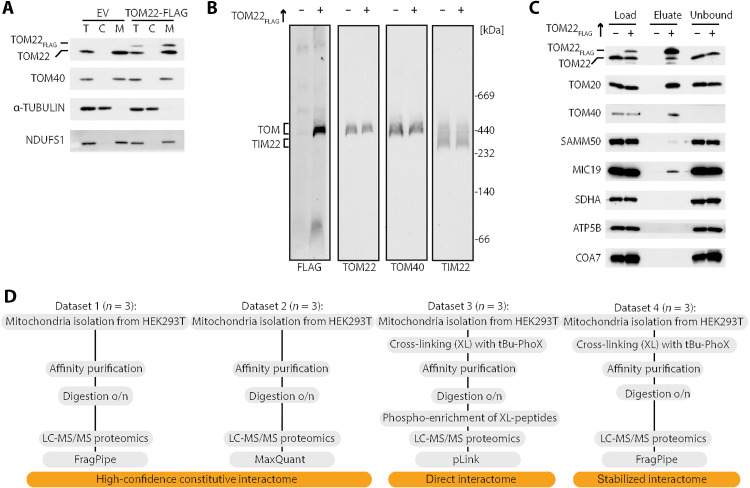
实验目的:获得正确定位、正确组装、接近生理状态的人源TOM复合物,用于后续相互作用组分析。方法细节:选择TOM22作为钓饵蛋白,因为其在TOM复合物中处于中心位置,物种间高度保守,构建C端FLAG标签标记的TOM22表达质粒,转染人胚肾HEK293T细胞,通过调整质粒转染量优化表达水平避免过表达导致的错误定位、聚集等人工偏差,通过亚细胞组分分离验证TOM22-FLAG的线粒体定位,通过蓝绿温和聚丙烯酰胺凝胶电泳结合免疫印迹验证TOM22-FLAG整合进入天然TOM复合物,随后从分离得到的线粒体中,使用抗FLAG琼脂糖珠进行亲和纯化,通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳结合免疫印迹验证纯化效果。结果解读:亚细胞组分分离结果显示TOM22-FLAG特异性富集在线粒体组分,定位正确(n=3);蓝绿温和聚丙烯酰胺凝胶电泳结果显示,FLAG标记的TOM22与内源TOM22、TOM40共同迁移在~440 kDa位置,符合组装完成的TOM核心复合物的预期分子量,证实标记的TOM22正确整合进入天然复合物(n=3);亲和纯化洗脱液的电泳结果显示,TOM22-FLAG成功富集,核心亚基TOM40、TOM20都被稳定共纯化,同时还检测到分选组装 machinery成分SAM50和MICOS复合物亚基CHCHD3等潜在瞬时相互作用蛋白,证实纯化得到了完整且保留天然相互作用的TOM复合物(n=3)。文献未提及具体实验产品,领域常规使用分子克隆试剂、细胞转染试剂、亲和纯化树脂、电泳试剂等。
3.2 高置信度TOM复合物相互作用组的构建与鉴定
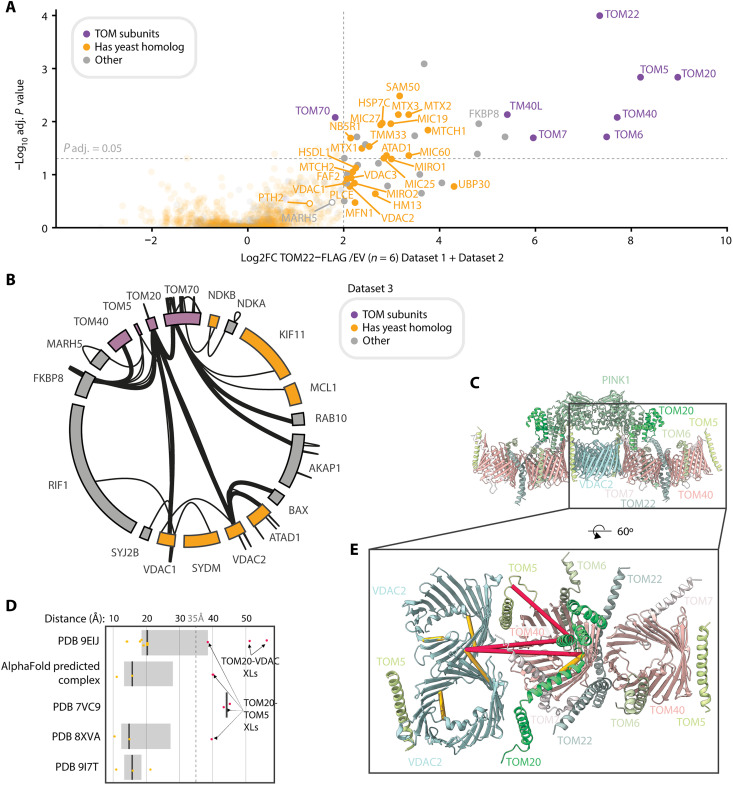
实验目的:系统鉴定人类TOM复合物的相互作用蛋白,同时捕获传统方法遗漏的瞬时相互作用。方法细节:设置两组平行实验,一组不对线粒体进行交联处理,一组使用膜通透性可富集交联剂叔丁基二琥珀酰亚胺苯基膦酸酯(tBu-Phox)处理分离的线粒体,对两组纯化产物分别进行液相色谱串联质谱分析,共获得6个生物学重复的数据集,以空载体转染作为对照,计算蛋白富集倍数,筛选高置信度相互作用蛋白,同时对交联样品的交联肽段进行富集分析,鉴定直接的蛋白-蛋白相互作用。结果解读:合并两个数据集共获得1665个蛋白的定量数据,所有已知核心TOM亚基(TOM40、TOM5、TOM6、TOM7、TOM20、TOM22)都显示出最高的富集倍数,同时还鉴定到TM40L为人类核心TOM亚基,该蛋白没有明确的酵母同源物;进化比对分析显示,人类TOM相互作用组和酵母存在大量重叠,包括线粒体输入 machinery复合物的MTCH1、MTCH2,分选组装 machinery复合物的SAM50、MTX1等,线粒体接触位点和嵴组织系统复合物的多个亚基,以及保守的质量控制蛋白USP30、ATAD1等;交联分析共鉴定到75个蛋白间交联(错误发现率1%),不仅验证了核心亚基间的相互作用,还捕获了TOM20与电压依赖性阴离子通道蛋白VDAC1、VDAC2的直接交联,交联距离分析提示TOM20存在构象柔性,这种柔性有助于TOM20动态结合多种底物前体(n=6)。推测:TOM20的构象柔性是其识别不同类型线粒体定位信号的结构基础。文献未提及具体质谱实验产品,领域常规使用液相色谱串联质谱系统、交联试剂、肽段富集材料等。
3.3 人类特异性TOM相互作用蛋白的筛选
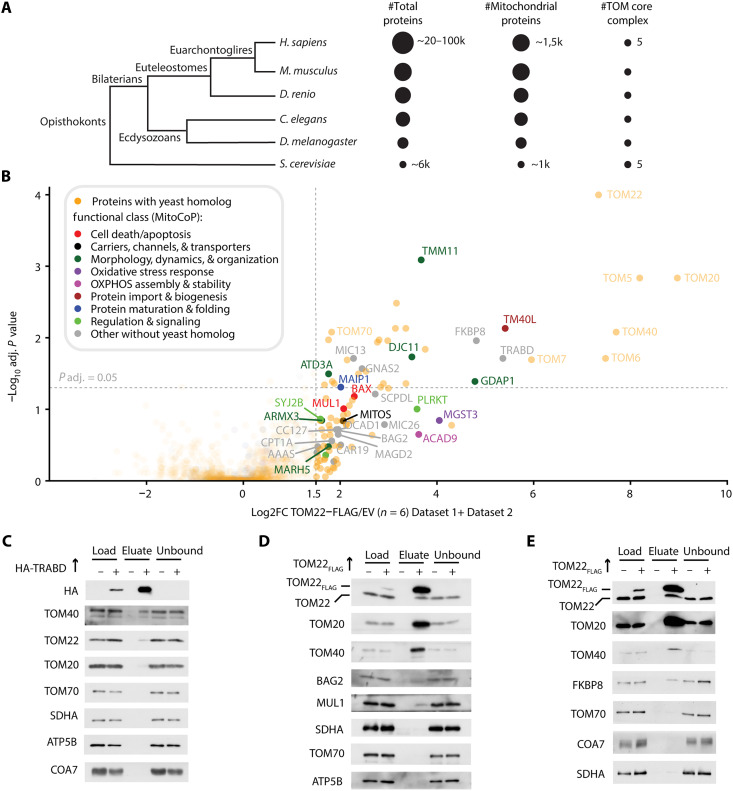
实验目的:发掘没有酵母同源物的人类特异性TOM相互作用蛋白,筛选潜在的新型调控因子。方法细节:将鉴定到的高置信度相互作用蛋白与已报道的酵母TOM相互作用组进行同源比对,筛选没有明确酵母同源的蛋白,通过免疫共沉淀结合免疫印迹验证候选相互作用的真实性。结果解读:共筛选到多个人类特异性相互作用蛋白,按功能可以分为线粒体形态动态调控、信号调控、细胞凋亡等类别,其中TRABD、线粒体泛素连接酶MUL1、Bcl-2相关抗凋亡蛋白2(BAG2)、FKBP8的富集倍数较高;免疫共沉淀验证显示,这些蛋白都能共富集TOM复合物核心组分,证实相互作用的真实性(n=2),其中FKBP8是之前未被报道的TOM相互作用蛋白,富集倍数与核心TOM亚基相当,是潜在的重要调控因子。实验所用关键产品:Sigma-Aldrich的抗FLAG琼脂糖珠(货号F1804),Proteintech的FKBP8抗体(货号11173-1-AP)。
3.4 FKBP8对TOM复合物稳定性的功能验证
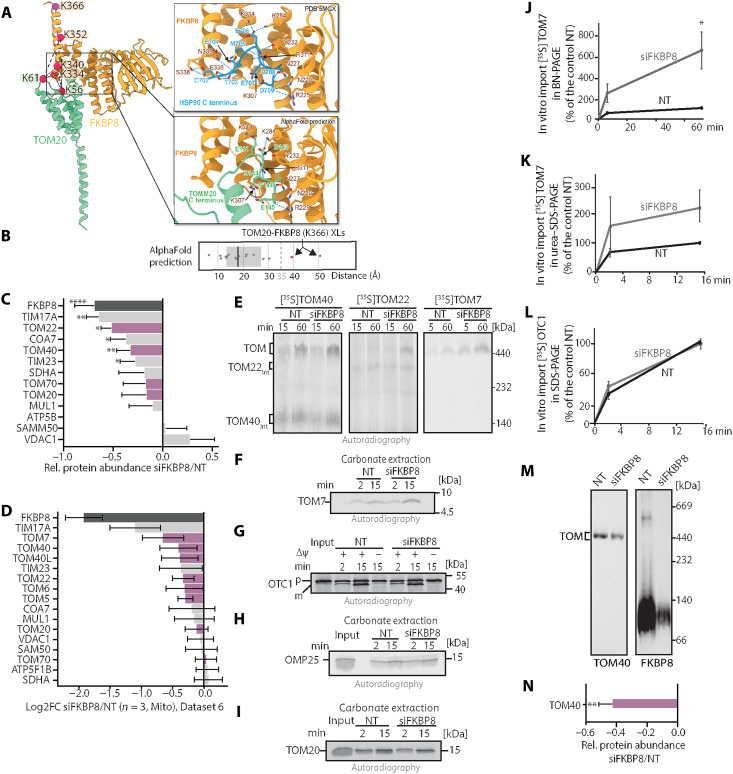
实验目的:明确FKBP8与TOM复合物的相互作用模式及生物学功能。方法细节:首先使用AlphaFold3模拟FKBP8与TOM20的结合结构,分析二者的结合模式;然后使用小干扰RNA敲低内源性FKBP8,通过免疫印迹检测TOM核心亚基的稳态水平,定量蛋白质组学分析全细胞和线粒体蛋白质组的变化,体外放射性标记前体蛋白输入实验检测TOM核心亚基的输入效率,蓝绿温和聚丙烯酰胺凝胶电泳检测TOM复合物整体组装水平。结果解读:结构模拟显示,FKBP8通过其三磷酸肌醇重复基序结合TOM20的C端,结合模式和FKBP8结合热休克蛋白90的模式高度相似,所有实验鉴定到的交联位点都在交联剂的有效作用范围内,证实相互作用的真实性;功能实验显示,敲低FKBP8后,TOM22蛋白水平降低约50%(n=3~5,P<0.01),TOM40降低约30%(n=3~5,P<0.05),核心TOM亚基的整体降低幅度显著高于其他线粒体蛋白;体外输入实验显示,敲低FKBP8后,TOM7的输入效率显著升高(n=3,P<0.05),而对照底物鸟氨酸转氨甲酰酶1、线粒体外膜蛋白25、TOM20的输入没有明显变化,说明FKBP8对TOM核心亚基的组装有选择性调控作用;蓝绿温和聚丙烯酰胺凝胶电泳显示,敲低FKBP8后,~440 kDa的组装型TOM复合物水平降低约40%(n=3,P<0.01),证实FKBP8是维持人类TOM复合物稳定性的重要调控因子。实验所用关键产品:QIAGEN的FKBP8小干扰RNA(货号SI03081477),Proteintech的FKBP8抗体(货号11173-1-AP)。
3.5 交联预处理对瞬时相互作用的富集效果分析
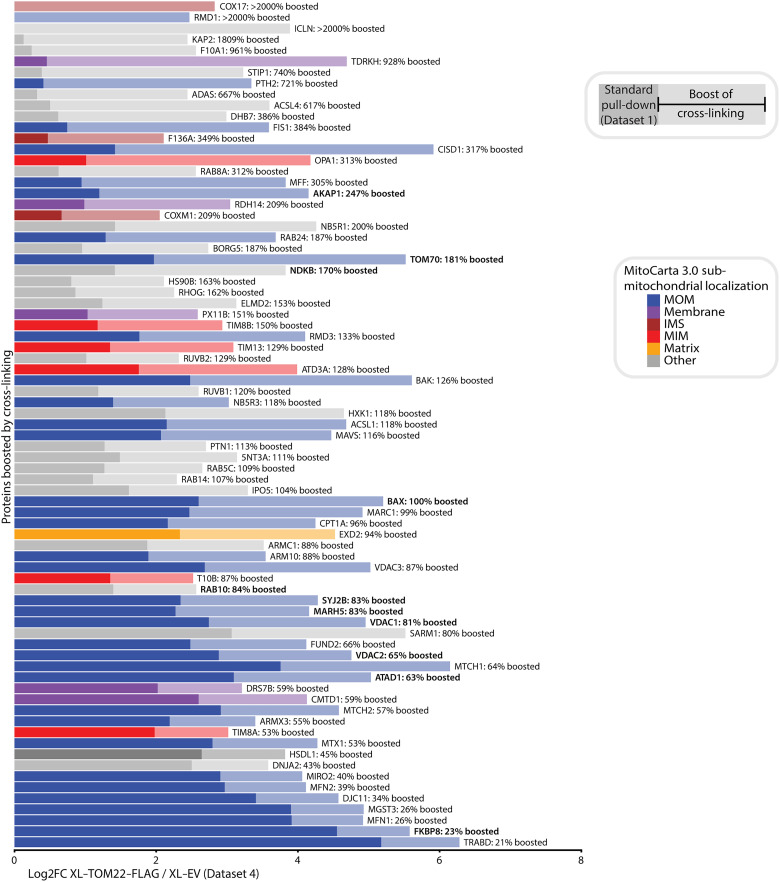
实验目的:验证交联预处理能够稳定捕获低亲和力、瞬时的TOM相互作用,证实本研究方法的优势。方法细节:对比交联预处理和非交联处理的蛋白富集倍数,计算交联带来的富集提升,结合MitoCarta3.0数据库注释分析富集蛋白的亚线粒体定位,分析富集提升幅度与蛋白丰度的相关性验证方法特异性。结果解读:交联预处理显著提升了多个瞬时相互作用蛋白的富集,其中TOM70的提升幅度最大,TOM70本身是松散结合TOM核心的受体,非交联处理中富集度很低,交联后富集度显著升高,证实方法能够有效稳定弱相互作用;在MitoCarta3.0注释的110个线粒体外膜蛋白中,26%被富集在本研究的TOM相互作用组中,交联后额外增加了13%的富集外膜蛋白,包括参与质量控制的人源PTH2,还有多个细胞质分子伴侣和共伴侣蛋白,这些都是从细胞质侧结合TOM的瞬时相互作用,传统方法很难捕获;分析显示富集提升幅度和线粒体蛋白丰度没有相关性,证实富集是特异性的相互作用捕获而非高丰度蛋白的非特异性结合。文献未提及具体产品,领域常规使用交联试剂tBu-Phox、生物信息学分析工具。
4. Biomarker 研究及发现成果
本研究未针对疾病诊断、预后相关的生物标志物开展筛选与临床验证,研究核心为解析人类TOM复合物的相互作用调控网络,发现了人类特异性的TOM复合物调控因子FKBP8。
本研究的核心发现可总结为:FKBP8是多疣动物特有的免疫亲和素,不存在酵母同源物,能够直接结合TOM复合物的多个核心亚基,通过促进或稳定TOM复合物组装维持其稳定性,敲低FKBP8后组装型TOM复合物水平降低40%(n=3,P<0.01),核心亚基TOM22稳态水平降低50%(n=3~5,P<0.01)。本研究首次明确了FKBP8在调控人类TOM复合物稳定性中的功能,揭示了人类TOM复合物存在比酵母更复杂的调控网络,该发现为线粒体蛋白质稳态异常相关疾病(如帕金森病等神经退行性疾病)的机制研究提供了新的靶点,产出的完整人类TOM相互作用组数据集也为领域后续研究提供了重要的公共资源。