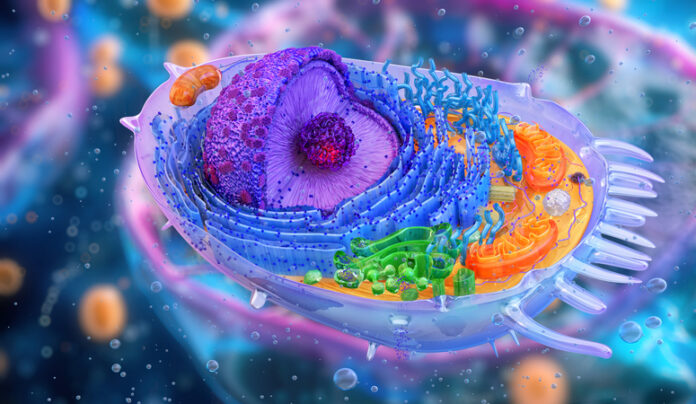
图注:人类细胞结构示意图,包含细胞核、细胞质、高尔基体、线粒体、核糖体、溶酶体、细胞膜等结构。[Quantic69/盖蒂图片社]
发表于《科学·信号传导》(Science Signaling)的一项新研究发现了受体酪氨酸激酶(receptor tyrosine kinase, RTK)信号通路中此前被忽视的调控节点,该调控节点并非位于细胞质膜,而是定位于高尔基体。这篇题为《高尔基体蛋白GOLPH3及其与MYO18A的相互作用驱动致癌受体酪氨酸激酶信号传导》的研究揭示,定位于高尔基体的蛋白GOLPH3与MYO18A协同作用,将RTK转运至细胞表面,进而决定多条生长因子信号通路的激活强度。
该项工作由凯斯西储大学医学院与加州大学圣地亚哥分校的Kyle Starost及其合作者牵头完成。研究结果解释了GOLPH3在人类癌症中频繁发生扩增、且其过表达与多种肿瘤不良预后相关的分子机制。
表皮生长因子受体(epidermal growth factor receptor, EGFR)、胰岛素受体、血小板衍生生长因子受体(platelet-derived growth factor receptor, PDGFR)等RTK是驱动多种肿瘤细胞增殖与存活的核心分子。尽管RTK抑制剂已在临床广泛应用,但患者常出现耐药性,因此亟需开发可调控受体上游信号的替代治疗策略。本研究就发现了这样一个上游调控节点:RTK从高尔基体向质膜的转运过程。
研究团队通过无偏信号通路分析发现,利用小干扰RNA(small interfering RNA, siRNA)敲低GOLPH3或MYO18A后,EGFR的Tyr¹⁰⁶⁸与Tyr¹⁰⁸⁶位点磷酸化水平下降,下游蛋白激酶B(AKT)与胞外调节蛋白激酶(extracellular regulated protein kinases, ERK)的信号激活也受到抑制。即使用药物阻断磷脂酰肌醇3-激酶(phosphatidylinositol 3-kinase, PI3K)/AKT/雷帕霉素靶蛋白(mammalian target of rapamycin, mTOR)信号通路后,上述信号缺陷仍然存在,说明GOLPH3直接作用于受体层面,而非通过调控mTOR发挥功能。
为明确具体调控机制,研究者开展了转运功能实验。内源性EGFR的成像结果显示,GOLPH3或MYO18A缺失会导致EGFR在胞内囊泡中累积,无法定位至细胞质膜。基于PDGFR-GFP的定量膜表面转运实验证实,两种蛋白均是高尔基体向细胞膜转运过程的必需分子。使用可破坏高尔基体结构的布雷菲德菌素A或高尔基体杀菌剂A处理细胞后,细胞膜表面的受体水平也出现类似下降,进一步佐证了GOLPH3-MYO18A复合物对RTK转运的关键作用。
过表达实验完善了该调控机制的全貌:提高GOLPH3或MYO18A的表达水平可增强EGF刺激诱导的EGFR与AKT磷酸化,而无法结合磷脂酰肌醇4-磷酸(PI4P)的GOLPH3突变体则无该效应。上述结果表明,GOLPH3-MYO18A复合物是决定细胞表面RTK丰度的核心调控因子。
作者在文中指出:“在我们检测的所有细胞类型与RTK受体中,定位于高尔基体的GOLPH3-MYO18A复合物均是RTK信号通路激活的必需元件,且是该过程的限速步骤。”该研究结果提示,靶向高尔基体转运机制可为依赖RTK信号过度激活、或已产生RTK抑制剂耐药性的肿瘤提供新的治疗方向。
专业注释
- GOLPH3:高尔基体驻留磷酸化蛋白,参与囊泡转运调控
- MYO18A:肌球蛋白家族成员,细胞骨架相关马达蛋白
- 无偏信号通路分析:不预设靶点的全局性信号分子检测策略