

期刊:Nature(IF 56.1,2025年度JCR)
发表日期:2026-09-30(线上)
第一/通讯作者单位:美国耶鲁大学医学院免疫生物学系(通讯:David G. Schatz;一作兼共同通讯:吴丽贞)
DOI:10.1038/s41586-026-11092-4
一句话结论
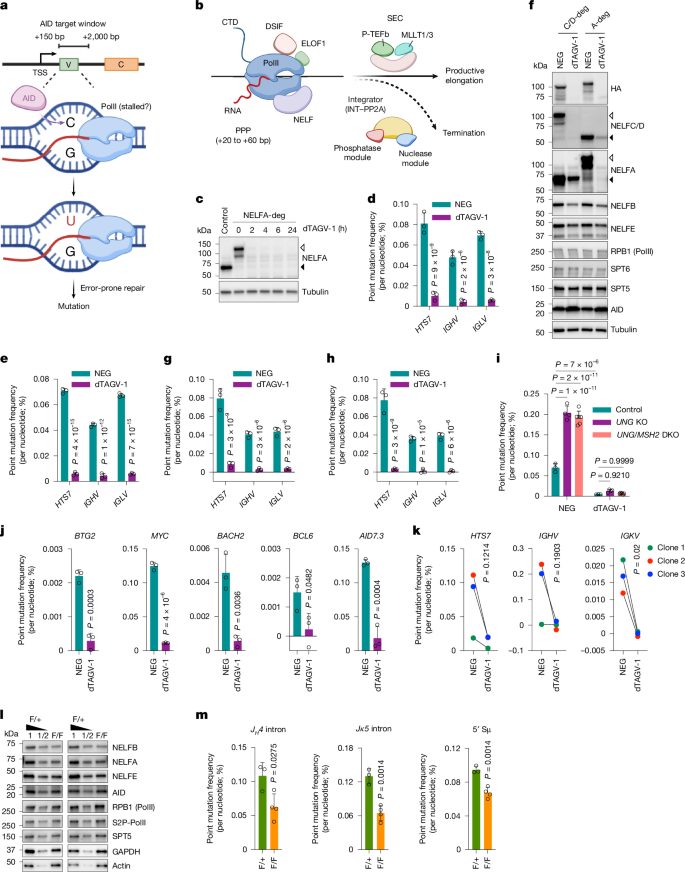
耶鲁大学Schatz团队发现,抗体亲和力成熟所需的“定点突变”依赖转录暂停因子NELF随RNA聚合酶II深入基因体,为突变酶AID创造可工作的停滞底物——这一SNAP模型解释了体细胞高频突变为何精准落在特定 DNA 区域的几十年悬案。
突变为何不越界?
疫苗和感染后,B细胞会在抗体基因可变区大量引入点突变,再筛出结合更牢的克隆——这叫体细胞高频突变(SHM)。催化它的酶是AID,但AID只在转录起始点下游约150bp到2kb的窗口内高效工作,而经典转录暂停发生在20-60bp处。位置对不上,是领域内几十年的困惑。
三层机制拼图
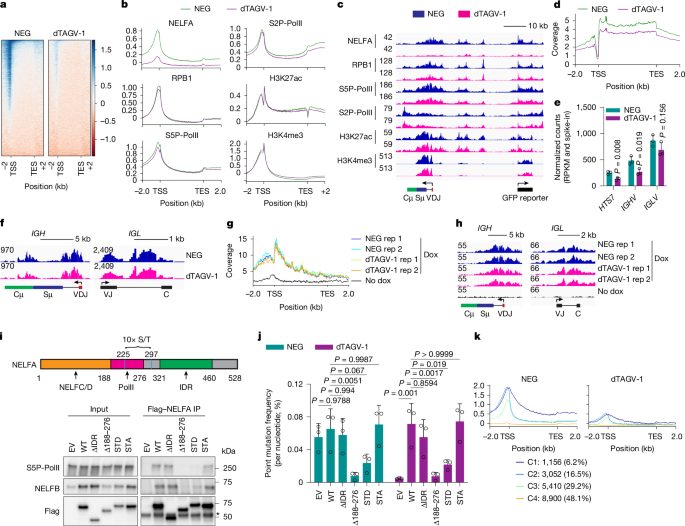
研究借助可诱导蛋白降解系统逐层拆解:第一层,NELF并非只在启动子附近“刹车”,它会随PolII进入基因体并覆盖突变窗口——去掉NELF,AID照常到岗、转录照常进行,突变却下降约一个数量级;第二层,SEC复合体组分MLLT1/MLLT3通过YEATS结构域与AID互作,负责把AID富集到靶点染色质;第三层,Integrator-PP2A磷酸酶模块失守时,SHM在一天内暴跌8-15倍。
为什么值得普通人关注
抗体的高亲和力不是天生的,是“改”出来的。理解这套编辑系统如何被精确约束,一方面解释了疫苗保护力从何而来,另一方面也关系着淋巴瘤等疾病中AID脱靶致突变的风险——同一个酶,既是免疫进化的功臣,也是潜在的基因组风险源。作者也坦承,证据主要来自细胞模型,生理状态下的验证仍在路上。
信息来源
- 论文:Transcription pause and elongation regulators mediate somatic hypermutation,Nature(2026-09-30线上发表)
- DOI:10.1038/s41586-026-11092-4
- 作者单位:耶鲁大学医学院免疫生物学系;通讯作者David G. Schatz,第一作者兼共同通讯吴丽贞
- IF参考:Nature 56.1(2025年度JCR)