

1. 领域背景与文献
文献英文标题:4-hydroxy-5-methyl-3(2H)-furanone mediates widespread interkingdom communications between fungi and prokaryotes;
发表期刊:未公开;影响因子:未公开;研究领域:微生物学-微生物跨界相互作用
微生物组是地球生态系统功能与宿主健康维持的核心组成部分,其中原核生物与真菌作为两大优势类群,广泛共存于土壤、食品、动物肠道、植物根际及多微生物感染位点等多种生境,二者的相互作用对生态系统稳态、宿主健康与疾病发生具有关键调控作用。目前,原核生物或真菌的种内相互作用机制已被广泛研究,但两者间的跨界相互作用,尤其是基于化学信号的通讯机制仍存在大量空白。现有研究已发现部分真菌代谢物可作为信号分子调控原核生物行为,如酿酒酵母分泌的4-羟基-5-甲基-3(2H)-呋喃酮(MHF)可模拟细菌群体感应分子AI-2被哈维弧菌感知,但MHF介导除弧菌外的真菌-原核生物相互作用尚未被系统探索;同时,原核生物中数量最多的胞外感知结构域dCache_1是否参与感知真菌信号也未见报道。针对这些研究空白,本研究聚焦MHF介导的真菌-原核生物跨界通讯,揭示其分子机制及广泛的生态分布,为理解微生物组相互作用网络提供新的理论依据。
2. 文献综述解析
作者对领域内现有研究的分类维度主要包括:按相互作用类型分为物理接触、营养相互作用、化学信号通讯;按信号分子类型分为群体感应分子、次生代谢物、氨基酸等;按感知机制分为不同类型的信号转导受体。
现有研究表明,真菌与原核生物可通过多种方式相互作用,其中化学信号通讯是调控跨界相互作用的关键方式之一。例如,白色念珠菌分泌的法尼醇可抑制铜绿假单胞菌的群体感应信号和毒力因子产生,铜绿假单胞菌的群体感应分子3-oxo-C12高丝氨酸内酯可抑制白色念珠菌的菌丝形成;酿酒酵母分泌的MHF可被哈维弧菌的AI-2受体LuxP感知,驱动生物发光。这些研究的优势在于揭示了特定真菌-原核生物对间的信号通讯机制,为理解跨界相互作用提供了案例,但也存在明显局限性:一是MHF仅在弧菌中被研究,未涉及其他原核生物类群;二是原核生物的dCache_1结构域是否参与感知真菌信号尚未有报道;三是现有研究未系统揭示MHF介导的跨界通讯网络的广泛性。
本研究通过对比现有研究的未解决问题,实现了多方面的创新:首次发现铜绿假单胞菌通过dCache_1结构域的趋化受体PctA和TlpQ感知真菌分泌的MHF,填补了原核生物dCache_1结构域感知真菌信号的空白;通过生物信息学分析和实验验证,证明MHF合成酶Cff1p在373个真菌属中广泛存在,MHF感知受体在23个细菌门和5个古菌门中广泛分布,首次构建了MHF介导的真菌-原核生物跨界通讯网络,系统揭示了MHF作为通用真菌信号的生态意义;解析了MHF与受体结合的高分辨率结构,阐明了分子结合机制,为后续开发调控跨界相互作用的工具提供了结构基础。
3. 研究思路总结与详细解析
本研究的整体研究目标是揭示真菌分泌的MHF介导与原核生物跨界通讯的分子机制及生态广泛性,核心科学问题包括:原核生物如何感知真菌分泌的MHF?MHF合成酶和感知受体的分布范围如何?MHF介导的跨界通讯网络具有怎样的结构和功能?技术路线遵循“现象观察→分子鉴定→机制解析→分布验证→网络构建”的闭环逻辑:首先验证铜绿假单胞菌对真菌的趋化性,筛选参与趋化的受体,鉴定趋化信号分子为MHF,解析MHF与受体的结合结构,再通过生物信息学和实验验证MHF合成酶在真菌中的分布和MHF感知受体在原核生物中的分布,最后构建并分析跨界通讯网络。
3.1 铜绿假单胞菌对真菌的趋化性验证
实验目的:验证铜绿假单胞菌是否对酿酒酵母和新生隐球菌产生趋化响应,明确真菌是否分泌可诱导原核生物趋化的信号分子。
方法细节:采用软琼脂平板梯度趋化实验,将铜绿假单胞菌PAO1接种于含真菌培养琼脂块或真菌培养上清的软琼脂平板,测量细菌接种位点到靠近真菌的菌落边缘距离(D1)和远离真菌的菌落边缘距离(D2),计算趋化响应指数RI=D1/(D1+D2);同时采用定量毛细管趋化实验,将真菌浓缩细胞上清装入毛细管,与铜绿假单胞菌悬液共孵育,检测迁移进入毛细管的细菌数量。
结果解读:软琼脂实验显示,铜绿假单胞菌对酿酒酵母CEN.PK113-5D和新生隐球菌H99的琼脂块及上清均有显著趋化响应,RI值大于0.52(n=3,P<0.0001),而真菌阴性对照(无真菌的MSB琼脂块或MSB培养基)的RI值在0.48-0.52之间,无趋化响应;定量毛细管实验显示,真菌浓缩细胞上清诱导的细菌迁移数显著高于阴性对照(n=5,P<0.0001),表明真菌分泌的代谢物是铜绿假单胞菌的趋化吸引物。

产品关联:文献未提及具体实验产品,领域常规使用微生物培养基(LB、M9、MSB、YPD等)、琼脂、分光光度计、毛细管等试剂/仪器。
3.2 趋化相关受体的筛选与验证
实验目的:筛选铜绿假单胞菌中参与感知真菌信号的趋化受体,明确介导趋化响应的关键分子。
方法细节:构建铜绿假单胞菌PAO1的26个预测趋化受体的单缺失突变体,通过定量毛细管趋化实验检测各突变体对真菌浓缩细胞上清的趋化响应;对趋化响应显著降低的突变体,构建双缺失突变体,并通过回补实验验证受体的功能。
结果解读:ΔpctA和ΔtlpQ突变体对真菌上清的趋化响应显著低于野生型(n=5,P<0.001),双缺失突变体ΔpctAΔtlpQ完全丧失趋化响应;回补pctA或tlpQ基因后,突变体的趋化响应恢复至野生型水平;软琼脂实验也显示ΔpctAΔtlpQ对真菌上清无趋化响应(RI值在0.48-0.52之间,n=3),表明PctA和TlpQ是介导铜绿假单胞菌对真菌趋化的关键趋化受体。
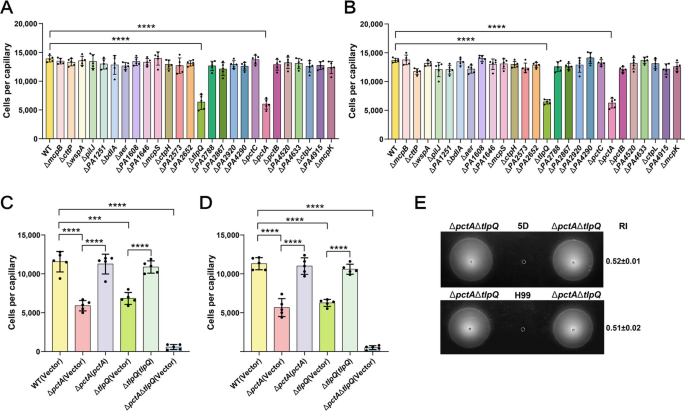
产品关联:文献未提及具体实验产品,领域常规使用基因编辑工具(如CRISPR-Cas9)、PCR试剂、质粒载体(pME6032)、抗生素等。
3.3 MHF作为趋化信号分子的鉴定
实验目的:鉴定真菌分泌的趋化信号分子,并验证其通过PctA和TlpQ介导趋化的机制。
方法细节:采用UPLC系统检测酿酒酵母和新生隐球菌培养上清中MHF的浓度,构建MHF合成酶Cff1p的缺失突变体(ΔCFF1),通过趋化实验验证突变体上清是否丧失诱导趋化的能力;检测铜绿假单胞菌对不同浓度MHF的趋化响应,以及PctA和TlpQ缺失突变体对MHF的响应;采用等温滴定量热法(ITC)检测MHF与PctA-LBD、TlpQ-LBD的结合亲和力。
结果解读:酿酒酵母和新生隐球菌在指数后期(培养12-14小时)分泌的MHF浓度达4.6-5.7μM(n=3);ΔCFF1突变体完全丧失MHF合成能力,其上清诱导铜绿假单胞菌趋化的能力显著低于野生型(n=5,P<0.0001),回补CFF1基因后趋化响应恢复;铜绿假单胞菌对1-1000μM浓度的MHF均有趋化响应,且ΔpctAΔtlpQ突变体对MHF无趋化响应;ITC显示MHF与PctA-LBD、TlpQ-LBD的结合解离常数Kd为0.29-0.36μM(n=3),表明MHF是PctA和TlpQ的高亲和力配体。

产品关联:实验所用关键产品:等温滴定量热仪(TA Instruments Nano ITC Standard Volume)、UPLC系统(Shimadzu LC-30A)、MHF标准品。
3.4 MHF与受体结合的结构解析
实验目的:解析MHF与PctA-LBD、TlpQ-LBD结合的分子机制,明确关键结合残基。
方法细节:通过X射线晶体学方法,解析PctA-LBD和TlpQ-LBD与MHF复合物的高分辨率结构;采用LigPlot+分析MHF与受体的相互作用,包括氢键、疏水相互作用、π-π堆积等;构建关键结合残基的点突变体,通过ITC验证突变体对MHF的结合亲和力变化。
结果解读:PctA-LBD的dCache_1结构域由N端长螺旋、膜远端模块和膜近端模块组成,MHF结合于膜远端模块的口袋中,通过氢键与Y121、R126、W128、A147等残基结合,疏水残基Y101、F109等提供稳定作用;TlpQ-LBD的MHF结合口袋以疏水和芳香相互作用为主,MHF的呋喃环与Y158形成π-π堆积,羰基氧与Y208形成氢键,E170、D210等残基参与塑造结合口袋;关键残基的点突变(如PctA的R126A、W128A,TlpQ的Y208A、D210A)显著降低MHF的结合亲和力(n=3,P<0.001),表明这些残基是MHF结合的关键位点。

产品关联:实验所用关键产品:上海同步辐射光源(SSRF)BL10U2光束线、X射线衍射仪、Pymol软件、LigPlot+软件、蛋白纯化树脂(GST-binding resin、Ni²⁺-NTA His-binding resin)。
3.5 MHF合成酶在真菌中的广泛分布验证
实验目的:验证MHF合成酶Cff1p在真菌中的分布及其功能保守性。
方法细节:通过BLASTP和HMMER分析NCBI非冗余蛋白数据库中真菌的Cff1p同源蛋白,筛选具有Cupin_5结构域的蛋白;通过WebLogo 3分析Cff1p的保守残基,构建保守催化残基(E44、H96)的点突变体;通过哈维弧菌MM32生物发光实验验证突变体的MHF合成能力,通过趋化实验验证突变体上清诱导铜绿假单胞菌趋化的能力。
结果解读:生物信息学分析显示,1447种真菌具有Cff1p同源蛋白,其中96.6%的蛋白保守E44残基,97.7%的蛋白保守H96残基;这些蛋白分布于子囊菌门、担子菌门、壶菌门和毛霉门的373个真菌属中;点突变E44A或H96A后,突变体丧失MHF合成能力,其上清诱导哈维弧菌生物发光的水平显著低于野生型(n=3,P<0.001),且无法诱导铜绿假单胞菌趋化(RI值在0.48-0.52之间,n=3),表明Cff1p的催化残基具有高度保守性,MHF合成能力在真菌中广泛存在。


产品关联:文献未提及具体实验产品,领域常规使用生物信息学工具(BLASTP、HMMER、WebLogo 3、iTOL)、基因编辑试剂、哈维弧菌MM32菌株等。
3.6 MHF感知受体在原核生物中的广泛分布验证
实验目的:验证原核生物中dCache_1结构域蛋白感知MHF的广泛性,明确其功能多样性。
方法细节:通过生物信息学分析InterPro数据库中原核生物的dCache_1结构域蛋白,筛选具有PctA保守结合残基(R126、W128、Y144、D146、D173)的蛋白;随机选取16种细菌和2种古菌的dCache_1蛋白,表达纯化后通过ITC检测其与MHF的结合亲和力;选取代表性的组氨酸激酶和c-di-GMP合酶,检测MHF对其酶活性的影响。
结果解读:生物信息学分析显示,7023种原核生物蛋白具有上述5个保守残基,分布于23个细菌门和5个古菌门中,其中变形菌门和厚壁菌门的蛋白数量最多;随机选取的18种蛋白均与MHF高亲和力结合,Kd为0.27-0.81μM(n=3);MHF可显著激活海洋生丝单胞菌的组氨酸激酶A0A1T5BG79的自激酶活性(n=3,P<0.01),以及自养新草螺菌的c-di-GMP合酶A0A0C2BP83的活性(n=3,P<0.001),表明MHF感知受体在原核生物中广泛分布,且具有多样的功能类型。

产品关联:实验所用关键产品:ITC仪器、SDS-PAGE凝胶、抗硫磷酸酯抗体(Abcam ab92570)、Bradford蛋白浓度测定试剂盒、HPLC系统。
3.7 MHF介导的跨界通讯网络构建
实验目的:构建MHF介导的真菌-原核生物跨界通讯网络,分析其结构和功能特征。
方法细节:基于MHF合成酶在真菌中的分布和MHF感知受体在原核生物中的分布,使用Cytoscape软件构建真菌属与原核生物属之间的通讯网络;分析不同真菌类群和原核生物类群在网络中的分布,以及不同类型受体的功能分布。
结果解读:通讯网络包含372个真菌属和593个原核生物属,其中子囊菌门的座囊菌纲、粪壳菌纲和担子菌门的伞菌纲是主要的MHF产生真菌类群,变形菌门和厚壁菌门是主要的MHF感知原核生物类群;趋化受体(MCPs)是网络中数量最多的受体类型,主要分布于变形菌门和厚壁菌门,其次是c-di-GMP合酶/磷酸二酯酶(DGCs/PDEs)和组氨酸激酶(HKs);部分原核生物属同时具有多种类型的MHF感知受体,表明这些原核生物可通过多种信号转导途径响应MHF,揭示了MHF介导的跨界通讯网络的广泛性和复杂性。

产品关联:实验所用关键产品:Cytoscape软件、iTOL工具。
4. Biomarker研究及发现成果解析
本研究中涉及的Biomarker包括真菌分泌的信号分子MHF、MHF合成酶Cff1p以及原核生物中的MHF感知受体(含dCache_1结构域的信号转导蛋白)。其中MHF作为核心信号Biomarker,其筛选逻辑为:通过趋化实验鉴定真菌分泌的趋化信号,结合代谢物检测和突变体验证确定为MHF;Cff1p作为MHF合成的功能Biomarker,筛选逻辑为生物信息学分析真菌基因组中的同源蛋白,结合保守残基验证其催化功能;dCache_1结构域蛋白作为MHF感知的功能Biomarker,筛选逻辑为生物信息学分析原核生物中具有PctA保守结合残基的蛋白,结合ITC实验验证其结合能力。
MHF来源于酿酒酵母、新生隐球菌等真菌的培养上清,在指数生长后期浓度可达4.6-5.7μM(n=3),通过UPLC系统定量检测;Cff1p的验证通过构建ΔCFF1突变体,证明其缺失导致MHF合成丧失,保守残基E44和H96的点突变也会丧失合成功能;MHF感知受体的验证通过ITC检测结合亲和力,18种代表性蛋白的Kd为0.27-0.81μM(n=3),表明其具有高亲和力结合能力;MHF的特异性在于其与受体的结合依赖保守的口袋残基,不同真菌的Cff1p和不同原核生物的dCache_1蛋白均具有保守的功能残基,保证了信号通讯的保守性。
MHF作为首个被发现的、由真菌广泛分泌的通用跨界通讯信号分子,介导真菌与原核生物间的广泛相互作用;Cff1p作为MHF的合成酶,在373个真菌属中存在,表明MHF的产生具有广泛的生态分布;MHF感知受体在23个细菌门和5个古菌门中分布,涵盖趋化受体、组氨酸激酶、c-di-GMP合酶等多种功能类型,表明MHF可调控原核生物的趋化、信号转导、第二信使合成等多种生理过程;本研究的创新性在于首次揭示原核生物通过dCache_1结构域感知真菌信号,系统构建了MHF介导的跨界通讯网络,为理解微生物组的相互作用机制提供了新的核心节点。统计学结果显示,所有实验数据均经过至少3次生物学重复,趋化实验、结合实验、酶活性实验等均具有显著的统计学差异(P<0.05),如ΔCFF1突变体上清的趋化响应显著降低(n=5,P<0.0001),MHF激活酶活性的实验中P<0.01或P<0.001,充分证明了结果的可靠性。