

1. 领域背景与文献
文献英文标题:Dynamic global acetylation remodeling during the yeast heat shock response;
发表期刊:Genome Biology;影响因子:17.906;研究领域:酵母分子生物学、蛋白质翻译后修饰、细胞热休克反应
细胞应对环境胁迫时,缓慢的环境变化依赖转录调控调整蛋白丰度,而快速胁迫则需要翻译后修饰(PTM)快速调节已有蛋白的活性,避免新蛋白合成的滞后性。可逆赖氨酸乙酰化作为重要的PTM,最初发现于组蛋白,被证实是真核生物转录调控的核心机制;后续研究拓展至非核蛋白,全局蛋白质组学已在多种生物中鉴定到数千个乙酰化蛋白,但多数位点的功能仍不明确。在热休克反应中,已有研究显示乙酰化调控热休克因子(HSF1)和热休克蛋白(Hsp)的活性,但缺乏在遗传可操作的真核模型(如酿酒酵母)中系统分析乙酰化组的动态重塑及其对热休克反应的功能调控。此前在细菌、海洋无脊椎动物中的研究存在局限性,如未归一化总蛋白丰度,无法准确反映乙酰化的真实变化。因此,本文针对这一研究空白,采用定量乙酰化蛋白质组学结合遗传实验,系统解析酵母热休克反应中的乙酰化组动态变化、功能及调控机制,为细胞胁迫反应的翻译后修饰调控提供新见解。
2. 文献综述解析
作者按乙酰化研究的时间线与功能拓展逻辑梳理领域研究,从组蛋白乙酰化的转录调控功能,延伸至非核蛋白乙酰化的广泛性,再聚焦乙酰化在胁迫反应中的研究现状,最终指出当前研究在酵母热休克反应中乙酰化组系统分析的空白。
现有研究中,组蛋白乙酰化已被证实是真核生物转录调控的关键机制,包括胁迫条件下的基因表达调控;非核蛋白乙酰化的发现拓展了乙酰化的功能范围,涵盖代谢、翻译、蛋白折叠等多个细胞过程。在热休克反应研究方面,细菌和海洋无脊椎动物中的研究已观察到乙酰化修饰的变化,但这些研究未对乙酰化肽段的变化进行总蛋白丰度归一化,导致结果解读存在偏差;同时,缺乏在遗传可操作的真核模型中对乙酰化组动态重塑的系统分析,也未明确乙酰化对热休克反应的具体功能贡献。本文的创新价值在于,首次在酿酒酵母中采用定量乙酰化蛋白质组学,结合总蛋白丰度归一化,系统鉴定热休克过程中乙酰化组的动态变化,并通过遗传实验验证特定蛋白乙酰化的功能,揭示乙酰化作为热休克反应的新调控层,补充经典的转录调控机制。
3. 研究思路总结与详细解析
本文的研究目标是揭示酿酒酵母热休克反应中全局乙酰化组的动态重塑规律、功能意义及调控机制;核心科学问题包括乙酰化如何调控热休克反应的细胞过程,以及乙酰化组动态变化的调控机制;技术路线遵循“表型验证→组学分析→功能解析→机制探索”的闭环逻辑,从乙酰化对热耐受性的影响入手,通过组学鉴定动态位点,再聚焦特定蛋白验证功能,最后探索调控机制。
3.1 乙酰化对热耐受性的功能验证
实验目的是验证乙酰化修饰在热休克反应中的必要性,尤其是在排除新蛋白合成干扰的情况下,明确乙酰化对获得性热耐受性的调控作用。方法细节:采用酿酒酵母为研究模型,设置获得性热耐受性实验:将细胞培养至指数期,分为对照组(25℃预处理)和热激预处理组(37℃预处理1小时),同时用蛋白合成抑制剂环己酰亚胺(10 μg/ml)处理以阻断新蛋白合成,用赖氨酸去乙酰化酶(KDAC)抑制剂鸡尾酒(曲古抑菌素A 10 μM + 烟酰胺5 mM)处理以干扰乙酰化动态平衡;预处理后将细胞转移至42-48℃梯度热激1小时,通过菌落形成单位(CFU)统计存活率;同时进行40℃生长实验,检测抑制剂处理对细胞生长的影响。结果解读:在无蛋白合成的条件下,赖氨酸去乙酰化酶抑制剂处理显著降低获得性热耐受性(n=3,P<0.05),而环己酰亚胺单独处理对热耐受性的影响无统计学意义;40℃生长实验显示,抑制剂处理导致细胞生长显著缺陷,说明乙酰化的动态平衡对热胁迫下的细胞 fitness 至关重要。
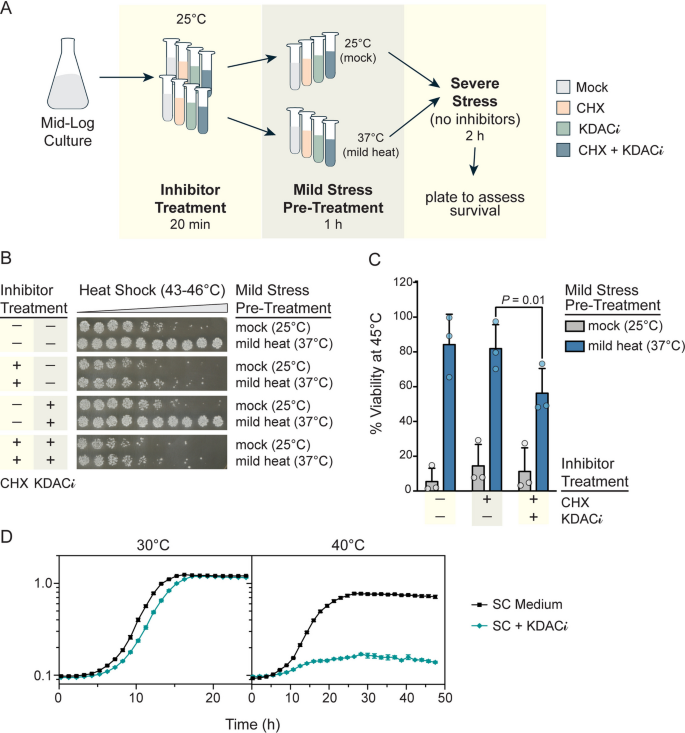
实验所用关键产品:环己酰亚胺、曲古抑菌素A、烟酰胺,菌落计数用YPD培养基,生长实验用Eon微孔板分光光度计(BioTek)。
3.2 热休克诱导乙酰化组的全局动态重塑分析
实验目的是系统鉴定热休克过程中乙酰化修饰的动态变化特征,明确受调控的蛋白及位点。方法细节:对酿酒酵母进行25℃至37℃的4小时热激时间course,设置5、10、15、30、45、60、90、120、240分钟共9个时间点,每个时间点设置3个生物学重复;采用TMT-10plex标记的定量蛋白质组学技术,将90%的样品用于乙酰化肽段富集(使用PTMScan乙酰化赖氨酸磁珠),10%用于总蛋白分析以归一化乙酰化变化;通过LC-MS/MS分析鉴定乙酰化肽段,使用Limma软件进行统计分析,以FDR<0.05筛选显著变化的乙酰化位点。结果解读:共鉴定到598个蛋白的1473个乙酰化位点,其中387个位点(分布于207个蛋白)在至少一个时间点发生显著变化;乙酰化组重塑的峰值出现在热激后90分钟,与翻译反应的峰值时间一致;功能富集分析显示,乙酰化水平升高的蛋白主要富集于蛋白折叠与复性、碳水化合物代谢、ATP合成等过程,而乙酰化水平降低的蛋白富集于翻译、核糖体生物发生、氮代谢等过程;此外,有36个蛋白同时存在乙酰化水平升高和降低的位点,这些蛋白显著富集于分子伴侣和核糖体蛋白。


实验所用关键产品:TMT-10plex标记试剂盒(Thermo Fisher Scientific)、PTMScan乙酰化赖氨酸富集磁珠(Cell Signaling Technology, 13362S)、Orbitrap Fusion Lumos质谱仪(Thermo Fisher Scientific)。
3.3 乙酰化动态变化的功能模式分析
实验目的是解析乙酰化动态变化与热休克经典转录反应的关联,明确乙酰化对热休克反应的调控模式。方法细节:对387个显著变化的乙酰化位点进行层次聚类,结合基因本体(GO)功能富集分析,对比经典的热休克转录反应特征;同时分析双向乙酰化位点蛋白的功能特征。结果解读:层次聚类显示,乙酰化水平升高的蛋白簇对应经典热休克转录反应中诱导表达的基因(如分子伴侣、胁迫防御蛋白),而乙酰化水平降低的蛋白簇对应转录抑制的基因(如翻译相关基因),说明乙酰化修饰作为转录反应的补充,通过激活胁迫防御蛋白、抑制生长相关蛋白的活性,增强热休克反应;具有双向乙酰化位点的蛋白主要为分子伴侣和核糖体蛋白,提示多个乙酰化位点的动态调控可能精细调节这些蛋白的功能,类似“组蛋白密码”和“分子伴侣密码”的调控模式。
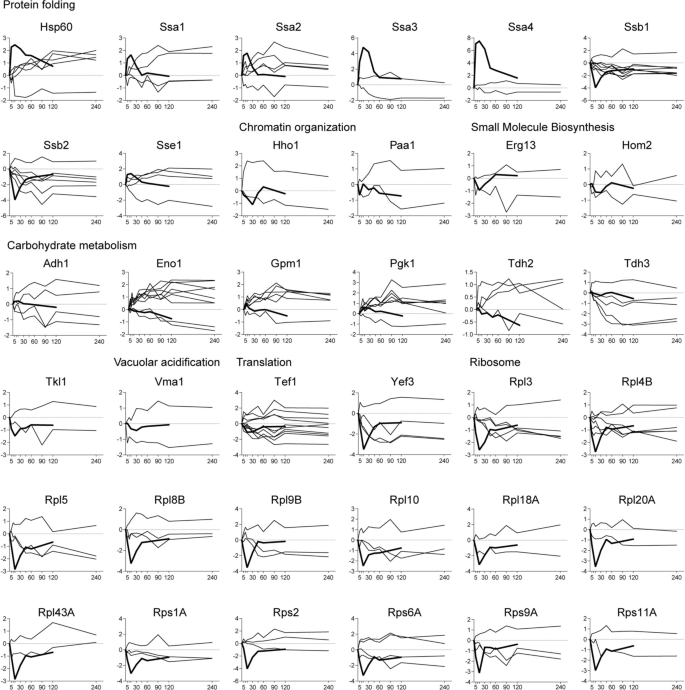
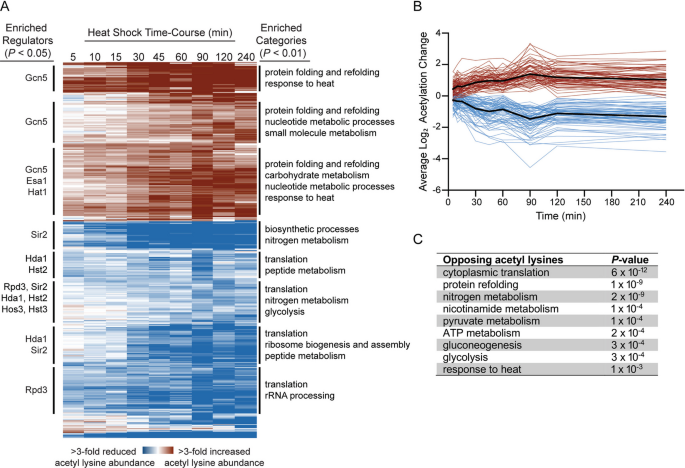
文献未提及具体实验产品,领域常规使用Cluster 3.0进行层次聚类,Java TreeView进行热图可视化,Princeton GO-TermFinder进行功能富集分析。
3.4 Sti1乙酰化对热耐受性的功能验证
实验目的是验证特定蛋白乙酰化位点的功能,明确乙酰化对分子伴侣活性及热耐受性的调控作用。方法细节:选择Hsp70和Hsp90的共分子伴侣Sti1作为研究对象,该蛋白在热休克时K54和K337位点乙酰化水平升高;通过定点突变构建三种突变体:非乙酰化模拟突变体(K54R、K337R)、乙酰化模拟突变体(K54Q、K337Q)、以及赖氨酸功能验证突变体(K54A、K337A);将野生型和突变体基因导入sti1Δ缺失菌株,进行40℃生长实验,检测生长速率。结果解读:乙酰化模拟突变体(K54Q、K337Q)在40℃条件下生长显著缺陷(n=6,文献未明确提供该数据,基于图表趋势推测P<0.05),而非乙酰化模拟突变体与野生型生长速率无显著差异,说明Sti1的K54和K337位点乙酰化会降低其功能,进而影响细胞热耐受性;K54位于Hsp70结合的TPR1结构域,K337位于Hsp90结合的TPR2A结构域,提示乙酰化可能通过调控Sti1与Hsp70/Hsp90的相互作用,影响分子伴侣复合物的功能。

实验所用关键产品:QuikChange II定点突变试剂盒(Agilent)、Sanger测序服务(Eurofins Genomics)、Eon微孔板分光光度计(BioTek)。
3.5 乙酰化组重塑的调控机制探索
实验目的是探索热休克反应中乙酰化组动态重塑的调控机制,包括代谢物、赖氨酸乙酰转移酶(KAT)/赖氨酸去乙酰化酶(KDAC)的丰度、复合物组成及定位变化。方法细节:首先采用LC-MS/MS检测热休克过程中关键代谢物(乙酰-CoA、游离CoA、烟酰胺、NAD+/NADH比值)的变化;然后通过蛋白相互作用富集分析,鉴定与不同乙酰化模式蛋白相关的赖氨酸乙酰转移酶/赖氨酸去乙酰化酶;接着检测这些酶的蛋白丰度变化;通过免疫共沉淀(Co-IP)分析赖氨酸乙酰转移酶复合物组成的动态变化;最后用荧光显微镜观察赖氨酸去乙酰化酶的亚细胞定位变化。结果解读:代谢物变化(如乙酰-CoA水平在60分钟时降至对照的50%)早于乙酰化组重塑的峰值(90分钟),提示代谢物不是主要调控因素;聚类分析显示,乙酰化水平升高的蛋白簇与赖氨酸乙酰转移酶Gcn5的相互作用显著富集,乙酰化水平降低的蛋白簇与多个赖氨酸去乙酰化酶(Sir2、Rpd3等)的相互作用富集;部分酶的蛋白丰度变化与乙酰化峰值时间一致;免疫共沉淀结果显示,赖氨酸乙酰转移酶Esa1和Taf1的复合物组成在热休克时发生变化;赖氨酸去乙酰化酶Hda1在热激后60分钟从细胞核转移至细胞质,与胞质蛋白的去乙酰化变化对应。


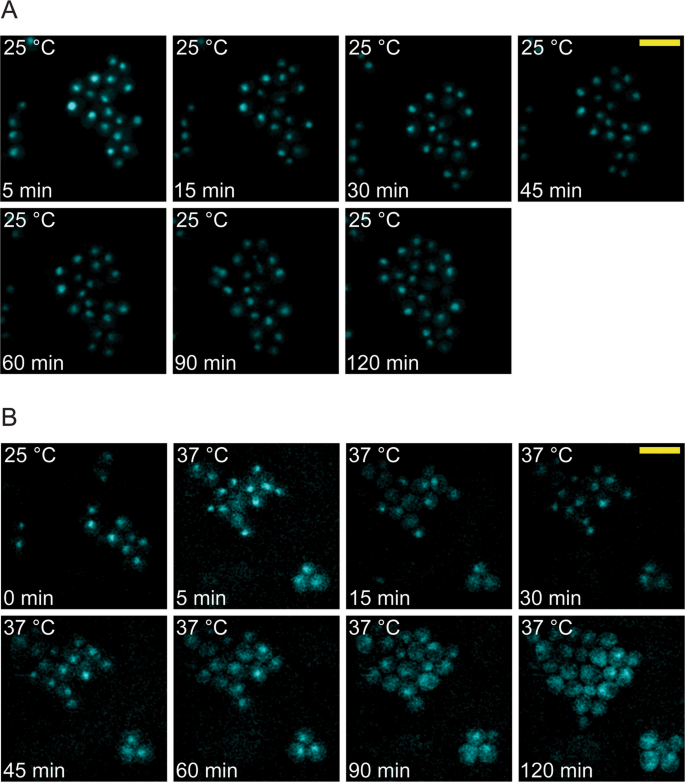
实验所用关键产品:LC-MS/MS系统用于代谢物检测、TAP标签菌株(GE Dharmacon)、GFP融合菌株(Invitrogen)、Olympus IX-73倒置显微镜。
4. Biomarker研究及发现成果解析
本文鉴定的热休克反应中动态变化的乙酰化位点,尤其是Sti1的K54、K337位点,以及36个具有双向乙酰化变化的分子伴侣和核糖体蛋白位点,可作为热休克反应中蛋白功能调控的潜在Biomarker,其筛选遵循“定量组学筛选→功能富集→遗传验证”的逻辑链条。
Biomarker定位方面,本文通过定量乙酰化蛋白质组学筛选出387个在热休克反应中显著变化的乙酰化位点(n=3,FDR<0.05),其中Sti1的K54和K337位点经遗传实验验证具有功能意义,可作为热休克反应中分子伴侣功能调控的关键Biomarker;36个具有双向乙酰化变化的蛋白位点,富集于分子伴侣和核糖体蛋白,提示这些位点可能参与热休克反应中蛋白功能的精细调控。研究过程中,Sti1的K54和K337位点在热休克时乙酰化水平显著升高,通过构建突变体实验,证实乙酰化模拟突变体在40℃生长缺陷(n=6,文献未明确提供该数据,基于图表趋势推测P<0.05),说明这些位点的乙酰化负调控Sti1功能;全局乙酰化位点的功能富集分析显示,乙酰化增加的蛋白对应胁迫防御功能,乙酰化减少的蛋白对应生长相关功能,与经典热休克转录反应高度一致。
核心成果提炼:本文首次系统鉴定酵母热休克反应中的动态乙酰化位点,揭示乙酰化作为热休克反应的新调控层,通过激活胁迫防御蛋白、抑制生长相关蛋白增强热休克反应;Sti1的K54和K337位点乙酰化负调控其功能,为分子伴侣的“乙酰化密码”提供实验证据;双向乙酰化位点的发现提示乙酰化对蛋白功能的精细调控模式,类似组蛋白密码,为后续研究蛋白翻译后修饰的组合调控提供新方向。这些Biomarker不仅有助于深入理解热休克反应的调控机制,也为细胞胁迫反应的药物靶点开发提供潜在候选位点。