1. 领域背景与文献
文献英文标题:Dental pulp stem cells maintain epigenetic chromatin architecture remodeling primed by the etiological stimulus of biliary atresia
发表期刊:未公开;影响因子:未公开;研究领域:小儿肝胆疾病、表观遗传学、干细胞生物学
胆道闭锁是一种罕见的先天性胆管疾病,以胆管闭塞和进行性肝纤维化为特征,若不治疗,患儿会在2岁前因终末期肝病死亡,Kasai肝门空肠吻合术是目前主要治疗手段,但术后仍有多数患者需肝移植,预后较差。领域内研究显示,胆道闭锁的病因涉及遗传、围产期感染、自身免疫反应等多个方面,已发现ADD3、GPC1等多个基因与疾病风险相关,但家族遗传证据不足,提示非遗传因素可能起关键作用。围产期病毒感染(如巨细胞病毒)和自身免疫反应引发的胆管上皮损伤被认为是重要诱因,炎症刺激可能通过表观遗传修饰在细胞中留下记忆,但胆道闭锁中干细胞的表观遗传调控机制尚未明确。此外,肝祖细胞的分化异常与胆道形成缺陷密切相关,HNF6-TGFBR2轴在胆管发育中起核心调控作用,但该轴在胆道闭锁中的异常机制仍不清楚。
本研究利用胆道闭锁特异性乳牙牙髓干细胞(BA-SHED)作为模型,这类干细胞与胆管祖细胞在胚胎发育中平行分化,此前已被发现存在胆管形成缺陷和DNA低甲基化特征。研究旨在探究BA-SHED中存在的表观遗传记忆及其与胆管形成缺陷的关联,填补胆道闭锁表观遗传机制研究的空白,为疾病病因解析提供新的细胞模型,同时为潜在治疗靶点的发现奠定基础。
2. 文献综述解析
作者对领域内现有研究的分类维度涵盖病因机制(遗传、感染/炎症)、细胞分化调控(肝祖细胞命运决定)、表观遗传修饰三个层面。在病因机制方面,现有研究已鉴定出多个与胆道闭锁风险相关的基因,但家族遗传模式不支持单基因致病,围产期病毒感染和自身免疫反应引发的胆管炎症损伤被认为是重要诱因,不过炎症如何导致长期胆管损伤的机制尚未明确。在细胞分化调控层面,肝祖细胞向胆管上皮细胞的分化由HNF6、TGFB等信号轴调控,HNF6可通过调控TGFBR2表达影响胆管形成,但该轴在胆道闭锁中的异常表达及调控机制尚未被揭示。在表观遗传修饰方面,已有研究表明炎症刺激可在细胞中留下表观遗传印记,但胆道闭锁中干细胞的表观遗传记忆研究仍处于空白阶段,缺乏对染色质结构重塑等深层机制的解析。
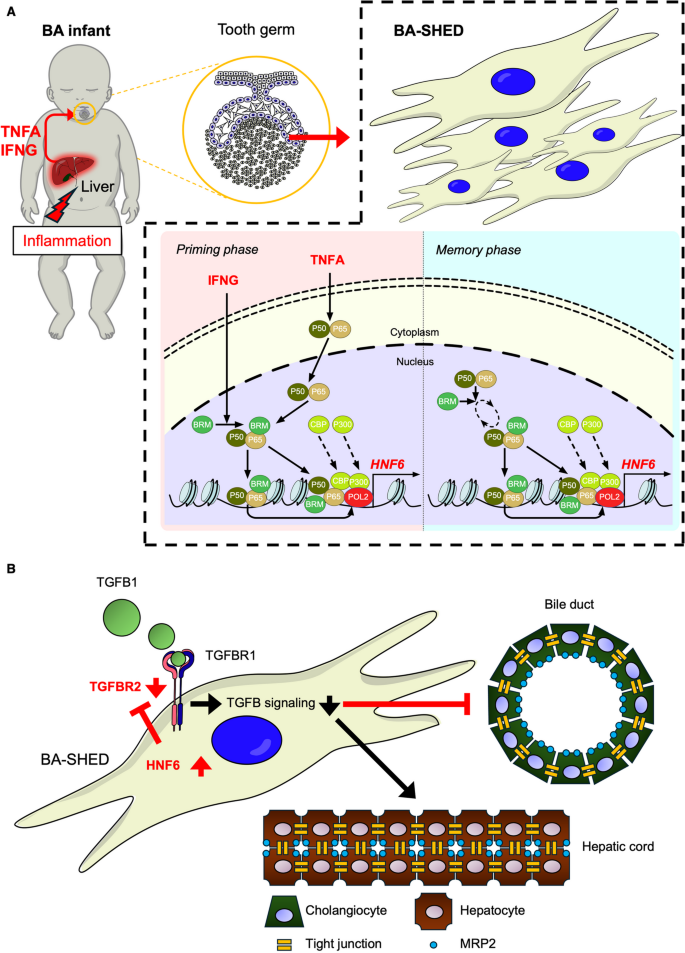
本研究的创新价值在于首次利用BA-SHED模型,将炎症刺激与表观遗传染色质重塑机制关联,揭示了胆道闭锁中干细胞存在的可遗传表观遗传记忆:TNF-α和IFN-γ共刺激引发的BRM-P65复合物介导的HNF6启动子区染色质开放,导致HNF6持续高表达,进而抑制TGFBR2,最终造成胆管形成缺陷。这一发现不仅明确了胆道闭锁的表观遗传致病机制,还为疾病研究提供了新的细胞模型,突破了现有研究仅聚焦肝脏局部细胞的局限,拓展了胆道闭锁病因研究的视角。
3. 研究思路总结与详细解析
本研究的整体目标是解析BA-SHED中表观遗传记忆调控胆管形成缺陷的分子机制,核心科学问题为BA-SHED中HNF6-TGFBR2轴异常表达的表观遗传调控机制,技术路线遵循“细胞模型构建→功能验证→分子机制解析→体内外验证”的闭环逻辑:首先分离并验证BA-SHED与健康对照SHED(CTRL-SHED)的细胞特性,体内外验证其胆管形成能力差异;随后分析两者中HNF6与TGFBR2的表达关联,通过基因过表达、沉默及炎症刺激模型验证分子调控关系;再利用表观遗传技术解析HNF6启动子区的染色质重塑机制;最后在体内外模型中验证表观遗传异常对胆管形成的功能影响。
3.1 BA-SHED分离与细胞特性验证
实验目的是获取胆道闭锁患者及健康儿童的乳牙牙髓干细胞,并验证其干细胞及神经嵴细胞特性,为后续研究奠定细胞模型基础。方法上,采用集落形成单位成纤维细胞(CFU-F)法,从6-8岁胆道闭锁患者和健康儿童的脱落乳牙牙髓组织中分离干细胞,通过流式细胞术检测间充质干细胞标志物(CD105、CD73、CD90呈阳性表达,CD34、CD45等造血细胞标志物呈阴性),同时利用实时荧光定量聚合酶链反应(RT-qPCR)检测干细胞多能性标志物及神经嵴细胞特异性基因的表达。结果显示,BA-SHED与CTRL-SHED的间充质干细胞表面标志物表达特征一致,但BA-SHED的神经嵴细胞表面标志物(CD49D、CD56等)及特异性基因(KLF4、MYC等)表达水平显著低于CTRL-SHED,且其向脂肪、软骨、骨细胞分化的多能性也有所减弱(n=3,P<0.05)。实验所用关键产品:流式细胞术抗体(文献未明确具体品牌,领域常规使用BD、BioLegend等品牌的流式抗体)、RT-qPCR试剂(文献未明确具体品牌,领域常规使用Thermo Fisher Scientific、Takara等品牌的试剂)。
3.2 体内外胆管形成能力验证
实验目的是明确BA-SHED与CTRL-SHED在胆管形成能力上的差异,验证BA-SHED的胆管形成缺陷表型。体内实验中,将BA-SHED或CTRL-SHED输注到四氯化碳(CCl4)诱导的肝损伤小鼠体内,通过活体成像检测细胞归巢,酶联免疫吸附试验(ELISA)检测血清中人白蛋白水平,比色法检测直接胆红素水平,免疫组化检测肝脏中人类角蛋白18(KRT18,肝细胞标志物)和角蛋白19(KRT19,胆管细胞标志物)的表达。体外实验中,通过细胞因子序贯诱导将SHED分化为肝祖细胞样细胞,再经转化生长因子β1(TGFB1)刺激诱导胆管样细胞形成,利用免疫荧光检测胆管标志物(KRT19、MRP2、ZO-1)的表达,RT-qPCR检测胆管相关基因的表达,显微镜计数胆管样结构数量。结果显示,BA-SHED输注后可归巢至小鼠肝脏并分化为肝细胞样细胞,血清人白蛋白水平升高,但血清直接胆红素水平未降低,肝脏中未检测到KRT19阳性胆管结构;体外TGFB1刺激后,BA-SHED无法形成具有极性的胆管样结构,胆管相关基因(KRT19、MRP2、CLDN1等)表达显著低于CTRL-SHED(n=3/9,P<0.05)。

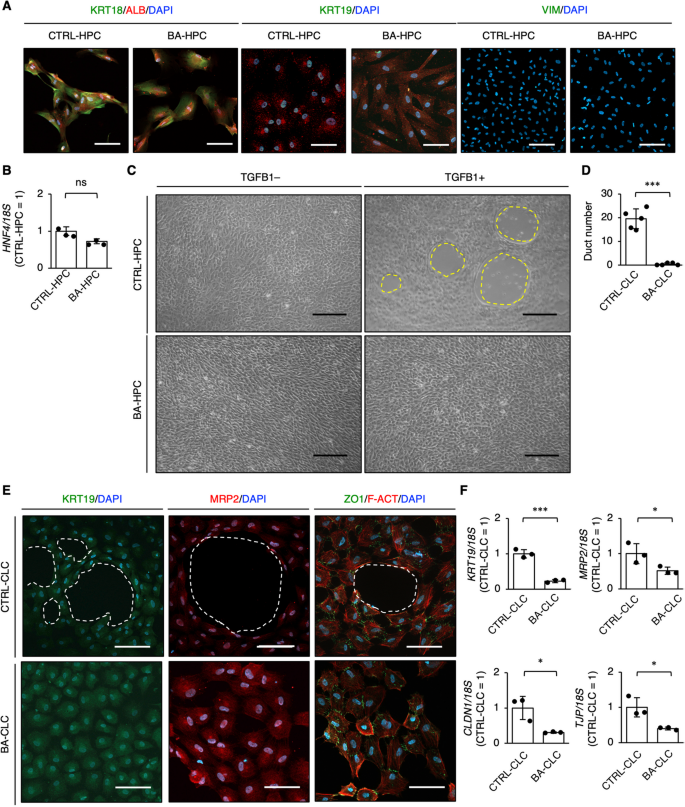
实验所用关键产品:四氯化碳(FUJIFILM Wako Pure Chemicals)、重组人TGFB1(Thermo Fisher Scientific)、免疫组化及免疫荧光抗体(文献未明确具体品牌,领域常规使用Abcam、Cell Signaling Technology等品牌的抗体)。
3.3 HNF6与TGFBR2表达调控验证
实验目的是解析BA-SHED中HNF6与TGFBR2的表达关联,明确HNF6对TGFBR2的调控作用。方法上,首先通过RT-qPCR、免疫印迹、免疫荧光检测BA-SHED与CTRL-SHED中肝细胞核因子6(HNF6)和转化生长因子β受体2(TGFBR2)的mRNA及蛋白表达水平;随后构建HNF6转录激活的CTRL-SHED模型(taHNF6-SHED),利用慢病毒激活颗粒实现HNF6的持续过表达,同时利用小干扰RNA(siRNA)沉默BA-SHED中的HNF6表达,检测两种模型中TGFBR2的表达变化。结果显示,BA-SHED中HNF6的mRNA及核蛋白表达水平显著升高,而TGFBR2的表达显著降低;taHNF6-SHED中TGFBR2的表达被显著抑制,而沉默HNF6的BA-SHED中TGFBR2的表达得到恢复(n=3,P<0.05),证实HNF6可负向调控TGFBR2的表达。
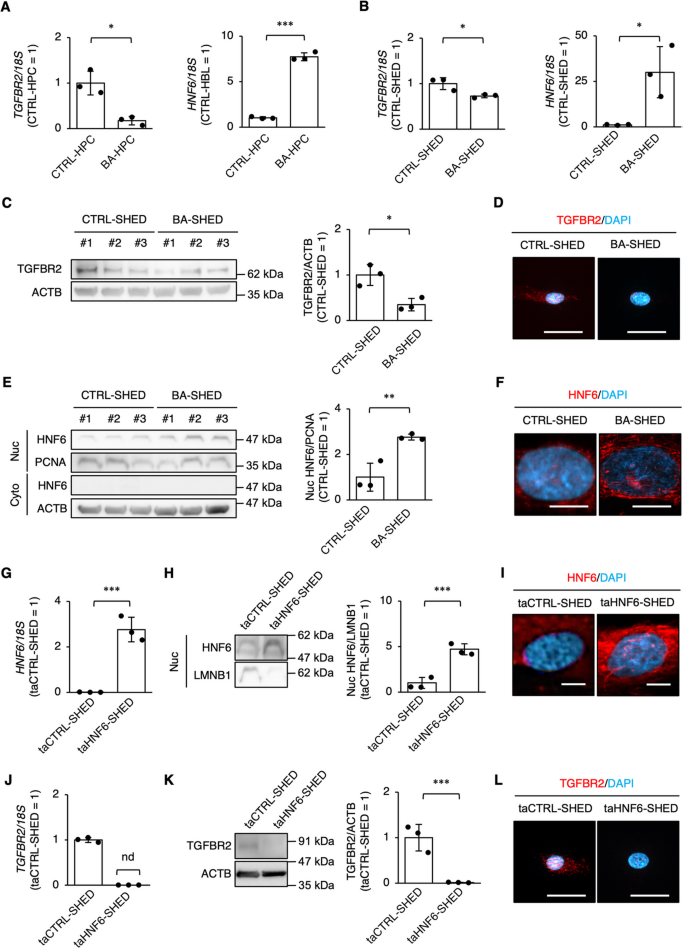
实验所用关键产品:HNF6慢病毒激活颗粒(Santa Cruz Biotechnology,货号sc-401082-LAC)、HNF6 siRNA(Santa Cruz Biotechnology,货号sc-61254)、免疫印迹抗体(文献未明确具体品牌,领域常规使用Cell Signaling Technology等品牌的抗体)。
3.4 炎症刺激对HNF6表达及胆管形成的影响
实验目的是验证肿瘤坏死因子-α(TNF-α)和干扰素-γ(IFN-γ)共刺激是否可模拟BA-SHED的表观遗传特征及胆管形成缺陷表型。方法上,用不同浓度的TNF-α和IFN-γ单独或共处理CTRL-SHED,24小时后检测HNF6的表达水平;将处理后的细胞传代,检测HNF6表达的可遗传性;随后在体内外模型中验证处理后细胞的胆管形成能力。结果显示,100ng/mL TNF-α与IFN-γ共处理可显著升高CTRL-SHED中HNF6的mRNA及蛋白表达水平,且该高表达可遗传至传代后的细胞;体内输注共处理后的细胞后,小鼠血清直接胆红素水平未降低,肝脏中未形成KRT19阳性胆管结构;体外TGFB1刺激后,共处理后的细胞无法形成极性胆管样结构,胆管相关基因表达显著降低(n=3/9,P<0.05),其表型与BA-SHED一致。
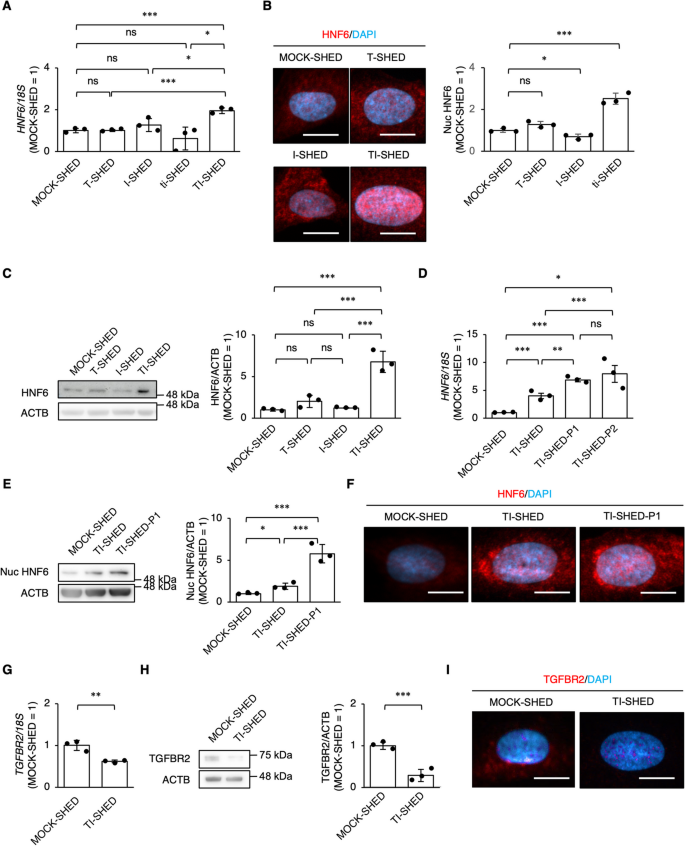
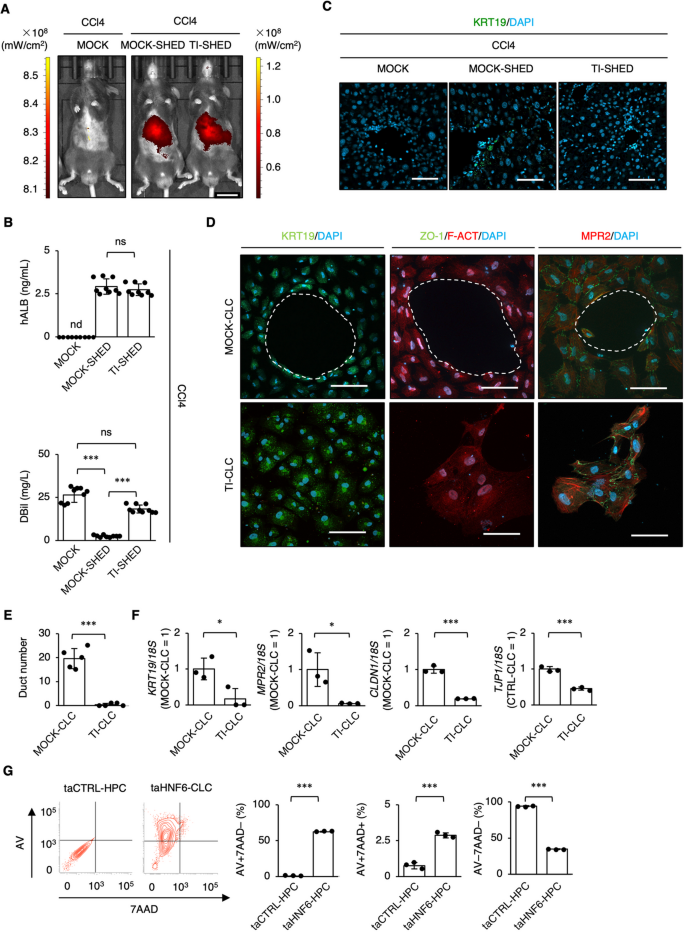
实验所用关键产品:重组人TNF-α(Thermo Fisher Scientific,货号300–01A)、重组人IFN-γ(Thermo Fisher Scientific,货号AF-300-02)。
3.5 表观遗传机制解析
实验目的是探究BA-SHED中HNF6持续高表达的表观遗传调控机制,明确染色质结构重塑及相关蛋白复合物的作用。方法上,利用核酸酶可及性染色质-qPCR(ANAC-qPCR)检测HNF6启动子区的染色质开放性,通过染色质免疫沉淀-qPCR(ChIP-qPCR)检测布拉hma(BRM)、核因子κB(NF-κB)亚基P65等蛋白在HNF6启动子区的结合富集情况,同时采用亚硫酸氢盐焦磷酸测序检测HNF6启动子区的DNA甲基化水平。结果显示,BA-SHED及TNF-α/IFN-γ共处理的细胞中,HNF6启动子区特定区域的染色质呈开放状态,BRM与P65复合物在该区域的结合显著富集,而DNA甲基化水平无显著变化(n=3,P<0.05),表明染色质结构重塑而非DNA甲基化调控了HNF6的持续激活。
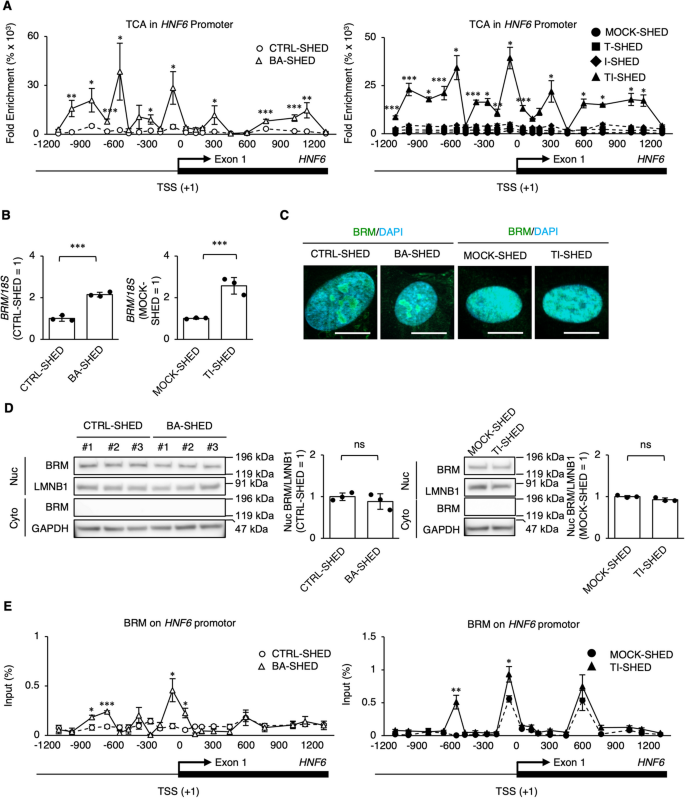
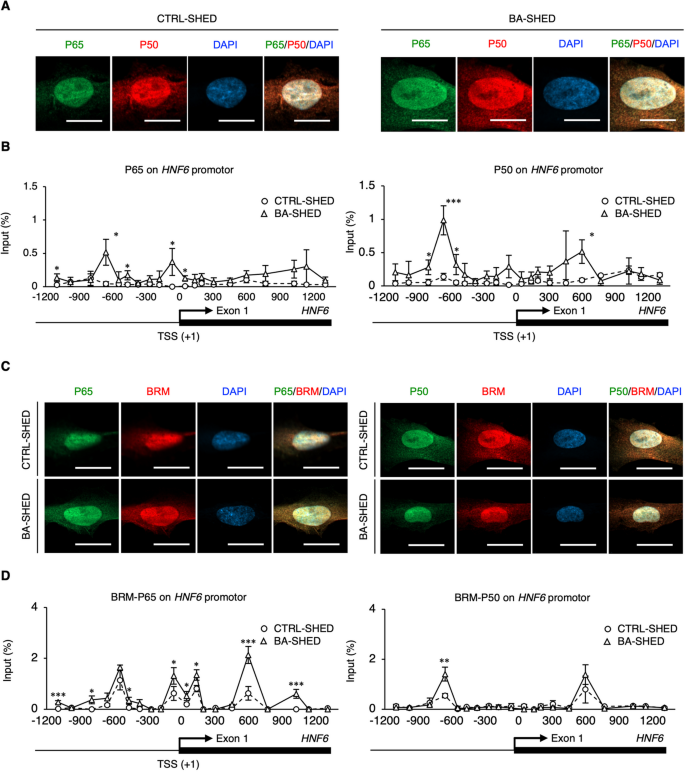
实验所用关键产品:ANAC-qPCR试剂盒(Epigentek)、ChIP试剂盒(Merck,货号EZ-Magna CHIP A/G kit)、亚硫酸氢盐焦磷酸测序试剂(Qiagen)。
4. Biomarker研究及发现成果解析
本研究中鉴定的核心表观遗传调控分子为肝细胞核因子6(HNF6),其作为胆道闭锁相关的表观遗传记忆标志物,筛选与验证逻辑为:首先通过BA-SHED与CTRL-SHED的表达差异筛选出HNF6,随后通过基因过表达、沉默模型验证其对TGFBR2及胆管形成的调控作用,再利用炎症刺激模型模拟BA-SHED的表观特征,最后通过表观遗传技术明确其启动子区的染色质重塑调控机制,形成完整的验证链条。
研究过程中,HNF6来源于BA-SHED的细胞核,验证方法包括RT-qPCR、免疫印迹、免疫荧光检测其在细胞中的表达水平,ChIP-qPCR检测BRM-P65复合物在其启动子区的结合富集情况,同时通过体内外模型验证其异常表达对胆管形成的功能影响。特异性方面,BA-SHED中HNF6的表达水平显著高于CTRL-SHED(n=3,P<0.05),且TNF-α与IFN-γ共刺激可特异性诱导CTRL-SHED中HNF6的高表达,单独刺激则无显著效果;敏感性方面,100ng/mL浓度的TNF-α与IFN-γ共刺激即可显著诱导HNF6的表达,且该表达可遗传至传代细胞。
核心成果方面,HNF6通过负向调控TGFBR2的表达,抑制胆道闭锁特异性牙髓干细胞的胆管形成能力,其持续高表达由BRM-P65复合物介导的HNF6启动子区染色质结构重塑维持,这一表观遗传异常具有可遗传性,是胆道闭锁病因中炎症刺激留下的表观记忆。本研究首次在胆道闭锁干细胞模型中揭示了这一表观遗传调控机制,为胆道闭锁的病因解析提供了新的分子靶点,同时BA-SHED作为疾病模型,为后续研究提供了新的工具。此外,研究未提供HNF6作为诊断或预后标志物的特异性、敏感性ROC曲线数据及风险比数据(文献未明确提供该数据,基于图表趋势推测)。