1. 领域背景与文献
文献英文标题:Functional analysis of the Dictyostelium Gα1 and Gα2 subunits reveals non-overlapping functions and potential interactions in cAMP signaling pathways;发表期刊:未明确标注,DOI:10.1186/s12860-025-00562-8;影响因子:未公开;研究领域:真核生物细胞趋化信号通路与发育生物学(以盘基网柄菌为模型)。
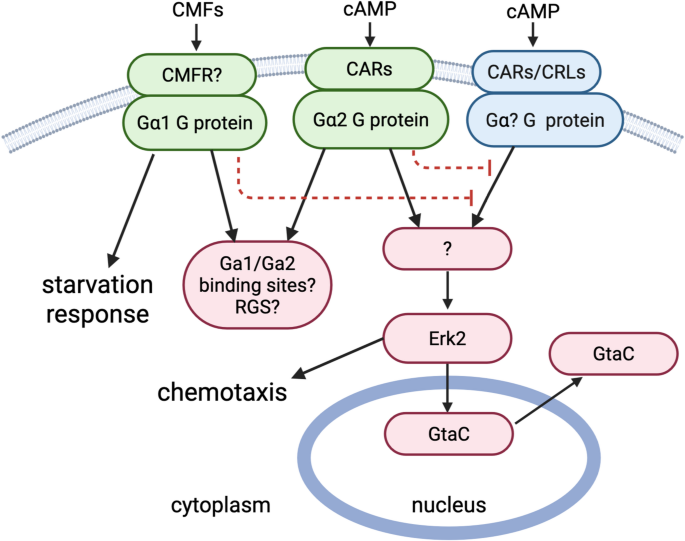
盘基网柄菌作为经典的真核生物趋化与发育模型,其G蛋白偶联受体(GPCR)信号通路与动物细胞高度保守,是解析细胞趋化、分化调控机制的重要工具。领域发展关键节点包括:早期通过遗传分析确立Gα亚基在趋化信号中的核心作用,明确叶酸信号依赖Gα4、cAMP信号主要依赖Gα2的基本框架;近年来的研究热点聚焦于Gα亚家族的功能分化与信号通路交叉调控,尤其是cAMP信号中部分响应(如Erk2激活、GATA转录因子GtaC的核质转运)可在Gα2缺失下部分存在的机制,这是当前领域未解决的核心问题之一——即是否存在其他Gα亚基的代偿作用或独立于Gα亚基的信号通路。本研究针对Gα1与Gα2的结构相似性,通过系统的功能验证实验,明确二者的功能差异,为解析cAMP信号的复杂调控网络提供了关键证据。
2. 文献综述解析
作者以盘基网柄菌的两类核心趋化信号(叶酸、cAMP)为分类维度,系统梳理了Gα亚基在不同信号通路中的功能研究进展,重点聚焦cAMP信号通路中Gα2非依赖响应的机制空白,为自身研究的必要性奠定基础。
现有研究已明确,叶酸介导的营养搜索信号完全依赖Gα4亚基,而cAMP介导的发育聚集信号主要依赖Gα2亚基,但部分cAMP响应(如Erk2激活、GtaC转运)可在Gα2缺失的细胞中部分发生;盘基网柄菌的遗传可操作性与简单多细胞发育周期为信号通路研究提供了独特优势,但现有研究对Gα亚家族的功能冗余性分析不足,尤其是与Gα2结构最相似的Gα1亚基,其是否能代偿Gα2的功能、是否参与cAMP信号调控等问题尚未明确,且缺乏针对Gα1与Gα2交互作用的系统研究。
本研究通过系统发育分析、异源表达拯救、基因敲除表型分析及转录因子转运实验,首次明确Gα1与Gα2在cAMP趋化、发育及GtaC转运中无功能冗余,同时揭示Gα1在细胞营养限制感知中的独特作用,以及GtaC转运存在受Gα1、Gα2抑制的非Gα2依赖替代通路,填补了Gα亚家族功能分化与cAMP信号复杂调控机制的研究空白。
3. 研究思路总结与详细解析
本研究的整体目标是明确Gα1与Gα2的功能重叠性及在cAMP信号通路中的调控作用,核心科学问题为Gα1是否能代偿Gα2的功能,以及cAMP诱导的GtaC核质转运的非Gα2依赖机制;技术路线遵循“结构预测→功能验证→表型分析→机制推论”的闭环逻辑,通过生物信息学分析、分子遗传操作、细胞表型检测及活细胞成像等多维度实验,系统解析二者的功能差异与交互作用。
3.1 Gα亚基的系统发育与结构预测
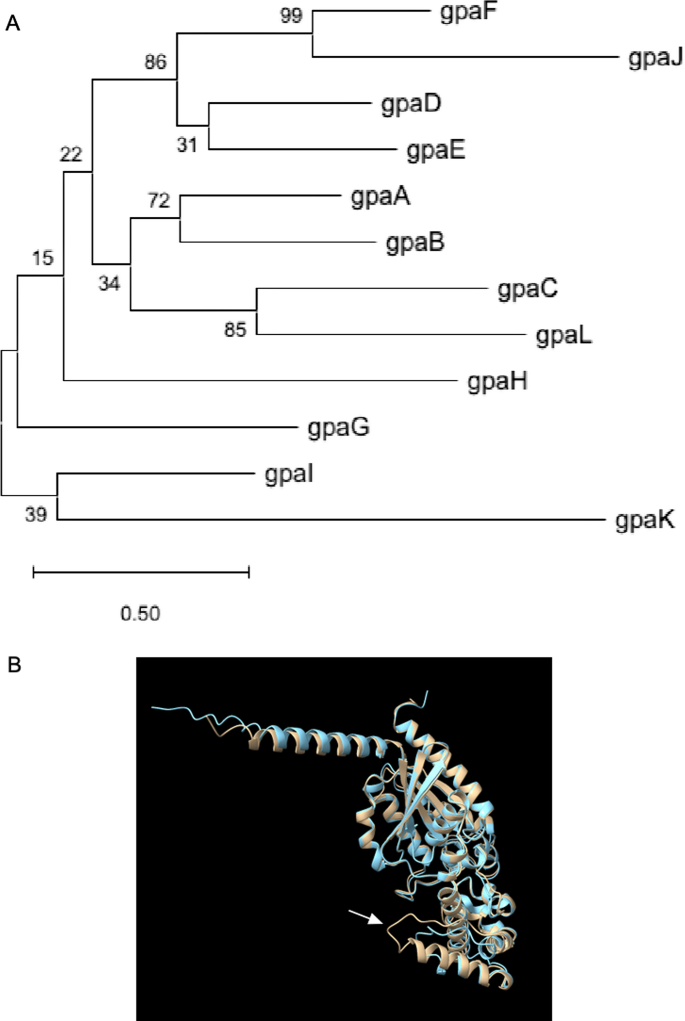
实验目的是筛选与Gα2结构同源性最高的Gα亚基,判断二者是否存在功能重叠的可能性。方法细节为采用MEGA12软件对盘基网柄菌的12个Gα亚基进行最大似然法系统发育分析,利用AlphaFold3预测Gα1与Gα2的三维结构,再通过ChimeraX工具进行结构叠加比对。结果解读显示,系统发育树表明Gα1是与Gα2进化关系最近的亚基,序列比对显示二者多数氨基酸残基保守,仅N端、C端及内部小区域(Gα1的110-118位、Gα2的114-128位)存在差异;结构叠加显示二者整体构象高度相似,仅上述非保守区域存在构象差异,提示二者可能存在相似的蛋白互作潜力,但非保守区域可能影响其功能特异性。
文献未提及具体实验产品,领域常规使用MEGA、AlphaFold、ChimeraX等生物信息学分析工具。
3.2 Gα1异源表达的功能拯救实验
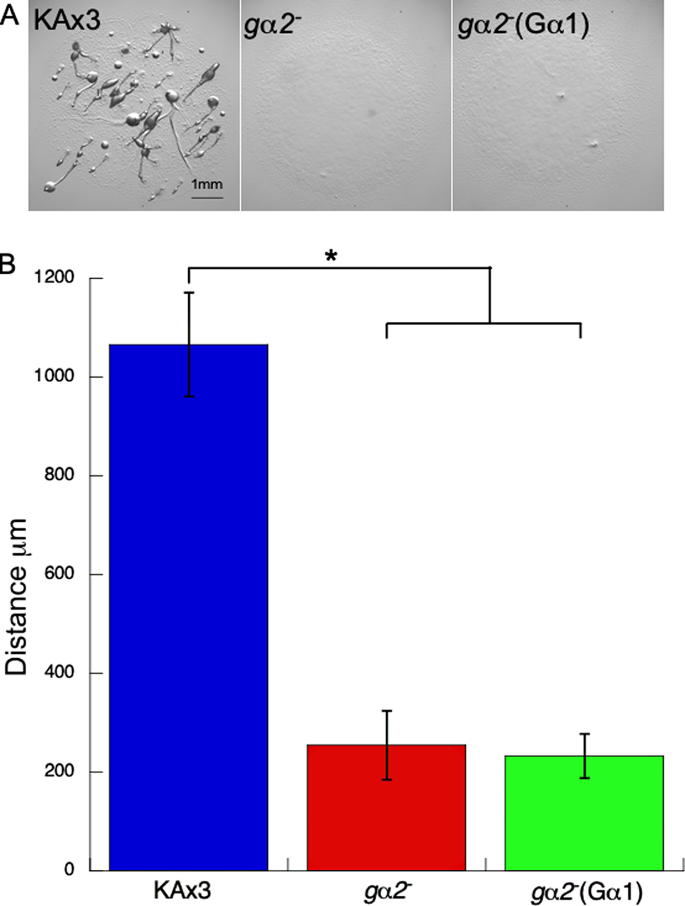
实验目的是验证Gα1是否能替代Gα2介导cAMP诱导的细胞趋化与聚集。方法细节为在Gα2基因敲除(gα2⁻)的细胞中,通过电转法导入含act15组成型启动子的Gα1表达载体,筛选阳性转化株后,观察其在非营养琼脂上的发育聚集表型,并采用琼脂上趋化实验检测细胞向100 nM cAMP的迁移能力,通过Student非配对t检验分析统计学差异。结果解读显示,过表达Gα1的gα2⁻细胞在非营养琼脂上仍无法形成聚集,与gα2⁻细胞表型一致;趋化实验中,过表达株的细胞前缘向cAMP迁移的距离与gα2⁻细胞无显著差异,且均显著低于野生型KAx3株(n≥5,P<0.001),表明Gα1无法拯救Gα2缺失导致的cAMP趋化与聚集缺陷。
文献未提及具体实验产品,领域常规使用基因克隆载体、电转仪、倒置显微镜等分子生物学与细胞实验工具。
3.3 单敲除与双敲除株的表型分析
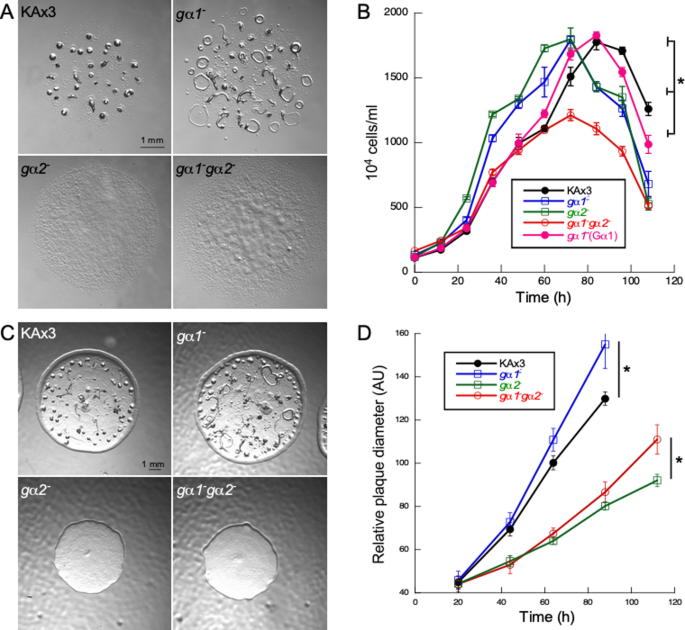
实验目的是对比Gα1、Gα2单独缺失及双缺失对细胞生长与发育的影响,揭示二者的功能差异与潜在交互作用。方法细节为通过同源重组构建Gα1基因敲除株(gα1⁻)及Gα1/Gα2双敲除株(gα1⁻gα2⁻),观察各株在非营养琼脂上的发育进程,通过血球计数板检测axenic培养基中的生长曲线,测量细菌lawn上噬菌斑的直径变化,采用Student非配对t检验分析统计学差异。结果解读显示,gα1⁻株在非营养琼脂上的发育仅存在轻微延迟(从松散 mound到带tip mound的过渡),在axenic培养基中更早进入生长平台期(n≥3,P<0.021 vs 野生型),在细菌lawn上的噬菌斑扩张速率略快于野生型(n=5,P<0.0012);gα2⁻株与gα1⁻gα2⁻双敲除株均存在聚集缺陷,且双敲除株在axenic培养基中的平台期细胞密度显著低于其他株(P<0.01 vs 野生型);这些结果表明Gα1参与细胞营养限制感知,而Gα2主导cAMP介导的发育聚集,二者功能存在显著差异。
文献未提及具体实验产品,领域常规使用基因敲除载体、血球计数板、体视显微镜等实验工具。
3.4 GtaC转录因子的核质转运实验
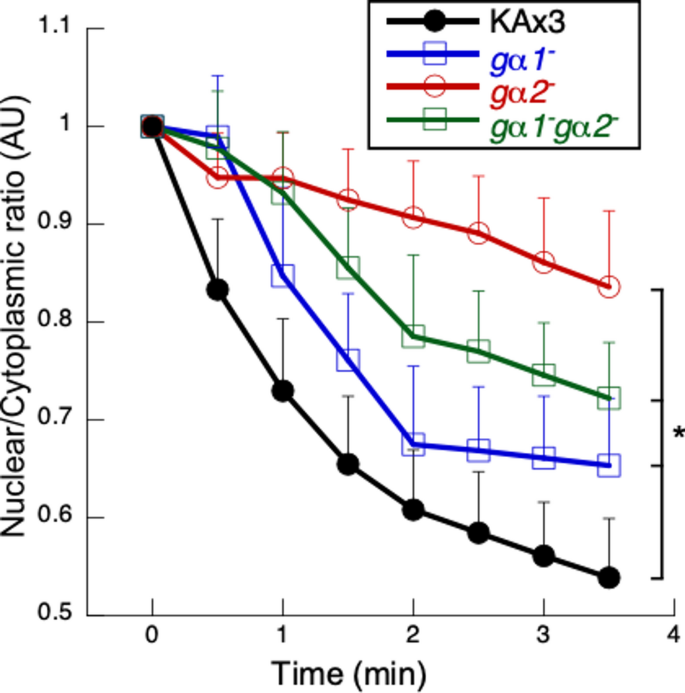
实验目的是解析Gα1、Gα2对cAMP诱导的GtaC核质转运的调控作用,明确Gα2非依赖转运的机制。方法细节为构建GFP标记的GtaCⁿˢ报告载体,导入各基因敲除株中,采用共聚焦活细胞成像技术,观察10 nM cAMP刺激后细胞内GFP的核质分布,通过ImageJ软件分析核质荧光强度比,每个株分析至少45个细胞,采用Student非配对t检验分析统计学差异。结果解读显示,野生型KAx3株在cAMP刺激后快速发生GtaC的核质转运,gα2⁻株的转运效率降低但仍显著,gα1⁻株的转运效率接近野生型,而gα1⁻gα2⁻双敲除株的转运效率显著高于gα2⁻株(P<<0.001);这一结果表明Gα1对GtaC转运的调控作用微弱,且Gα1的缺失可增强Gα2缺失细胞中的GtaC转运,提示存在受Gα1、Gα2抑制的非Gα2依赖替代通路。
文献未提及具体实验产品,领域常规使用荧光报告载体、共聚焦显微镜、图像分析软件等工具。
4. Biomarker研究及发现成果
本研究涉及的Biomarker包括两类:一是作为信号通路调控因子的Gα1、Gα2亚基,二是作为cAMP信号响应标志物的GtaC转录因子;研究通过系统的筛选与验证实验,明确了这些Biomarker的功能关联与调控机制。
Gα1、Gα2作为cAMP信号通路的核心调控亚基,筛选逻辑是基于系统发育分析的结构同源性(Gα1与Gα2进化关系最近),验证逻辑为“基因敲除→功能表型分析→异源表达拯救”的多维度实验;GtaC作为cAMP信号的转录响应标志物,其核质转运的筛选逻辑是基于前期研究中Gα2非依赖的响应现象,验证逻辑为活细胞成像结合核质荧光比分析。
Gα1、Gα2均来源于盘基网柄菌基因组,验证方法包括基因敲除株的生长与发育表型分析、异源表达拯救实验、转录因子转运实验;GtaC的来源为盘基网柄菌内源性转录因子,验证方法为GFP标记的活细胞成像,其特异性表现为不同Gα亚基缺失株中的转运效率存在显著差异:野生型的核质荧光比变化显著,gα2⁻株的变化幅度降低(n=48),gα1⁻gα2⁻双敲除株的变化幅度显著高于gα2⁻株(n=50,P<<0.001)。
核心成果提炼:Gα1的功能关联为参与细胞营养限制感知,表现为gα1⁻株在axenic培养基中更早进入平台期(n≥3,P<0.021)、在细菌lawn上的生长速率加快(n=5,P<0.0012);Gα2的功能关联为介导cAMP诱导的趋化与发育聚集,gα2⁻株存在完全的聚集缺陷;GtaC作为转录响应标志物,其核质转运存在非Gα2依赖的替代通路,且该通路受Gα1、Gα2的抑制,这是本研究的核心创新性发现——首次明确Gα1与Gα2无功能冗余,同时揭示了cAMP信号通路中存在受Gα亚基调控的复杂交叉网络。